Основи мікробіології
З їх допомогою гриб отримує поживні речовини з субстрату. Органами розселення гриба по субстрату є столони. Гриби цього роду вражають ягоди, коренеплоди, бульби, викликаючи «м’яку» гнилизну. Часто зустрічається на харчових продуктах – хлібі, рисі, борошні, плодах та овочах.
Гриби роду Thamnidium відрізняються тим, що у головного спорангієносця є бокові відгалуження виделкоподібної форми, а на їх кінцях розташовані невеликі спорангії – спорангіоли.. Вони містять одну або невелику кількість спор.
Вид Thamnidium elegans є найбільш холодостійким, тобто психрофітом і здатний псувати продукти навіть в холодильних камерах. Викликає глибинне псування продуктів, синтезує мікотоксин, тому м’ясо і м’ясні вироби уражені Thamnidium elegans не придатні для використання.
Аскоміцети (Ascomycetes) або сумчасті гриби. До аскоміцетів, які мають особливе значення в житті людини, відносяться представники родів Aspergillus і Penicillium. Ці гриби – типові мешканці грунту, а також виявляють в повітрі, на зерні, плодах, овочах, харчових продуктах.Серед грибів цих родів відомі продуценти таких антибіотиків як пеніцилін, цитрин, фумагілін та ін.
Деякі види синтезують мікотоксини.
Рід Aspergillus (лієчка плісень) характеризується розгалуженим багатоклітинним септованим міцелієм. Конідієносці несептовані. На вершині відростають китички. На китичках ланцюжками розташовані конідії (див.рис.а), які часто забарвлені.
Деякі види аспергилів використовуються у промисловості – для отримання лимонної кислоти, при виробництві ферментних препаратів, для освітлення соків.
Серед аспергилів є збудники грибних захворювань – мікозів.
Гриби роду Penicillium мають багатоклітинний, розгалужений септований міцелій. Конідієносці також септовані (див.рис.б)
Конідії розносяться потоками повітря і проростають. Певні види Penicillium використовують для отримання ферментних препаратів.
Базидіоміцети (Basidiomycetes). Орган спороношення – базидія.
До них належать сажкові та іржасті гриби. Базидіоміцетам є шкідник деревини, їстівні гриби, а також різноманітні сапрофіти, що беруть участь у розкладі органічних залишків.
Дейтероміцети (Deuteromycetes) мають добре розвинений септований багатоклітинний міцелій. Розмножуються безстатевим шляхом – конідіями. Багато представників даного порядку – Cladosporium, Alternaria, Fusarium, Botrytis.
Гриби роду Fusarium мають розгалужений багатоклітинний міцелій, розмножуються конідіями і поділені септами на клітини.
1- Fusarium
2-Botrytis
3-Alternaria
4-Cladosporium
5- Phoma
6- Catenularia
а- конідії
б- конідієносець
Конідієносці відсутні, конідії формуються на кінцях гіфів міцелію. Fusarium вражає картоплю, томати, буряк, цибулю, часник, злакові культури.
При вживанні хліба із зерна, враженого цими грибами, виникає захворювання, що наз. «п’яна хвороба». При цьому спостерігається слабкість, головний біль, блювання, розлад зору, біль у шлунку.
Рід Botrytis має багатоклітинний міцелій, конідієносці розгалужені, септовані. Вид Botrytis є збудником сірої гнилизни овочів та ягід. Міцелій гриба утворює на поверхні вражених овочів і ягід павутиноподібний наліт білого або сірого кольору. Конідії гриба мають сірувато-зелений колір, що і дало назву псуванню.
Рід Alternaria має конідії гранатоподібної форми, що мають декілька поперечних і повздовжних перегородок. Конідії мають темний колір, розташовані поодиноко або сполучені у ланцюжки, сидять на слаборозвинутих конідієносцях.
Різні види Alternaria широко розповсюджені у грунтах і викликають у с/г рослин чорну гнилизну (альтернаріоз).
Рід Cladosporium має прямі слаборозвинуті конідієносці. На них розвиваються ланцюжки конідій різної форми і розмірів. Зустрічаються кулясті, овальні, циліндричні конідії; конідії з однією або декількома септами, інколи без септ. Певні види добре розвиваються при низьких температурах. Цей гриб виявляється також на сирі, ковбасах, яйцях, маслі.
Принципи класифікації, морфологія та будова клітин дріжджів
Дріжджі – одноклітинні гриби, що не утворюють справжнього міцелію. Дуже поширені у природі, переносяться дощем, вітром, комахами і найбільш часто зустрічаються на рослинах, де є цукристі речовини. Дріжджі грампозитивні нерухомі організми. За типом живлення – хемогетеротрофи, за типом дихання – факультативні анаероби. Але є невелика група дріжджів, які розвиваються на поверхні субстратів і за типом дихання є аеробами.
Клітини дріжджів мають відносно великі розміри (в середньому 2-12 мкм). Дріжджі можуть суттєво змінювати свої форми та розміри.
Клітини дріжджів можуть мати різноманітну форму. Зустрічаються кулясті, овальні, еліптичні, циліндричні, лимоноподібні та інші форми.
За будовою клітини дріжджі відносяться до еукаріот. Дріжджова клітина має клітинну стінку. Під клітинною стінкою розміщена цитоплазматична мембрана, що охоплює цитоплазму клітини, в якій містяться органели та включення. Рибосоми у дріжджів розміщені в цитоплазмі і на зовнішньому боці ядерної мембрани. Ядро дріжджів оточене двошаровою мембраною і містить ДНК у вигляді хромосом.
Клітини дріжджів на 75% складаються з води. Суха речовина містить 90-95% органічних сполук – білків (30-75%), вуглеводів (25-50%), ліпідів (2-5%). Деякі дріжджі здатні синтезувати пігменти каротиноїди (Rhodotorula, Rhodosporidium).
Способи розмноження дріжджів
Дріжджі розмножуються вегетативно і за допомогою спороутворення, яке буває статевим і безстатевим. До вегетативних способів розмноження відносяться брунькування, поділ, брунькування поділом. При будь-якому вегетативному способі розмноження попередньо відбувається ділення ядра.
Вегетативне розмноження. Брунькування – найбільш розповсюджений спосіб розмноження. Воно характерне для дріжджів, що мають кулясту і овальну форму.
Розмноження поділом відбувається внаслідок утворення в дріжджовій клітині однієї або декількох поперечних перегородок – септ. Цей спосіб розмноження характерний для дріжджів циліндричної форми.
Брунькування поділом характеризується тим, що утворення дочірніх клітин починається з брунькування, а закінчується утворенням добре помітної септи в районі перешийка. Такий спосіб характерний для дріжджів лимоноподібної форми.
Спороутворення спостерігається у дріжджів при несприятливих умовах і відбувається після багаторазового розмноження шляхом брунькування. Оптимальна температура спороутворення 20-30°С.
Безстатеве спороутворення відбувається без попереднього злиття дріжджових клітин. Ядро ділиться на декілька частин – відповідно числу майбутніх спор. Ці спори знаходяться всередині материнської дріжджової клітини. Клітина виконує роль аска, тому наз. аскоспорами. При дозріванні аскоспор оболонка клітини розривається і спори попадають у зовнішнє середовище і проростають у вегетативні клітини.
Статеве розмноження дріжджів відбувається шляхом копуляції. Внаслідок копуляції можуть утворюватися аскоспори (у аскоміцетів) або екзогенні спори спори дії (у базидіоміцетів).
В цілому, спороутворення у дріжджів має подвійну функцію: розмноження і формування стійких видів. Спори дріжджів менш стійкі, ніж спори бактерій. Вони витримують температуру тільки на 10°С більшу, ніж вегетативні клітини дріжджів.
Характеристика найважливіших для промисловості родів дріжджів
Найбільше значення мають «культурні» дріжджі роду Saccharomyces, які викликають енергійне спиртове бродіння. У виробництві етилового спирту, пива, квасу, при приготуванні дріжджового тіста використовуються дріжджі Saccharomyces cerevisiae. Ці дріжджі мають овальну форму.
У хлібопеченні використовують раси дріжджів Saccharomyces cerevisiae, що активно виділяють вуглекислий газ, який сприяє доброму розпушенню і підніманню тіста.
Дріжджі поділяються на верхові та низові.
Верхові дріжджі здійснюють процес бродіння при відносно високих температурах (20-28°С). Процес бродіння відбувається бурхливо і забезпечує високий вихід спирту.
У виноробстві та пивоварстві використовують низові дріжджі. Низові дріжджі здійснюють процес бродіння при відносно низьких температурах (5-10°С). Спиртове бродіння протікає більш спокійно. Вони утворюють порівняно мало піни і каламуті, формують компактний осад у вигляді пластівців. Найбільш поширені у виноробстві винні дріжджі Saccharomyces vini, які мають еліптичну фору. До «диких» дріжджів відносяться дріжджі роду Zygosaccharomyces rautensteinii. Ці дріжджі осмофільні. Розвиваються при високих концентраціях цукру і солі (60-80%). Можуть псувати мед, сироп, варення, джем, згущене молоко з цукром, засолене м’ясо та рибу. Розмножуються статевим шляхом, викликають дуже повільне бродіння і в результаті накопичують до 10% спирту.
Дріжджі роду Schizosaccharomyces pombe є енергійними збудниками спиртового бродіння, але воно відбувається повільно. Можуть зброджувати глюкозу, сахарозу, мальтозу і декстрини, також яблучну кислоту в спирт і вуглекислий газ. Мають циліндричну форму із закругленими кінцями. Розмножування відбувається поділом. Використовують у виробництві рому і деяких сортів пива.
Дріжджі роду Saccharomycodes мають великі розміри, розмножуються брунькуванням поділом. Молоді клітини овальної форми, а дозрілі – лимоноподібної. Здійснюють спиртове бродіння з утворенням до 10% спирту. Це шкідники виноробства, які викликають помутніння вин, утворюють оцтово-кислий ефір, що надає вину гострий неприємний прокислий запах.
Рід Candida має клітини овальної і циліндричної форми. Вони є аспарогенні дріжджі. Рід Candida розмножується брунькуванням. Не викликають спиртового бродіння і тому є шкідниками бродильного виробництва.
Деякі види цього роду завдають шкоди дріжджовому виробництву, тому що якість хлібопекарських дріжджів знижується. Різні види роду Candida використовуються для отримання кормового білка та білково-вітамінних концентратів. З 500кг дріжджів можна отримати 50т білка. Існують патогенні види, які викликають кандидози, тобто уражають слизові оболонки рота, а інколи шкіри.
Дріжджі роду Torulopsis викликають спиртове бродіння і тому використовуються у виробництві кефіру і кумису. Мають кулясту, інколи овальну форму. Розмноження – численне брунькування. У виноробстві вважаються шкідниками, тому що утворюють слиз. Деякі дріжджі цього роду використовують для промислового одержання кормового білка.
Дріжджі роду Rhodotorulа відіграють певну роль у виробництві молочнокислих продуктів. Дріжджі можуть розмножуватися у молоці і мають здатність зброджувати лактозу. Але розвиток дріжджів в молоці більш повільний, ніж молочнокислих бактерій. Молочнокислі продукти, що виробляються з використанням заквасок дріжджів, мають лікувально-профілактичні властивості, тому що дріжджі синтезують антибіотичні речовини, активні проти патогенних штамів кишкової палички і збудника туберкульозу.
Віруси
Відмінні ознаки вірусів, будова віріонів, морфологія вірусів
В 1880 році Пастер застосував вакцини для лікування сказу, але про вірусну природу цієї інфекції, в той час було ще невідомо. Основоположником вірусології зїявися Івановський, він в 1892 р. відкрив збудника тютюнової мозаїки, якого не затримував бактеріальний фільтр.
Віруси (від лат. virus - отрута) –особлива форма життя, для якої відмінними ознаками, за якими вона відрізняється від інших живих істот є те, що віруси не мають клітинної будови, містять тільки один вид нуклеїнової кислоти та не здатні репродуктувати поза живою клітиною. Віруси – облігатні паразити.
Окрема зріла вірусна частка одержала назву віріон. Віріон складається з однієї молекули нуклеїнової кислоти та білкової оболонки. Оболонку віріонів називають капсидом (від сарsa – вмістилище). Капсиди утворюються з білкових субодиниць (поліпептидів), які називаються капсомерами. Їх кількість та метод укладки є постійним для кожного виду вірусів і використовується як таксономічна ознака.
Капсид віконує захисні йункцї і має досить високу стабільність до різних факторів внутрішньоклітинного середовища і особливо, до дії протеолітичних ферментів. Друга функція капсида полягає у забезпеченні адсорбції вірусів лише на тих клітинах, де може відбуватись їх розмноження.
У вірусів носієм генетичної інформації можуть бути як молекули ДНК, так і молекули РНК.
Розміри вірусів коливаються у межах від 8 до 750нм. Вони проходять крізь бактеріальні фільтри, а побачити їх можна тільки за допомогою електронного мікроскопа. Віруси – ультрамікроорганізми.
За формою віріонів віруси поділяються на:
паличкоподібні (віруси тютюнової мозаїки, сказу та ін.),
сферичні (віруси грипу, курячої саркоми, кору та ін.),
кубовидні (віруси натуральної віспи, папіломи людини і тварин, аденовіруси, ентеровіруси тощо),
ниткоподібні (віруси мозаїки пшениці, квасолі, сої, кавунів)
булавовидні (віруси бактерій).
Хімічний склад вірусів та їх відношення до факторів навколишнього середовища
Елементарний склад віріонів в середньому може характеризуватись такими показниками (%):
вуглець – 50 - фосфор – 0,4-0,5
кисень – 20 - сірка – 0,1-0,2
водень – 7 - зольні елементи – 2,5
азот – 16
До складу простих вірусів входить нуклеїнова кислота та білок. Складні віруси містять також ліпіди, вуглеводи та ферменти.
Нуклеїнова кислота (ДНК або РНК) становить від 1% до 40% маси віріона.
Маса білків становить 70-90%, які поділяються на структурні та не структурні.
Кількість ліпідів – 15-35%, кількість вуглеводів – 10%.
Віруси не чутливі до дії низьких температур. При дії високих температур більшість вірусів інактивується. Але вірус гепатиту термостійкий. Кислоти, луги, дезінфікуючі речовини активно знищують віруси. Ультрафіолетові промені проявляють сильну інактивуючу дію. Деякі віруси, інактивовані формаліном, зберігають імуногенні властивості, що дозволяє використовувати формалін для одержання вакцин.
Класифікація вірусів
Віруси характеризуються специфічністю, тому залежно від того, які організми вони вражають (на яких паразитують), їх поділяють на:
1) віруси рослин (фітопатогенні), які поділяються на спіральні паличкоподібні (вірус тютюнової мозаїки), спіральні ниткоподібні (х-вірус картоплі, вірус жовтухи цукрового буряка), сферичні або ікосаедричні (вірус некрозу тютюну), бацилоподібні або кулясті (вірус карликової кукурудзи, жовтої карликової картоплі, мозаїки озимиї пшениці).
Генетичним матеріалом фітопатогенних вірусів найчастіше служить РНК.
Вірусні хвороби рослин є хронічними і одужання не настає.
2) віруси, патогенні для тварин та людини. Відомо більше 500 видів. Вони містять або одноланцюгову РНК, або дволанцюгову ДНК. Деякі віруси вражають тільки один вид тварин. Потрапляють до організму людини контактним шляхом (вірус герпесу), через дихальні шляхи (віруси грипу, кору, віспи), з їжею або водою через кишково-шлунковий шлях (віруси поліомієліту, гепатиту А), через кров при укусах комах і тварин (віруси енцефаліту, сказу), при ін’єкціях (вірус гепатиту В, вірус набутого імунодефіциту)
Для лікування людей застосовують людський інтерферон.
3) віруси бактерій (бактеріофаги). Це віруси, що паразитують у бактеріальних клітинах.
Бактеріофаг – це віруси, що паразитують у бактеріальних клітинах. Більшість родин бактеріофагів містить дволанцюгову ДНК, але є такі, що мають одно ланцюгову ДНК; бактеріофаги двох родин містять одно-ланцюгову РНК. Дія фагів на бактерії строго специфічна – кожний з них викликає загибель лише певного виду бактерій. Фаги інфікують і руйнують лише молоді клітини, що розвиваються. Більшість фагів складається з багатогранної головки і хвостового відростка. Розмір головки фага 40-140 нм. Розмір хвостового відростка може досягати 250 нм в довжину і 25 нм в ширину.
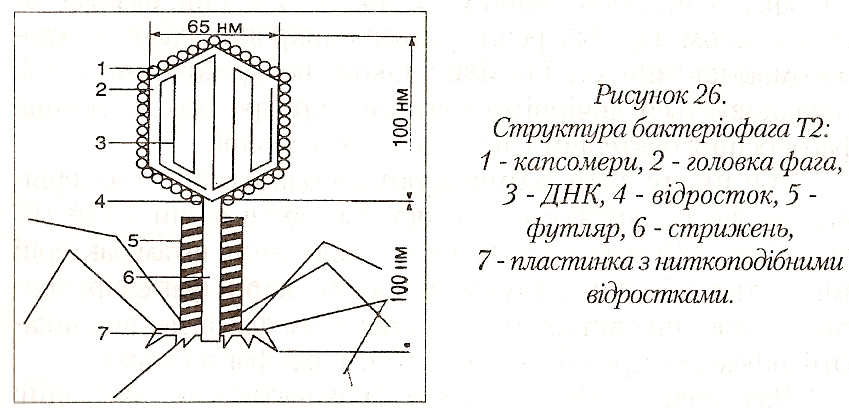
Застосування фагів. Основане на їх суворій специфічності і властивості руйнувати мікробні клітини або вступати з ними у симбіоз. В наш час фаги широко застосовують при лікуванні і профілактиці стафілококових і стрептококових захворювань, особливо таких, які не піддаються дії антибіотиків, а також холери і чуми. Фагопрофілактику проводять у період підйому захворюваності і загрозі виникнення епідемій. Немає протипоказань до застосування фага, вони не шкідливі для людей і діють вибірково, лізуючи лише певні мікроби. Проводиться індивідуальний підбор фага. Фаги випускаються фармакологічною промисловістю у рідкій та сухій формі. Фаги використовують для ідентифікації виду бактерій – збудників інфекційних захворювань.
У промисловості фаги можуть вражати клітини бактерій та інших мікроорганізмів. Бактеріофаги приносять велику шкоду молочній промисловості.
Основні шляхи попередження розвитку бактеріофага: підтримка асептичних умов вирощування заквасок, заміна заквасок, чергування в заквасках штамів, які не чутливі до великої кількості типів бактеріофагів та ін.
Практичне застосування фагів. Застосування фагів базується на їх строгій специфічності і здатності руйнувати мікробні клітини або вступати з ними в симбіоз.
1. Фагопрофілактика та фаготерапія. Попередження та лікування інфекцій за допомогою фагів базується на тому, що зустрівши в організмі хворого збудника захворювання, фаг знищує його.
В даний момент фаги широко застосовують при лікуванні та профілактиці стафілококових та стрептококкових захворювань, особливо таких, які не піддаються дії антибіотиків. Цінним фактором являється те, що нема протипоказань до застосування фагів, вони нешкідливі для людей та діють вибірково, тобто лізують тільки визначенні мікроорганізми.
Однак застосування фагів для лікування захворбвань незавжди ефективно. Це обумовлюється великою кількістб фаготипів одного й того ж збудника. Що потребує індивідуального добіру фагу.
2. Фагодіагностика та ідентифікування видів. Використовують відомі (діагностичні) фаги для ідентифікації виа культур бактерій – збудників інфекціонних захворювань. Індивідуальні культури відповідають тому фагу, який її лізував. Сувора специфічність дає можливість типувати варіанти усередині виду.
Фізіологія мікроорганізмів
Вивчає життєві функції мікроорганізмів:
обмін речовин,
живлення,
дихання,
ріст і розвиток,
розмноження,
реакції на зовнішні подразники,
пластичність,
інтенсивність взаємодії з факторами середовища.
Фізіологія являється науковою основою промислового використання мікроорганізмів у мікробіологічних виробництвах біологічно активних речовин (БАР), ферментів, вітамінів, антибіотиків, амінокислот, органічних кислот.
Мікроорганізми здатні до синтезу різних біологічно активних речовин, а деякі з них – до надмірного синтезу окремих речовин – метаболітів, ці мікроорганізми звуть продуцентами. Чиста культура – продуцент певної БАР є головним компонентом мікробного синтезу. Показниками культури, її якості є ступінь і термін накопичення цільової речовини, висока швидкість росту, чутливість до джерел вуглецю і супутних сполук живильного середовища. Мікробіологічне виробництво – багатостадійний процес підготовки, ферментації, сепарування, вилучення цільового продукту в асептичних умовах.
Хімічний склад мікроорганізмів
Хімічний склад клітин мікроорганізмів практично не відрізняється від складу клітин інших живих істот біосфери. Основну частину маси вегетативної клітини складає вода – 70-90%, вміст сухої речовини від 10 до 30%. Суха частка мікробної клітини на 85-97% представлена органічними сполуками, на 3-15% - мінеральні речовини.
Вода буває в двох станах: вільна і зв’язана. Вільна – розчинник, джерело іонів Н+, ОН-, учасник ферментолізу, транспорту речовин. Друга– існує в 4-ох видах – хімічно-, адсорбційно-, осмотично- і механічно зв’язана вода.
Вміст води в клітинах мікроорганізмів впливає на їх життєздатність, їх стан, тому втрата вільної води переводить клітину до анабіозу, а зв’язаної – до загибелі клітин (абіозу).
Вміст білків складає 50-80% сухої речовини, вони є основними і нийважливішими біополімерами в біомасі мікроорганізмів. Білки являються будівельним матеріалом і виконують катлітичну, транспортну, регулюючу, антигенну функції. Білки – ферменти забезпечують протікання біохімічних реакцій. В залежності від їх локалізації розрізняють екзоферменти, які клітина продукує назовні для забезпечення позаклітинного травлення, та еноферменти – каталізатори внутрішньоклітинного метаболізма. Набор ферментів являється характеристикой певних видів. Здатність синтезувати конститутивні ферменти кодується клітинним геномом, являється постійною ознакою, і не залежить від субстрату. Адаптивні або індуцибельні ферменти синтезуються при зміні факторів середовища. Нуклеопротеїди і нуклеїнові кислоти відповідають за процеси спадковості і мінливості.
Прості і складні вуглеводи виконують запасну, енергетичну. Захисну, будівельну, антигенну та інші функції.
Ліпіди мікроорганізмів входять до складу біомембран і клітинних стінок, являються джерелом енергії, виконують функцію запаса. Від концентрації ПНЖК залежить резистентність деяких бактерій до дії високих і низьких температур.
Здатність окремих видів продукувати пігменти використовується для ідентифікації видв мікроорганізмів. Існують бактерії, які не здатні синтезувати вітаміни, але їх життєдіяльність залежить від концентрації факторів росту в середовище. Такі мікроорганізми називають ауксотрофами. Певні види молочнокислих бактерій застосовують як живі тест – культури для визначення концентрації вітамінів.
Кількісно, в залежності від критерія, елементи поділяють на макро-, мікро- і ультрамікроелементи. Основу органічних речовин складають біоелементи або органогени. До органічних сполук мікроорганізмів відносяться: білки, нуклеїнові кислоти, вуглеводи, ліпіди, вітаміни, токсини, пігменти. Вміст білків складає 50-80% сухої речовини, вони є будівельним матеріалом клітини. Вміст нуклеїнових кислот у клітині залежно від виду бактерій і поживного середовища коливається від 10 до 30 % на суху речовину. Концентрація вуглеводів становить 12-28%, вони використовуються клітинами для синтезу різних сполук та як джерело енергії. Ліпіди складають 3-10% на суху речовину, і виконують функції енергетичного матеріала або запасних поживних речовин.
Види обміну речовин у мікроорганізмів
Важлива, суттєва, віждміна риса мікробіоти – метаболізм - сукупність процесів, що відбуваються у клітинах в процесі життєдіяльності. Він складається з двох різноспрямованих потоків реакцій: конструктивного та енергетичного метаболізму.
Конструктивний обмін (анаболізм) має місце, коли з речовин, що надходять зовні, та енергії синтезуються речовини клітини.
Енергетичний обмін (катаболізм ) – реакції розкладання органічних субстратів з утворенням макроергічних зв’язків АТФ. Енергетичнй та конструктивний метаболізми одночасні, тісно пов’язані. Виділення енергії відбувається в процесі дихання під впливом окисно-відновних ферментів.
Усі бактерії за типом дихання діляться на аеробів та анаеробів.
Аероби - бактеріальні клітини, які окислюють органічні субстрати з виділенням енергії за реакцією: С6Н12О6+6О2=>6СО2+6Н2О+Q. Енергія, яка вивільняється, застосовується бактеріями на біосинтез, структур клітини, механічну роботу або виділяється у вигляді світової та теплової енергії. При термогенезі бактеріальні клітини продукують назовні теплову енергію. Це явище виникає при самозігріванні або самозапалюванні зерна з низькою теплопровідністю при t=80-90 0С. Мікроорганізми які здатні перетворювати хімічну енергію макроергічних зв’язків АТФ в світло називаються фотогенними. (Photobacterium phosphoreum)
Анаероби – бактерії, які не можуть застосовувати атмосферний кисень. Для одержання енергії вони використовують анаеробні дегідрогенази. Цей тип відкрив Пастер і дав назву бродіння (спиртове, маслянокисле).
Розрізняють підтипи: облігатні; факультативні типи дахання. До Облігатні аеробів відносяться сарцини, вібріон холери, micromycetes, плівчасті дріжджі, mycobacterium. Факультативних аеробів не виявлено. Мікроаерофіли потребують кисень в незначній кількості (Thamnidium, Cladosporium). Облігатних анаеробів в лабораторії культивують на середовищі Китт-Тароцці. До них відносяться: , Clostridium sporogenes, Clostridium putrificum, Escherichia coli i Proteus vulgaris. Вони являються факультативними анаеробами.
Типи живлення
У класифікації типів живлення використовується сучасна термінологія, запропонована у 1946 році на мікробіологічному симпозіумі. На базі трьох критеріїв розглядається кілька типів живлення:
щодо джерела вуглецю (автотрофія, гетеротрофія);
щодо донора електронів (органотрофія, гетеротрофія);
щодо джерела енергії (хемотрофія, фототрофія).
За відношенням до джерела вуглецю мікроорганізми поділяються на автотрофи та гетеротрофи. Автотрофи застосовують СО2 і самі синтезують органічні речовини. Донором електронів в них є неорганічні сполуки: Н2, NH3, H2S, S, Fe2+. В залежності від донора бактерії мають назву : водневі, нітрифікуючи, сіркобактерії, залізобактерії. Їх назва – літоавтотрофи. Більшість з них виконує важливі функції в кругообігу речовин в природі. С.М. Виноградський відкрив новий тип живлення – хемосинтез,коли окислення молекулярного водню, NH3,H2S і задіза є джерелом енргії аеробних актерій.
Серед автотрофів відомі ціанові, пурпурові, зелені актерії, я кі використовують сонячну енергію і проводять фотосинтез.
Гетеротрофи – це мікроорганізми, які для живлення потребують органічні сполуки: амінокислоти, білки, вуглеводи, ліпіди. Їх сучасна назва – хемоорганогетеротрофи. У цих організмів вуглецева сполука є єдиним джерелом вуглецю, електронів і енергії. Це найбільш досліджена група мікроорганізмів, широко розповсюджена в природі. Вони поділяються на сапрофіти і паразити.
Враховуючи три критерії виділяють 8 груп мікроорганізмів, що різняться за типом живлення
| Джерело енергії | Джерело електронів | Джерело вуглецю | Група мікроорганізмів |
| Світло | Неорганічні сполуки | СО2 | Фотолітоавтотрофи |
| Світло | Неорганічні сполуки | Органічні сполуки | Фотолітогетеротрофи |
| світло | Органічні сполуки | СО2 | Фотоорганоавтотрофи |
| Світло | Органічні сполуки | Органічні сполуки | фотоорганогетеротрофи |
| Хімічні реакції | Неорганічні сполуки | СО2 | Хемолітоавтотрофи |
| Хімічні реакції | Неорганічні сполуки | Органічні сполуки | Хемолітогетеротрофи |
| Хімічні реакції | Органічні сполуки | СО2 | Хеморганоавтотрофи |
| Хімічні реакції | Органічні сполуки | Органічні сполуки | Хемоорганогетеротрофи |
Механізм транспорту поживних речовин до клітини
Мікроорганізмам властивий голофітний тип живлення. Вони не мають органів травлення, а поживні речовини надходять у водному розчині різними механізмами. Особлива регуляторна роль в транспорті поживних речовин до середини клітини і виведенні метаболітів назовні належить цитоплазматичній мембрані. ЦПМ має пори малого діаметру, які характеризуються вибірковою напівпроникністю. В ЦПМ локалізовані пермеази – білки переносу із суворою специфічністю до субстратів. Їх кількість буває значною.
Розрізняють такі типи транспорту:
активний транспорт – коли з середовища із низькою концентрацією поживних речовин у клітину поступають харчові речовини за допомогою пермеаз і енергії АТФ.
полегшена дифузія – коли із середовища з високою концентрацією речовини транспортуються за допомогою пермеаз без затрат енергії.
пасивна дифузія – коли із середовища речовини рухаються з зони високої концентрації в зону низької концентрації в клітину за градієнтом концентрації або електростатичного потенціалу.
Існують три типи станів клітини, які обумовлені співвідношенням концентрації речовин назовні і в середині клітини.
1-ий стан – нормальний стан клітини – тургор – коли клітина знаходиться в ізотонічному розчині (0,85% NaCl). В цьому випадку дифузія осмотично активних речовин в клітину формує внутрішньоклітинний осмотичний тиск. Він зветься тургор і коливається у великих діапазонах 1,5 МПа. Тургор забезпечує транспорт води у клітину. ЦПМ щильно прилягає до клітинної стінки і тиск в середині клітини трохи більший ніж тиск ззовні.
2-ий стан – плазмоліз – якщо клітина потрапляє в середовище з високим осмотичним тиском (гіпертонічний розчин), то ЦПМ віддає воду і вміст клітини зневоднюється, стискається. Клітина переходить спочатку у стан анабіозу, тобто зберігає життєздатність, а потім – до стану абіозу, гине. В технології консервування застосовують при солінні 25% NaCl і при виготовленні варіння 50% сахарозу. В такій концентрації вони виявляють бактеріостатичну дію, тобто бактерії не розмножуються але не гинуть і бактерицидну дію, коли наступає загибель бактерій.
3-ий стан – плазмоптіс – бактеріальна клітина потрапляє в гіпотонічний розчин, наприклад, це відбувається коли клітина потрапляє в дистильовану воду.
Існують мікроорганізми, які виявляють резистентність до високої концентрації речовин в середовищі. Стійкі організми, що можуть жити, розвиватись, розмножуватися при високому осмотичному тиску називаються осмофільними. Відомі бактерії галофіли, які здатні розмножуватися в середовищі з високим вмістом NaCl, серед них бувають облігатні галофіли, які потребують обов’язково 12% NaCl і більше. Факультативні галофіли можуть розмножуватися і при 1-2%,і 10-12%.
Розмноження мікроорганізмів
Ріст бактерій – це збільшення кількості компонентів в клітині, її розмірів і маси. Розмноження бактерій – це збільшення числа клітин в популяції. Прокаріоти розмножуються бінарним діленням. Також відомі факти кон’югації ( статтєве розмноження). В штучних умовах на незмінному поживному середовищі розмноження відбувається за певними закономірностями.
Розрізняють 4 фази розмноження:
лаг-фаза або фаза затримки росту. Вона триває дві години. Це відбувається тому що бактерії пристосовуються до умов, кількість клітин впродовж цієї фази не збільшується.
фаза логарифмічного росту – при цьому в геометричній прогресії збільшується кількість клітин. Вона ще називається експоненціальною і триває 5-6 годин.
стаціонарна фаза – це коли кількість нових клітин дорівнює кількості відмерлих клітин. Ця фаза триває 2 години.
фаза відмирання – в цій фазі кількість нових клітин менше ніж кількість відмерлих. У спороутворюючих мікроорганізмів йде процес утворення спор.
До причин загибелі мікроорганізмів відносяться лізіс власними ферментами ( цей процес проходить у лізосомах), накопичення токсинів-метаболітів життєдіяльності та збіднення поживного середовища.
Біогеохімічна діяльність мікроорганізмів. Роль мікроорганізмів у кругообігу речовин у природі
Вміст в атмосфері азоту, кисню і вуглекислого газу, інших хімічних елементів, виявлених на поверхні Землі і необхідних для життя, відображає рівновагу між їх утворенням у біологічних і геологічних процесах. Ці перетворення відбуваються у всій біосфері, тобто в тій тонкій оболонці життя на поверхні Землі, що охоплює океани, моря, прісні водоймища, грунт континентів і нижню частину атмосфери, і в якій тільки і містяться живі організми. Загального вмісту головних хімічних елементів, необхідних для життя, зокрема вуглецю й азоту, які є в атмосфері, при їхньому однобічному споживанні навряд чи вистачило б на мільйони років.
Біосфера знаходиться в більш-менш стійкому стані завдяки безперервному припливу сонячної енергії і постійному кругообігу вуглецю кисню, азоту, сірки і фосфору. У цілому ці процеси виглядають так: за допомогою сонячної енергії фотосинтезуючі організми перетворюють вуглекислий газ та інші неорганічні речовини в глюкозу та інші органічні сполуки, які прямо чи побічно служать джерелом енергії для всіх інших організмів. У свою чергу фотосинтезуючі організми – одноклітинні водорості, які живуть в океані і вищі рослини, які ростуть на суші, - служать джерелом харчування для тварин. У такий спосіб органічна речовина, що накопичується щорічно, у процесі фото синтезуючої діяльності переробляється на різних рівнях життя консументами і деструкторами. До перших належать, головним чином, тварини, до других – гриби і бактерії. Послідовність цих подій виражається в трофічних ланцюгах або ланцюгах харчування. Кінцева, деструктивна ланка цього ланцюга – мінералізація органічних речовин з поверненням вуглекислого газу в атмосферу – здійснюється гетеротрофними мікроорганізмами.
Деструктаторами природних біополі мерів (білки, нуклеїнові кислоти, геміцелюлози, пектин, крохмаль, целюлоза та ін.) можуть бути лише ті мікроорганізми, які синтезують гідролітичні ферменти. В аеробній зоні до таких мікроорганізмів відносяться гриби, грампозитивні бактерії, у тому числі й актиноміцети. В анаеробній зоні – це тільки бактерії, в основному з групи клостридій. В аеробній зоні відбувається практично повне перетворення полімерів із звільненням вуглекислого газу. В анаеробних умовах у процесі первинного розкладання органічних речовин як продукти розпаду утворюються жирні кислоти, спирти і молекулярний водень, які частково використовуються сульфітредукуючими, денітрифікуючими і метаноутворюючими бактеріями. Володіючи досить активним ферментним апаратом, мікроорганізми здійснюють процеси розщеплення і синтезу самих складних органічних речовин. Завдяки їх мінералізуючій діяльності поверхня Землі постійно очищується від трупів тварин і залишків рослин. За словами В.Л. Омелянського, мікроорганізми є дійсними могильниками органічного світу.
Кругообіг азоту
Азот – це біогенний елемент, складова частина структурних білків, ферментів, нуклеїнових кислот, АТФ та ін. Близько 4/5 повітря, яке нас оточує, приходиться на частку вільного азоту, над кожним гектаром ґрунту піднімається стовп повітря, котрий містить близько 80 тис. тонн молекулярного азоту. Газоподібний вільний азот не асимілюється рослинами, тваринами і людиною. Багато форм зв’язаного азоту не можуть служити джерелом азотного живлення для рослин. Азот, який надходить у виді білкових речовин у грунт разом із залишками рослин і тварин, зовсім не підходить для цих цілей, він має бути окислений у солі азотистої та азотної кислот (нітрити і нітрати). Кругообіг азоту – це складний біохімічний процес, який складається з чотирьох етапів: азот-фіксація; амоніфікація; нітрифікація; денітрифікація.
Фіксація атмосферного азоту здійснюють мікроорганізми, які здатні засвоювати молекулярний азот N2 і переводити його в зв’язаний стан. Внаслідок їх діяльності йде