Участие митохондриального АТФ-ингибируемого калиевого канала в адаптации животного к гипоксическому состоянию
SLB для проб: 1 мл SLB без МЭ (1); 45 мкл МЭ; 45 мкл бромфеноловый синий .
Приготовление маркера:
10 мкл маркера (0.1 мг/мл) + 120 мкл SLB (1)
Приготовление кумасси: 600 мг кумасси голубого; 200 мл 96% этанола; 40 мл ледяной уксусной кислоты растворить в 200 мл воды.
Концентрированный буфер для форезной камеры: 7.6 г Tris-HCl + 36 г глицина доводили дистиллированной водой до 800 мл и рН 8.3-8.8. После этого в буфер добавляли 2.5 г додецилсульфата натрия.
Рабочий буфер для форезной камеры: Разводили концентрированный буфер в 5 раз.
Буфер для разделяющего геля: Tris-HCl 1.5 M (9.1 г на 50 мл воды доводили до рН 8.8), затем добавляли 200 мг SDS на 50 мл.
Буфер для концентрирующего геля: Tris-HCl 0.5 М (3 г на 50 мл). После доведения рН до 6.8 добавляли 200 мг SDS на 50 мл.
40% - бис-акриламид (60 мл): акриламид 23.34г.; бис-акриламид 0.64г.
Приготовление гелей: сведения представлены в таблице 2.
Таблица 2. Приготовление гелей для SDS-электрофореза в ПААГ.
| Вещество | Разделяющий 10 % (20 мл) | Концентрирующий 5% (5 мл) |
| 40% бис-акриламид | 5 мл | 0,72 мл |
| Буфер для геля | 5 мл | 1,6 мл |
| Вода | 9,3 мл | 3,95 мл |
| Персульфат аммония (1%) | 0,7 мл | 0,6 мл |
| TEMED* | 10 мкл | 15 мкл |
П р и м е ч а н и е: TEMED вносится непосредственно перед заливанием геля.
После полимеризации гелей пробы (в т.ч. метчик) кипятили на водяной бане в течение 5 минут и горячими наносили в карманчики геля. Маркер (рабочий) наносили в объеме 1/6 от объема проб.
Электрофорез проводили при силе тока 20 мА на одну пластинку. Когда пробы входили в разделяющий гель, силу тока увеличивали в 2 раза и оставляли до тех пор, пока краска не доходила до конца геля (1.5-2 часа).
Красили кумасси примерно 15 мин. Затем отмывали 7.5 % уксусной кислотой в течение ночи на шейкере. Если было необходимо, окрашивали серебрением (таблица 3).
Таблица 3. Окрашивание серебрением (Silver staining, Shevchenko at al., 1996)
| Реагент | Экспозиция |
| 50 % метанол + 10% уксусная кислота | 2*20 мин |
| 20% этанол | 10 мин |
| Вода | 10 мин |
| Тиосульфат натрия (0.2 г/л) | 1 мин |
| Вода | 2*20 сек |
| Нитрат серебра (2 г/л) | 30 мин |
| Вода | 20 сек |
| Проявитель: карбонат натрия (30 г/л); 37% формалин 1.4 мг/л; тиосульфат натрия 10 мг/л | Пока не проявится (около 20 мин) |
| 1% уксусная кислота | Минимум 20 мин |
Фракции, в которых при электрофорезе обнаружен белок с Mr 55 кДа, диализовали против 5 мМ Tris-HCl, pH 7.4.
Диализат наносили на вторую колонку с DEAE-целлюлозой (высота 1 см, объем 1 мл).
Смывали белки таким же градиентом по два объема колонки.
Фракции после первой и второй колонки проверяли на приборе для определения проводимости бислойных липидных мембран (БЛМ).
2.1.6. Определение проводимости бислойных липидных мембран (БЛМ)
Электрическая часть прибора для измерения проводимости бислойных липидных мембран представляет собой амперметр, измеряющий силу тока при определенной разности потенциалов между электродами. Сила тока зависит от проницаемости (сопротивления) мембраны, разделяющей раствор электролита в кювете. Исходя из этого, можно определить проводимость мембраны (проводимость = 1/ сопротивление).
Проводимость билипидного слоя очень близка к нулю (10-12 пСм) при умеренном напряжении. Абсолютное значение напряжения более 150 мВ «рвет» билипидный слой.
Проводимость отличная от нуля определяется белками, встроенными в билипидный слой.
Проводимость нелинейно зависит от напряжения (в случае БЛМ), поэтому определяется проводимость при различных напряжениях.
Подготовка кювет: до и после работы кюветы отмывали детергентами, затем 10-15 минут споласкивали в струе воды (в стакане). Промывали дистиллятом, протирали спиртом, промывали дистиллятом от спирта. Ставили сушиться. Когда кюветы высыхали, смазывали отверстие в меньшей кювете липидами снаружи и внутри и давали высохнуть. Вставляли меньшую кювету в большую. Наливали в каждую кювету по 1 мл среды.
Среда для БЛМ: 3 M KCl; 20 мМ Tris, pH 7.4.
Приготовление липидов: 20 мкл общих липидов мозга и 26 мкл кардиолипина (Blight et al., 1959). Смесь близка по составу к митохондриальным липидам.
Затем эту смесь сушили аргоном, чтобы испарился хлороформ и метанол.
В пробирку с высушенными липидами добавляли 80 мкл н-декана, чтобы растворить липиды перемешивали.
Работа на приборе: наливали в каждую кювету по 800 мкл буфера; вставляли два электрода в кюветы; включали приборы; наносили липиды на отверстие в меньшей кювете, используя микроскоп. Ждали, пока цветная (полислойная) мембрана станет черной (бислойной).
В одну из кювет (обычно транс-) добавляли необходимое количество белка, а в другую (цис-) такое же количество среды для БЛМ, причем с расчетом, чтобы содержание KCl в обеих кюветах было изоосмотическим.
В случае появления проводимости, ее регистрировали две-три минуты, затем меняли напряжение, и ингибировали проводимость АТФ.
2.1.7. Нативный электрофорез
При нативном электрофорезе не используются детергенты, белки разделяются как по заряду, так и по молекулярной массе. При обнаружении (возможном) не одной, а нескольких полос (загрязнение) проводится элюция с геля всех полос, затем белки идентифицируются на SDS-форезе.
Концентрированный буфер для элюции (рН=8.8): 3г Tris на 500 мл воды; 14.4 г глицина на 500 мл воды.
Буфер для элюции: концентрированный буфер развести в 10 раз.
Приготовление гелей: сведения представлены в таблице 4.
Таблица 4. Приготовление гелей для нативного электрофореза.
| 10% гель: | 2.5% гель: |
| 30% акриламид – 3.3 мл | 30% акриламид – 0.5 мл |
| 1% бис-акриламид - 1.3 мл | 1% бис-акриламид – 0.5 мл |
| 1.5 М трис (рН=8.7) – 2.5 мл | 0.5 М трис (рН = 6.8) – 1.25 мл |
| вода - 2.73 мл | вода – 2.67 мл |
| персульфат аммония - 0.035 мл | персульфат аммония - 0.025 мл |
| ТЕМЕД – 0.003 мл | ТЕМЕД – 0.0025 мл |
Пластинки заливали рабочим буфером для фореза. Проводили префорез: 30 мА 30 мин.
Бромфеноловый синий в кислой среде бурый, при рН 8.3 синеет. Краску наносили на гель ровным слоем и устанавливали силу тока 30 мА на 1 мин, чтобы краска вошла в гель.
Добавляли сахарозу и глицерин для увеличения плотности раствора. В краску тоже добавляли сахарозу.
Когда краска входила в гель, наносили пробу ровным слоем. Устанавливали силу тока 30 мА (примерно на 3 часа).
После этого, вырезали боковые части геля, окрасили их 30 минут бромфеноловым синим, отмывали в 7.5% уксусной кислоте. Вырезали полосу геля, соответствующую полосе белка (должна быть чуть шире, чем полоса белка), измельчали, помещали в трубку для элюции.
Пробирки заполняли буфером, потом заливали буфер в верхнюю камеру, чтобы покрыло пробки. В наружной камере буфер должен покрывать мембрану.
Камеру ставили в холодильник, проводили элюцию при 8 мА (для двух трубок) 12 часов. Доэлюцию (если было необходимо) проводили при 10 мА 1 час.
После этого, сливали буфер из внутренней камеры во внешнюю. Из трубок пипеткой вытягивали буфер. Аккуратно снимали пробку – в ней препарат. Осторожно, чтобы не повредить мембрану, вытягивали пипеткой элюат.
2.1.8. Концентрирование белка методом обратного диализа с помощью полиэтиленгликоля
Фракцию помещали в диализный мешочек (его можно ставить вертикально, тогда ПЭГ должен покрывать мешочек на 1/3). Мешочек клали в бюкс или чашку Петри и засыпали ПЭГ.
2.2. Выделение митохондрий из печени крыс
Среда выделения (200 мл, рН 7.4): маннитол 210 мМ; сахароза 70 мМ; HEPES (N-2-гидроксиэтилперазин–N’-этансульфоновая кислота) 10 мМ. Среду разделяли на три части. В одну 37 мг ЭДТА на 100 мл среды, в другую 45 мкл 0,1 М ЭГТА на 100 мл среды. Третью (три миллилитра) оставляли без изменений.
Все процедуры проводили при 4 °С. Взвешенный физраствор предварительно охлаждали. Затем взвешивали вместе с печенью. Измельчали печень в прессе, затем гомогенизировали, разбавив средой с ЭДТА в девять раз.
Центрифугировали 4 мин при 250 g, затем 6 мин при 600 g. В результате этого осаждались ядра и обрывки мембран.
Супернатант центрифугировали 20 мин при 4500 g.
Осадок ресуспендировали в среде с ЭГТА и центрифугировали 20 мин при 4500 g.
Осадок ресуспендировали в среде без ЭГТА и без ЭДТА в соотношении 100 мкл среды на каждый грамм ткани и ставили в лед.
2.4. Выделение митохондрий из сердца крыс
Среда выделения (150 мл, рН 7.4): сахароза 70 мМ; маннитол 210 мМ; хепес 10 мМ; ЭГТА 2 мМ. Среду разделяли на три части. В одну (10 мл) добавляли 1 мг протеазы (непосредственно перед выделением). В другую (70 мл) - добавляли 140 мг БСА. В третью (70 мл) ничего не добавляли.
Все процедуры проводили при 4 °С.
Сердце помещали в предварительно охлажденный физраствор и взвешивали. Затем клали сердце в среду с протеазой на 10 минут, измельчая сердце ножницами. Через 10 минут часть жидкости сверху сливали, чтобы удалить частички жира и связки. Далее разводили средой с альбумином в 9 раз и гомогенизировали.
Гомогенат центрифугировали пять минут при 650g (осаждаются ядра и обрывки мембраны).
Супернатант центрифугировали 10 мин при 8000g.
Осадок ресуспендировали в среде без альбумина, центрифугировали 10 минут при 8000g.
Осадок вновь ресуспендировали в среде без альбумина из расчета 0.1 мл среды на 1г ткани сердца и ставили в лед.
2.5. Определение параметров транспорта К+ с помощью
К+ -селективного электрода
Ион-селективные электроды позволяют определять концентрацию ионов в растворе, которая зависит от разности потенциалов, возникающей между электродом и электродом сравнения.
Среда для К+ - электрода (рН 7.2-7.4): Сахароза 150 мМ; Трис(гидроксиметил)метиламин 10 мМ; NaH2PO4 5 мМ. Использовали прибор «Record 4».
Калибровали шкалу.
В ячейку добавляли: 1 мл среды; модуляторы каналов, ингибиторы цепи и т. п.; митохондрии; ДНФ (5 мкл); triton x-100 (5 мкл, 10%).
После измерений кювету промывали.
Определяли скорость выхода ионов калия и его количество в митохондриях.
Пересчитывали скорость выхода калия и его количество на милиграмм белка митохондрий.
2.6. Определение параметров дыхания с помощью кислородного электрода Кларка
Среда для электрода (рН 7.4): 150 мМ сахароза; 50 мМ хлорид калия; 5 мМ дигидрофосфат натрия; 0.5 мМ хлорид магния; 10 мМ хепес. Использовали прибор «Record 4».
Калибровку шкалы выполняли по двум точкам. «Ноль» нмоль кислорода устанавливали при добавлении дитионита натрия (несколько мкг), так как дитионит является сильным восстановителем. 250 нмоль кислорода соответствует содержанию кислорода в среде дыхания объемом 1 мл.
В ячейку добавляли 1 мл среды. 1 мМ Rotenon, 5 мМ сукцинат, митохондрии, 200 мкМ АДФ, ДНФ (5 мкл).
Программа автоматически рассчитывает скорость дыхания.
Скорости: до добавления АДФ, после добавления АДФ, после фосфорилирования АДФ, после добавления разобщителя измеряли на самом прямом участке.
Пересчитывали скорость дыхания на миллиграмм белка митохондрий.
2.7. Спектрофотометрическое определение скорости
набухания митохондрий
Потенциал-зависимый вход ионов К+ в митохондрии вызывает вход осмотически облигатной воды, что ведет к набуханию и увеличению оптической плотности.
Среда для набухания: КCl 50 mM; NaH2PO4 5 mM; MgCl2 0.5 mM; Hepes 5 mM; EGTA 100 мкM.
В кювету добавляли: 5 мкМ цитохром С - 4 мкл; 1 мМ Rotenone (если в качестве субстрата сукцинат) – 10 мкл; 2 мл среды; модуляторы, активные вещества, и. т. п; митохондрии.
Использовали метод динамического определения оптической плотности при длине волны 520 нм, установив время измерения равное трем минутам. Через полторы минуты добавляли субстрат (сукцинат или малат с глутаматом). По окончании измерения данные сохраняли в Excel и рассчитывали изменение оптической плотности в минуту на милиграмм белка митохондрий.
2.8. Определение устойчивости к гипоксии крыс и адаптация к ней низкоустойчивых крыс
Группу самцов линии Вистар, поместив в барокамеру и снизив давление до 22 кПа, подвергли острой гипобарической гипоксии, соответствующей подъему на высоту 11500 м. Те животные, что выдерживали гипоксию в течение 10-15 минут, считались высокоустойчивыми. Низкоустойчивые крысы выдерживали эту высоту только в течение полутора минут. Среднеустойчивых крыс в эксперимент не брали. Адаптация низкоустойчивых крыс проводилась методом интервальной нормобарической гипоксии. Для этого животные помещались в камеру с контролируемой подачей воздуха. В течение двенадцати дней животным ежедневно по пять раз в день подавался воздух с вдвое сниженной концентрацией кислорода в течение 10 минут с трехминутными перерывами, во время которых животным подавался воздух с нормальной концентрацией кислорода.
3. Результаты и обсуждение
3.1.Выделение белка с молекулярной массой 55 кДа
 Выделение
белка с м. м. 55 кДа
из внутренней
мембраны митохондрий
печени крыс
проводили
методом водно-этанольной
экстракции
[3]. Очистка белка
проводилась
методом ионообменной
хроматографии
с использованием
ДЭАЭ-целлюлозы
в качестве
носителя. Присутствие
белка во фракциях
обнаруживали
с помощью
SDS-электрофореза
в 10%-ом ПААГ
(рис 3).
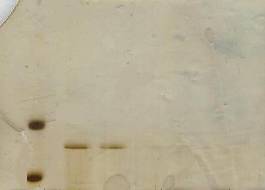
Рисунок 3. SDS-электрофорез фракций после повторной хроматографии. На треке 1 – маркер. На треках 2,3 – белок с Мr 55 кДа (фракции с 250 мМ КСl)
Дополнительная проверка фракций проводилась на приборе для определения проводимости искусственных бислойных мембран. При встраивании белка фракции, содержащих канальную субъединицу мито-К+АТФ обнаруживалась проводимость мембран, ингибируемая АТФ (рис 4).
Для дополнительной очистки проводили повторную хроматографию активной фракции. Для окончательной очистки белка до электрофоретически гомогенного состояния проводился нативный электрофорез активной фракции с последующей элюцией белка с геля.
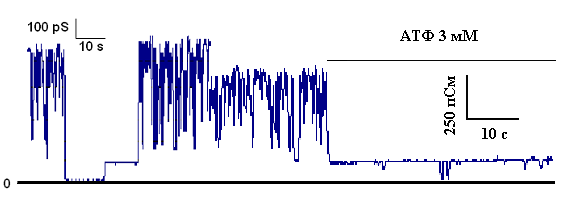 Рисунок
4. К+-транспортирующая
АТФ-ингибируемая
активность
белка с молекулярной
массой 55 кДа,
реконструированного
в искусственную
мембрану.
Электрофоретически гомогенный АТФ-ингибируемый К+-транспортирующий белок с Mr 55 кДа замораживали и накапливали для иммунизации. При выделении вышеописанным методом из 100 г печени крыс получали 30-70 мкг очищенного белка. Иммунизацию кроликов проводили при накоплении 0.2-0.4 мг белка.
3.2. Определение параметров дыхания у крыс с различной устойчивостью к гипоксии и адаптированных к ней
Определение проводилось с помощью кислородного электрода Кларка. Определялась скорость дыхания (V3) и скорость фосфорилирования АДФ (V2) в митохондриях печени и сердца трех групп крыс. Полученные данные представлены в таблице 5.
Как видно из таблицы 5, митохондрии печени высокоустойчивых к гипоксии крыс скорости дыхания во всех метаболических состояниях, а также в присутствии разобщителя ниже по сравнению с этими скоростями у низкоустойчивых животных. Этот эффект не зависел от наличия К+ в среде
| Среда |
Группы крыс |
V2, нмоль О2/мин*мг белка | V3, нмоль О2/мин*мг белка | V4, нмоль О2/мин*мг белка | VДНФ, нмоль О2/мин*мг белка | ДК |
| С ионами К+ | ВУ | 8.38±1.14 | 87.9±3.54 | 23.24±2.88 | 179.5±4.88 | 3.78±0.12 |
| НУ | 14.54±1.68 | 110.76±4.95 | 32.9±3.25 | 181.0±4.27 | 3.36±0.33 | |
| А | 11.46±1.32 | 68.03±4.76 | 24.7±2.65 | 94.4±4.12 | 2.75±0.21 | |
| Без ионов К+ | ВУ | 8.46±0.93 | 35.01±3.87 | 11.61±2.54 | 112±5.21 | 3.1±0.26 |
| НУ | 14.6±2.05 | 64.01±3.24 | 26.58±3.44 | 166.78±5.8 | 2.4±0.19 | |
| А | 8.76±1.39 | 45.95±4.77 | 19.92±1.76 | 79.55±4.22 | 2.3±0.14 |
инкубации митохондрий. Адаптация к гипоксии низкоустойчивых животных ведет также к снижению всех скоростей, однако, в присутствии ионов калия,
эти скорости дыхания снижаются не столь значительно. Последнее может указывать на активацию транспорта ионов К+ в митохондриях при адаптации животных к гипоксии. Следует отметить, что эти эффекты больше проявляются по отношению к скорости дыхания в присутствии субстрата (V2, V4) по сравнению со скоростью АДФ-стимулируемого дыхания (V3). Это может быть связано с увеличением концентрации АТФ в митохондриях после фосфорилирования добавленного АДФ. Как известно, АТФ ингибирует вход катионов К+ в митохондрии.
Обнаружено также, что у адаптированных к гипоксии животных дыхательный контроль в среде с ионами К+ снижен по сравнению с этим показателем у низкоустойчивых к гипоксии животных. Это снижение наблюдается только в среде, содержащей катионы К+, что может указывать на активацию энергозависимых процессов в митохондриях.
Совокупность полученных данных указывает на то, что 1) адаптация к гипоксии ведет к ингибированию работы фосфорилирующей дыхательной цепи, независимо от присутствия или отсутствия ионов К+ в среде, вероятно, за счет активации гликолиза и 2) адаптация ведет также к активации знергозависимого входа К+ в митохондрии.
Для подтверждения полученных данных у этих же животных были определены параметры АТФ-зависимого транспорта ионов К+ в митохондриях, а также количество катионов К+ в них.
3.3. Изучение параметров АТФ-зависимого транспорта
ионов калия в митохондриях
Исследование параметров проводилось на двух моделях:
А) Модель энергозависимого набухания митохондрий.
Увеличение концентрации ионов К+ матриксе провоцирует осмотически облигатное поступление воды и, следовательно, набухание митохондрий. Изменение объема митохондрий влияет на их оптическую плотность. Следовательно, активность канала можно определить методом динамической спектрофотометрии.
Скорость энергозависимого входа ионов К+ определялась у крыс с различной устойчивостью, а также адаптированных к гипоксии крыс. Данные представлены в таблице 6.
Из полученных данных следует, что скорость энергозависимого транспорта К+ значительно выше у высокоустойчивых и адаптированных к гипоксии крыс по сравнению с низкоустойчивыми животными.
| Субстрат | Показатель | НУ | А | ВУ |
| Сукцинат | Скорость, DD/мин*мг белка МХ | 0.452+0.074 | 0.566+0.146 | 0.626+0.122 |
| Малат + глутамат | Скорость, DD/мин*мг белка МХ | 0.339+0.032 |
0.548+0.038 |
0.537+0.156 |
Б) Модель энергозависимого набухания митохондрий.
При сильном разобщении митоК+АТФ способен опосредовать выход ионов К+ из матрикса, то есть обращать свою работу, наблюдаемую в физиологических условиях. Показано, что эта активность ингибируется АТФ, что доказывает специфичность выхода ионов К+ в данной модели именно через этот канал.
Скорость выхода катионов К+ определялась у всех групп крыс.
Данные полученные на модели ДНФ-индуцируемого выхода ионов К согласуются с данными, полученными на модели энергозависимого набухания митохондрий. То есть, указывают на изначально большую активность канала у высокоустойчивых крыс и повышение активности канала при адаптации. Данные представлены в таблице 7.
Таблица 7. Скорость ДНФ-индуцируемого выхода К+ из митохондрий печени животных с различной устойчивостью к гипоксии, а также адаптированных к гипоксии животных.
| Животные | Скорость, мкМ / мин*мг белка митохондрий | Скорость после добавления 800 мкМ АТФ, мкМ / мин*мг белка |
| А | 73.256±3.54 | 3,782±3.211 |
| ВУ | 70,02±3.76 | 6,18±3.742 |
| НУ | 42,309±3.86 | 3,537±2.349 |
3.4. Определение количества ионов К+ в митохондриях
различных групп крыс
Количество калия измеряется К-селективным электродом после добавления в среду тритона Х-100. Полученные данные представлены в таблице 8.
Таблица 8. Количество ионов калия в митохондриях печени животных с различной устойчивостью к гипоксии, а также адаптированных к гипоксии животных.
| Животные | Количество К+, мкМ / мг суммарного белка митохондрий |
| А | 73,85±3.654 |
| ВУ | 112,29±3.322 |
| НУ | 63,37±3.782 |
Исследования показали, что концентрация калия в МХ высокоустойчивых и адаптированных крыс ниже, чем у низкоустойчивых животных. Полученные данные указывают, что адаптация ведет не только к активации митохондриального АТФ-чувствительного калиевого канала, но и системы выброса калия из митохондрий, осуществляемого, обычно, К+/Н+-обменником. Таким образом, при адаптации активируется калиевый цикл в митохондриях.
Известно, что активация калиевого цикла, способствует слабому разобщению митохондрий, которое ведет к снижению мембранного потенциала. Согласно данным, обсуждаемым в обзоре, незначительное снижение мембранного потенциала ведет к существенному уменьшению продукции супероксиданиона [34]. Таким образом, митоК+АТФ участвует в регуляции образования АФК в митохондриях.
Недавно был обнаружен эффективный природный метаболический активатор митоКАТФ – уридин-5’-дифосфат (УДФ) [42]. Показано, что УДФ, а также УМФ и уридин обладают кардиопротекторными свойствами [9,40]. Использование метаболического активатора канала в качестве лекарственного средства будет иметь ряд преимуществ, по сравнению с их синтетическими аналогами, поскольку их концентрацию в клетке можно регулировать, и они не обладают побочными эффектами, присущими лекарственным препаратам.
Выводы
Выделен белок с молекулярной массой 55 кДа, являющийся канальной субъединицей митоКАТФ, изучены его некоторые физико-химические свойства.
При адаптации к гипоксии уменьшается скорость дыхания и окислительного фосфорилирования в митохондриях, независимо от присутствия или отсутствия К+ в среде.
Показано, что скорость как ДНФ-индуцированного выхода, так и энергозависимого входа ионов К+ в митохондрии выше у высокоустойчивых крыс по сравнению с низкоустойчивыми и повышается при адаптации.
Количество ионов К+ в митохондриях у высокоустойчивых ниже, а у адаптированных существенно ниже, чем у низкоустойчивых.
Список литературы
Лукьянова Л. Функционально-метаболические особенности животных с различной индивидуально резистентностью к гипоксии. // Проблемы гипоксии: молекулярные, физиологические и медицинские аспекты. - 2004, с. 156-170
Миронова Г., Маслова Т., Федотчева Н., Миронов Г. Эволюционные аспекты гипобиоза и зимней спячки. - Л., Наука; 1986; 64-68.
Миронова Г., Скарга Ю., Григорьев С. и др. АТР-зависимый калиевый канал митохондрий печени крысы. I. Выделение, очистка и реконструкция канала в БЛМ.// Биологические мембраны -1996; Т.13, № 4: 396-404.
Миронова Г., Федотчева Н., Макаров П., Проневич Л., Миронов Г.П. Белок из митохондрий сердца быка, индуцирующий канальную калиевую проводимость бислойных липидных мембран. // Биофизика, 1981 - 26(3): 451-457.
Сазонтова Т.Г., Архипенко Ю.В. Роль свободнорадикальных процессов в адаптации организма к изменению уровня кислорода// Проблемы гипоксии, 2004 – С. 112-138.
Скарга Ю.Ю., Долгачёва Л.П., Федотчева Н.И, Миронова Г. Влияние антител к митохондриальному К+-транспортирующему белку на транспорт К+ в митохондриях печени крысы. // Укр. Биохим. Журнал - 1987 - 59(6): 54-59.
Aguilar-Bryan L., Nichols C., Wechsler J. et al. Cloning of the beta cell high-affinity sulfonylurea receptor: a regulator of insulin secretion.// Science – 1995 - 268: 423-426.
Alekseev A.E., Brady P.A., Terzic A. Ligand-insensitive state of cardiac ATP-sensitive K+ channels. Basis for channel opening. //J. Gen. Physiol., 1998 - 111: 381-394.
Aussedat J, Ray A, and Rossi A. Uridine Incorporation in normal and ischaemic perfused rat heart.// Mol. Physiol, 1984 - 6: 247-56.
Bajgar R., Seetharaman S., Kowaltowski A.J., Garlid K.D., Paucek P. Identification and properties of a novel intracellular (mitochondrial) ATP-sensitive potassium channel in brain. //J. Biol. Chem. -2001 - 276: 33369-33374.
Beckman K., Ames B. Mitochondrial aging: open questions.// Ann. NY Acad.Sci. - 1998 - V 854. p 118-128.
Bednarczyk P., Dolovy K., Szewczyk A. Matrix Mg2+ regulates mitochondrial ATP-dependent potassium channel from heart.// FEBS., 2005 - 579: 1625-1632.
Bhattacharyya D. Purification and functional characterization of a low-molecular-mass Ca2+,Mg2+- and Ca2+-ATPase modulator protein from rat brain cytosol// Biochem. J – 1998 vol 330 p 95- 101
Chaves E., Yung D., Brierley G. Energy-dependent exchange of K+ in heart mitochondria, K+ efflux. Arch. Bioch. //Biophys. 1977 - 183: 460-470.
Dahlem Y., Horn T., Butinas L., Gonoi T., Wolf T., Siemen D. The human mitochondrial KATP channel is modulated by calcium and nitric oxide: a patch-clamp approach.// Biochеm. Biophys. Acta., 2004 - 1656: 46-56.
D’Hahan N., Moreau C., Prost A., Jacquet H., Alekseev A., Terzic A., Vivaudou M. Pharmacological plasticity of cardiac ATP-sensitive potassium channels toward diazoxide revealed by ADP. // Proc Natl Acad Sci U S A, 1999 - 96: 11962–11967.
Diwan J.J., Haley T., Sanadi D.R. Reconstitution of