Состояние глутатионового звена антиоксидантной системы крови практически здоровых людей с лор-паталогиями, проживающих в различных районах города Красноярска
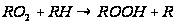
Органические перекиси (RООН) включаются в процесс генерации радикалов, в присутствии металлов переменной валентности (меди, кобальта, марганца, железа) происходит образование реакционного алкоксильного радикала:
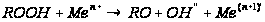
Часть образующихся органических радикалов взаимодействует друг с другом, при этом происходит образование неактивных молекул, что обрывает ход реакций свободнорадикального окисления. Гидроперекиси липидов способны подвергаться нерадикальным окислительным превращениям, что приводит к образованию первичных (диеновые коньюгаты, диальдегиды), промежуточных (основания Шиффа) и конечных продуктов ПОЛ, а также спиртов, кетонов и альдегидов. Обрыв цепных реакций перекисного окисления возможен при взаимодействии радикалов со специализированными ферментными системами, а также с рядом низкомолекулярных веществ, совокупно формирующих биохимический компонент антиоксидантной системы организма [Меньщикова с соавт., 2006].
Одним из конечных продуктов ПОЛ является насыщенные низкомолекулярные углеводороды (этан, гексан, пентан), которые в нормальных условиях переходят в газообразное состояние.
Идентифицировано
более 20 типов
окислительных
повреждений
молекул нуклеиновых
кислот: различные
повреждение
оснований,
возникновение
одно- и двух
цепочечных
разрывов, сшивок
и хромосомных
аберраций.
Прямое действие и
 на ДНК не
вызывает повреждения
оснований или
образования
сшивок между
основаниями.
Основным повреждающим
агентом выступает
OH-радикал,
который эффективно
взаимодействует
с дезоксирибозой,
пуриновыми
и пиримидиновыми
основаниями.
Синглетный
кислород более
специфично,
чем
 ,
взаимодействует
с гуанином.
Перексинитрит
вызывает
нитрозилирование
и дезаминирование
аминогрупп
в основаниях
ДНК, при этом
8-нитрогуанин
является индикатором
повреждающего
действия
пероксинитрита.
В условиях
окислительного
стресса в наибольшей
степени повреждается
ДНК митохондрий,
что связано
с низкой активностью
систем репарации
и низким содержание
гистоновых
белков, оказывающие
защитное действие
[Зенков, Менщикова,
Шергин, 1993].
1.3. Характеристика антиоксидантной системы
В процессе эволюции в клетках для защиты от АФК выработались специализированные системы: ферментативная антиоксидантная система (АОС) и неферментативная АОС. В качестве неферментативной АОС могут выступать: жирорастворимые антиоксиданты (витамин Е, β-каротин, убихиноны) [Абрамова, 2004], водорастворимые (аскорбат, рутин, глутатион). Гидрофобные антиоксиданты локализованы в биомембраннах, гидрофильные - в цитозоле клетки.
Ферментативная АОС включает: супероксиддисмутазу (SОD), катализирующую реакцию дисмутации О2ˉ в Н2О2, каталазу (CАТ), разлагающей Н2О2, глутатионпероксидазу (GPO), глутатион-S- трансферазу (GSТ), глюкозо-6-фосфатдегидрогеназу (G6FD), глутатионредуктазу (GR), глутатионзависимые ферменты удаляют органические перекиси [Брискин, Рыбаков 2000].
Супероксиддисмутаза имеет несколько изоферментных форм, различающихся строением активного центра. Медь-цинковая форма чувствительна к цианиду и содержится в цитозоле и межмембранном пространстве митохондрий клеток эукариот, марганецсодержащая форма локализована в митохондриях клеток эукариот, а так же бактерий, экстрацеллюлярная высокомолекулярная форма SOD (Э-SOD) [Биленко,1999]. Э-SOD обладает высоким сродством к гепарину и хорошо связывается с гепаринсульфатом гликокаликса эндотелиоцитов. Нативная форма SOD выдерживает нагревание при 100єС в течение одной минуты, устойчив к колебаниям значений pН в широком диапазоне. SOD существенно ускоряет реакцию дисмутации О2ˉ, обрывая тем самым опасную цепь свободнорадикальных превращений кислорода:
О2ˉ + О2ˉ → H2O2 + O2
HO + HO. → H2O2 + O2
HO.2 + Н+ → H2O2 + O2
В определенных условиях медьсодержащая форма SOD может взаимодействовать с перекисью водорода и выступать в качестве прооксиданта, инициируя образование радикалов – супероксида и гидроксила:
Cu2+-СОД + H2O2 ←→ Cu+-СОД + 2Н+ + О2ˉ
Cu+-СОД + H2O2 ←→ Cu2+-СОД + ОН. + ОН+
СОД играет важную роль в защите клеток от действия супероксид-анион радикала, стабилизирует клеточные мембраны, предотвращая процессы ПОЛ, снижая уровень О2ˉ, она защищает от его дезактивирующего действия CAT и GPO [Александров,2007].
Регулирующее влияние на активность SOD оказывают глутатион, цистеин, другие SH-содержащие соединения, а также опосредованно ферменты глутатионового обмена [Зенков, Меньщикова, 2004].
Каталаза – фермент, участвующий в детоксикации нерадикальной активной формы кислорода – Н2О2. Эта гемсодержащий фермент, локализованный преимущественно в пероксисомах клеток. Большая молекулярная масса фермента препятствует его проникновению через клеточную мембрану [Биленко, 1999]. Разложение Н2О2 каталазой осуществляется в два этапа.
CAT + Н2О2 → CAT - Н2О2
CAT - Н2О2 + Н2О2 → CAT + 2Н2О + О2
При этом в окисленном состоянии каталаза работает и как пероксидаза, катализируя окисление спиртов или альдегидов:
CАТ - Н2О2 + >CHOH → CАТ + 2Н2О + >C=O
Каталаза ингибируется азидом, цианидом, пероксидом водорода в высоких концентрациях и некоторыми органическими гидроперекисями. Каталаза может выступать источником образования АФК. 0,5% кислорода, образующегося в результате разложений перекиси водорода, возникает в возбужденном синглетном состоянии.
Глутатионпероксидаза – фермент, служащий для инактивации перекиси водорода в клетках высших животных. GPO– гликопротеин, имеющий в активном центре четыре атома селена. Он является гидрофильным соединением, что затрудняет его проникновение в липидный слой мембран, основная часть фермента локализована в цитозоле, а остальная – в митохондриях. GPO имеет селеновые изоферменты: внеклеточное GPO, обнаруженная в плазме и молоке, GPO– G1, выделенная из цитозоля клеток печени и кишечника, а также неселеновый изофермент, идентичный GSТ.
«Классическая» GPO представляет собой тетрамер, состоящий из четырех идентичных сферических субъединиц. Каждая субъединица содержит по одному атому селена, на тетрамер имеется два активных GSH-связывающих центра. При уменьшении уровня GPO снижается устойчивость организма к окислительному поражению, что может приводить к развитию свободнорадикальной патологии [Белоусов, Суслова, Трунова, 1998].
GPO катализирует реакцию восстановления глутатионом нестойких органических гидропероксидов, включая гидропероксиды полиненасыщенных жирных кислот, стабильные соединения – оксикислоты:
2GSH + ROOH → GSSG + ROH + H2O
Все GPO, подобно каталазе, способны также утилизировать перекись водорода:
2GSH + H2O2 →GSSG + 2H2O
Также селенсодержащая GPO участвует в обезвреживании пероксинитрита:
2GSH + ONOO- → GSSG + NO + H2O
Сродство GPO к Н2О2 выше, чем у каталазы, поэтому первая более эффективно работает при низких концентрациях перекиси водорода, в то же время в защите клеток окислительного стресса, вызванного высокими концентрациями Н2О2, ключевая роль принадлежит каталазе. В целом же, GPO значительно важнее, чем каталаза, так как каталаза сосредоточена в микросомах, а GPO – в цитозоле и митохондриях, сродство GPO к пероксиду водорода значительно выше, поэтому Н2О2 элиминируется GPO, в некоторых тканях каталаза почти ответствует и GPO играет главную роль в валовом метаболизме Н2О2 [Зубакова, Варакина, Николенко, 1999]. В клетках млекопитающих также обнаружен изофермент GPO, названный «GPO гидроперекисей фосфолипидов». Изофермент помимо Н2О2 и липидных гидроперекисей способен восстанавливать гироперекиси фосфолипидов, он эффективно взаимодействует с гидроперекисями фосфотидилхолина, холестерина и эфира холестерина в мембранах и липопротеинах низкой плотности. Совместно с токоферолом GPO гидроперекисей фосфолипидов практически полностью подавляет ПОЛ в биомембранах.
Активность GPO в живых клетках увеличивается при действии ионизирующей радиации, интоксикации этанолом, акрилонитрилом, при Е-авитаминозе. Особо важна роль GPO в условиях окислительного стресса, так как он предупреждает возникновение и развитие пероксидации, устраняет ее источники и продукты, GPO – является одним из важнейших компонентов ферментативной АОС [Брискин, Рыбакова, 2000].
Глутатион-S-трансфераза входит в семейство ферментов, нейтрализующих токсическое влияние различных гидрофобных и электрофильных соединений путем их коньюгации с восстановленным глутатионом, GST локализованы преимущественно в цитозоле клеток. Основная функция GST-защита клеток от ксенобиотиков и продуктов ПОЛ посредством их восстановления, присоединения к субстрату молекулы глутатиона или нуклеофильного замещения гидрофобных групп:
ROOH + 2GSH → ROH + GSSG + H2O
R + GSH → HRSG
RX + GSH → RSG + HX
GST способны восстанавливать гидроперокси-группы окисленных фосфолипидов непосредственно в мембранах без их предварительного фосфолипидного гидролиза свободными жирными кислотами. Этот фермент конъюгирует с GSН токсичные продукты ПОЛ (ноненали, децинали, холестерин-α-оксид) и тем способствуют их выведению из организма. Таким образом, GST является важным компонентом антиоксидантной защиты, особенно от эндогенных метаболитов, образующих при окислительном стрессе [Владимиров, 1998].
Глутатионредуктаза. Во многих реакциях, катализируемых GPO и GST, две молекулы GST соединяются дисульфидной связью и образуют окисленный глутатион. Для восстановления GSSG в клетках существует специальный фермент – глутатионредуктаза [Зенков, Меньщикова, 2004].
ГР широко распространенный флавиновый фермент, поддерживающий высокую внутриклеточную концентрацию GSH, катализируя обратимое NFDFH– зависимое восстановление GSSG с образованием двух молекул GSH.
GSSG + NADFH + H+ → 2GSH + NADF+
ГР содержится в основном в растворимой части клетки.
Глюкоза-6-фосфатдегидрогеназа. Для восстановления окисленного глутатиона ГР в качестве донара водорода используется NADFH, который образуется в пентозофосфатном пути в ходе глюкозо-6-фосфатдегидрогеназной реакции [Андреев, 1999]
G6FD – фермент, катализирующий начальную реакцию пентозофосфатного пути: восстановление глюкозо-6-фосфата в 6-фосфоглюконат. Она состоит из двух типов субъединиц, которые состоят из 479 аминокислотных остатков, имеют один и тот же СООН - концевой участок, но разные NH2-концы, Эти субъединицы различаются по длине и последовательности аминокислот. Реакцию, катализируемую G6FD, с кинетической точки зрения можно рассматривать как двухсубстратную реакцию, протекающую с участием субстрата и кофермента, выполняющего роль второго субстрата. Фермент очень сильно ингибируется NADFH и ATF, по типу конкурентного ингиирования.
Глутатион – трипептид (L-γ-глутамил-L-цистеинилглицин), который при физиологических значениях рН имеет две отрицательно заряженные карбоксильные группы и положительно заряженную аминогруппу.
Наличие γ-глутамильной связи защищает трипептид от деградации внутриклеточными пептидазами, а сульфгидрильная группа цистеина может служить донором электронов, придавая глутатиону свойства восстановителя и способность удалять свободные радикалы. Одноэлектронная реакция GSH со свободными радикалами приводит к образованию тиильного радикала GS., который при димеризации с другим GS. радикалом дает дисульфид глутатиона (GSSG). Второй тип окислительно-восстановительных реакций, в которых принимает участие глутатион - это реакции тиол-дисульфидного обмена [Brune,1995]. При окислительно-восстановительных реакциях третьего типа происходит двухэлектронное окисление с образованием интермедиата, который затем реагирует со второй молекулой, идентичной первой или отличной от нее. При этом в первом случае образуется GSSG, а во втором-смешанный дисульфид.
В клетках всех типов GSH синтезируется в ходе двух последовательных реакций, катализируемых γ-глутамилцистеинсинтетазой (γ-GCS) и GSН-синтетазой (GS). γ-GCS катализирует образование пептидной связи между γ-карбоксильной группой глутамата и α-аминогруппой цистеина. Глутатионсинтетаза образует пептидную связь между α-карбоксильной группой цистеина в составе γ-глутамилцистеина и α-аминогруппой глицина. Обе реакции являются ATF-зависимыми, имеют сходный каталитический механизм и протекают через образование ацилфосфатного интетрмедиата [Davies,1995].
Статус глутатиона определяется как общая концентрация глутатиона и количественное соотношение между различными формами, в которых он существует в клетке. Статус глутатиона обусловлен динамическим равновесием между реакциями синтеза, деградации, транспорта, окисления и восстановления и поэтому может изменяться в зависимости от преобладания тех или иных реакций, что определяется состоянием клетки и окружающей среды. Изменение статуса GSH может наблюдаться как при нормальных физиологических ситуациях, так и при стрессах. Для ингибирования синтеза GSH у эукариот широко используется ингибитор γ-глутамилцистиинсинтетазы [Gebhardt,1984].
Редокс-активность глутатиона при одновременной его устойчивости к окислению кислородом, высокая концентрация и возможность поддержания в восстановленном состоянии делают GSH важнейшим внутриклеточным редокс-буфером. Редокс система глутатиона включает в себя сам глутатион, GPO и ГSТ [Davies,1995].
GSH реагирует с очень большим числом электрофильных компонентов с образованием GSH-конъюгатов. Эта реакция может происходить спонтанно или катализироваться ферментами GSТ, затем коньюгаты деградируют до относительно безвредных меркаптуровых кислот. Глутатион также участвует в детоксикации некоторых реактивных альдегидов, которые могут образовываться при окислительных процессах в клетках. У эукариот глутатион играет ключевую роль в защите от окислительного стресса как кофактор селенозависимых и независимых GPO (Рис. 2). При окислительном стрессе идет интенсивное окисление GSH, и снижение соотношения GSH/GSSG является одним из основных признаков окислительного стресса в клетках [Brune,1995].
Защита живых организмов от окислительных повреждений не ограничивается рассмотренными выше антиоксидантными системами, а осуществляется так же большим количеством репарационных систем, специфическими протеолитическими ферментами; макрофагами и гепатоцитами, эффективно захватывающими окисленные липопротеины через специальные «скэвенджнр-рецепторы». Эта еще раз свидетельствует о важности и сложности окислительных процессов с участием АФК, протекающих в живом организме.
ГЛАВА 2. МАТЕРИАЛЫ И МЕТОДЫ
2.1. Объект исследования
Объектом исследования явились эритроциты крови практически здоровых людей, проживающих в Советском и Октябрьском районах г. Красноярска, а так же эритроциты крови людей с ЛОР-патологиями.
Всего обследовано 131 человек в возрасте от 18 до 54 лет, забор материала исследования проводился в клиническо-диагностической лаборатории ГУ НИИ медицинских проблем Севера СО РАМН. Группу контроля составили 102 практически здоровых человека, неболевших острыми респираторными заболеваниями в течение последнего месяца и не имеющих хронических ЛОР-заболеваний. Здоровые люди были отобраны в 2-х районах города Красноярска ЛОР-врачом по данным клинического осмотра. Группа людей с ЛОР-заболеваниями составила 29 человек, проживающих в различных районах г. Красноярска.
Таблица 1
Характеристика материала исследования и объёма проведенных работ
| Методы исследования | Здоровые | ЛОР-больные | Всего |
|
Определение содержания GSH в эритроцитах крови Определение активности GPO в эритроцитах крови Определение активности GST в эритроцитах крови Определение активности GR в эритроцитах крови Определение содержания гемоглобина в эритроцитах крови |
91 89 90 67 91 |
29 20 28 6 29 |
120 109 118 73 120 |
| Всего | 428 | 112 | 540 |
Определение активности глутатионзависимых ферментов – GPO, GST и GR, а так же содержание GSH проводили в упакованных эритроцитах крови (табл. 1).
2.2. Приготовление эритроцитов
Гепаринизированную кровь центрифугируют 20 минут при 3000 об/мин. (1700g). После центрифугирования убирают слой плазмы и тонкую белую лейкоцитарную пленку. Плазму отбирают отдельно и сохраняют. Оставшуюся после отбора плазмы эритроцитарную массу трижды отмывают физиологическим раствором (0,9%-ным NaCl) и центрифугируют по 15 минут при 3000 об/мин. (1700g). Супернатант отбрасывают. Последнее центрифугирование проводят в течение 20 минут для более плотной упаковки клеток [Авраамова, Титова, 1978].
2.3. Определение содержание гемоглобина
Содержание Hb определяют унифицированным гемиглобинцианидным методом с использованием набора реактивов фирмы “Агат-Мед”.
Принцип метода заключается в следующем: Hb крови при взаимодействии с железосинеродистым калием (красная кровяная соль) окисляется в Met-Hb, образующий с ацетонциангидрином гемиглобинцианид (цианметгемоглобин), оптическая плотность которого при 540 нм пропорциональна концентрации Hb в образце крови [Меньшиков, 1987]. Содержание Hb в опытных образцах выражали в граммах на литр упакованных эритроцитов.
Реактивы:
1. Трансформирующий реагент – сухая смесь натрий углекислый кислый, 1,0г, калий железосинеродистый, 200 мг.
2. Ацетонциангидрин.
3. Калибровочный раствор гемоглобин с концентрацией 120 г/л.
Ход определения
К 5 мл трансформирующего
раствора добавляют
0,02 мл крови (разведение
в 251 раз) или гемолизата,
хорошо перемешивают.
Определение
проводят через
10 минут против
холостой пробы
(трансфор мирующего
раствора), окраска
устойчива в
течение не
менее 1 часа.
При использовании фотоколориметра определение проводят в диапазоне длин волн 500-560 нм (зелёный светофильтр). Калибровочный раствор гемоглобина обрабатывают также, как и пробу цельной крови. Расчёт содержания гемоглобина производят по формуле:
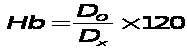 ,
где:
Hb – содержание гемоглобина в опытной пробе, г/л;
Dо – оптическая плотность опытной пробы;
Dx – оптическая плотность калибровочной пробы;
120 – содержание гемоглобина в калибровочном растворе, г/л.
2.4. Определение количества восстановленного глутатиона
Принцип метода основан на взаимодействии GSH с ДТНБК (5,5’-дитио-бис-2-нитробензойной кислотой) с образованием окрашенного в желтый цвет аниона 2-нитро-5-тиобензоата. Увеличение концентрации желтого аниона в ходе данной реакции регистрировали спектрофотометрически при длине волны 412 нм [Beutler, 1990].
Ход определения
Готовим гемолизат добавлением 0,2 мл отмытых от плазмы и упакованных эритроцитов к 1,8 мл дист. Н2О, охлаждённой до 0єС. Для осаждения белков к гемолизату добавляли 3 мл осаждающего раствора. Пробы тщательно перемешивали и после 20 минутного стояния при комнатной температуре фильтровали через крупнопористый фильтр. Фильтрат должен быть прозрачным и бесцветным. 1 мл фильтрата помещали в спектрофотометрическую кювету объёмом 3 мл, добавляли 4 мл фосфатного буфера. Затем в пробу вносили 500 мкл раствора ДТНБК. Сразу же после перемешивания должна появиться жёлтая окраска из-за образования дисульфида глутатиона с ДТНБК. Пробу фотометрировали при длине волны 412 нм в кювете с толщиной слоя 1,0 см. Поскольку раствор ДТНБК имеет слабожелтую окраску, параллельно с опытной пробой готовили контрольную, содержащую вместо фильтрата осаждающий раствор, разведённый дист. Н2О в отношении 2:5.
Реактивы:
1. Осаждающий раствор: 1,67 г ледяной ортофосфорной кислоты, 0,2 г ЭДТА и 30 г хлористого натрия растворяли в дист. Н2О и доводили до метки 100 мл.
2. Фосфатный буфер: 0,3 М Na2HPO4
3. ДТНБК: 0,02%-ный раствор, приготовленный на 1%-ном растворе цитрата натрия
Содержание восстановленного глутатиона рассчитывали с учетом коэффициента молярной экстинкции (13600 М-1ґсм-1) окрашенного аниона, образующегося при взаимодействии GSH с ДТНБК и выражали в мкмоль на грамм Hb.
Содержание глутатиона рассчитывают по формуле:
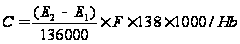 ,
где:
С – концентрация восстановленного глутатиона, мкмоль/г Hb;
Е1 – оптическая плотность опытной пробы до добавления ДТНБК;
Е2 – оптическая плотность опытной пробы после добавления ДТНБК;
138 – разведение эритроцитов в реакционной пробе;
Hb – гемоглобин, г/л;
1000 – коэффициент для пересчета концентрации глутатиона от молярной к миллимолярной;
F – отношение оптической плотности контрольной пробы до добавления ДТНБК (Е1 ) и после добавления (Е2 );
13600 – коэффициент молярной экстинции окрашенного катиона, образующегося при взаимодействии GSH с ДТНБК;
2.5. Определение активности глутатионпероксидазы
Принцип метода: глутатионпероксидаза катализирует реакцию взаимодействия GSH с гидроперекисью трет-бутила (ГПТБ). Активность фермента при этом может быть оценена по изменению содержания GSH в пробах до, и после инкубации с модельным субстратом в ходе цветной реакции с ДТНБК [Paglia, Valentine, 1967].
Ход определения
Отмытые и упакованные эритроциты гемолизировали охлаждённой до 0єС водой в соотношении 1:200. 0,2 мл гемолизата смешивали с 0,73 мл сложного буфера и термостатировали 10 мин при 37°С. Реакцию инициировали внесением в реакционную смесь 0,07 мл 0,14%-ного раствора ГПТБ (коммерческий препарат). Строго по секундомеру через 5 мин инкубации при 37°С реакцию останавливали добавлением 0,2 мл 20%-ного раствора ТХУ. В контрольные пробы 0,14%-ный раствор ГПТБ вносили после осаждения белка ТХУ. Полученные пробы центрифугировали при 1700g в течение 10 мин. Супернатант использовали для определения количества восстановленного глутатиона: к 0,1 мл супернатанта добавляли 2,65 мл 0,1 М трис-HCl буфера. После перемешивания пробы фотометрировали на СФ-26 при длине волны 412 нм в кювете с длиной оптического пути 1,0 см против дист. Н2О. Активность фермента в эритроцитах выражали в мкмолях GSH, окисленного за 1 минуту на грамм Hb, используя коэффициент молярной экстинкции (13600 М-1ґсм-1) окрашенного аниона, образующегося при взаимодействии GSH с ДТНБК.
Реактивы:
1. Сложный буфер: 0,1М Трис-HCl-буфер, pH8,5, содержащий 6мМ ЭДТА и 12мМ азид натрия. Непосредственно на этом буфере готовят 4,8 мМ раствор GSH
2. 0,14%-ный раствор трет-бутил гидропероксида
3. 20%-ный раствор ТХУ
4. 0,1 М трис-HCl буфер, pH8,5
5. ДТНБК на абсолютном метаноле, 0,01М
Активность рассчитывают по формуле:
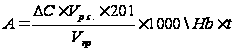 ,
где:
А - активность фермента, мкмоль/минЧл;
∆С – разность концентраций GSH в опытной и контрольной пробах;
Vпр. – объем пробы, используемый для определения концентрации GPO
t – время инкубации;
Vр.с..- объем реакционной смеси;
201 – степень разведения эритроцитов в гемолизате;
1000 – коэффициент для пересчета активности GPO от молярной к миллимолярной;
Hb – гемоглобин г/л;
Активность GPO можно также выразить в мкмольмин на 1 г Hb
2.6. Определение активности глутатион-S-трансферазы
Принцип метода: активность глутатион-S-трансферазы определяли по скорости образования глутатион-S-конъюгатов между GSH и 1-хлор-2,4-динитробензолом (ХДНБ).
Увеличение концентрации конъюгатов в ходе реакции регистрировали спектрофотометрически при длине волны 340 нм (максимум поглощения глутатион -S- ХДНБ) [Habig et al., 1974].
Ход определения
Источником фермента служил осмотический гемолизат, который готовили добавлением к одному объему упакованных эритроцитов двадцати объемов дист. Н2О, охлажденной до 0°С. В кювету с длиной оптического пути 1,0 см, содержащую 2,5 мл 0,1 М калий-фосфатного буфера рН=6,5, добавляли 0,2 мл 0,015 М раствора восстановленного глутатиона и 0,1 мл гемолизата. Реакцию инициировали внесением в кювету 0,2 мл 0,015М ХДНБ (готовили на абсолютном метаноле). Параллельно опытной готовили контрольную пробу, в которую вместо гемолизата вносили дист. Н2О. Регистрацию оптической плотности проводили при t=25°C и длине волны 340 нм против воды сразу после перемешивания в течение трех минут. Активность фермента рассчитывали, используя коэффициент экстинкции для ГS-ХДНБ при длине волны 340 нм, равный 9,6 мМ-1*см-1, и выражали в ммолях образующихся глутатион S-конъюгатов в минуту на грамм Hb.
Реактивы:
1. 0.1М калий – фосфатный буфер РН6,5;
2. 0.015М раствор GSН;
3. 0.015М раствор ХДНБ.
Активность GPO рассчитывают по следующей формуле:
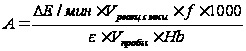
где:
А – активность фермента, мольминЧHb
∆E – изменение оптической плотности в мин.
d – толщена кюветы (1см)
f – коэффициент разведения эритроцитов в пробе
ε – коэффициент молярной экстинкции при χ=340нм (9600М-1Чсм-1)
Hb – гемоглобин г/л
1000 – коэффициент для пересчета активности GST от молярной к миллимолярной;
Vпр. – объем пробы, используемый для определения активности GST
Vр.с..- объем реакционной смеси;
2.7. Определение активности глутатионпероксидазы
Принцип метода: определение активности глутатионредуктазы основано на измерении скорости окисления NADPH, которая регистрируется спектрофотометрически по уменьшению оптической плотности при длине волны 340 нм .
Для определения активности глутатионредуктазы использовали осмотический гемолизат, приготовленный следующим образом. К одному объему упакованных и отмытых от плазмы эритроцитов добавляли девяти кратный объем холодной дистиллированной воды.
Ход определения:
В спектрофотометрическую кювету с расстоянием между рабочими гранями 10 мм последовательно вносят 2,7 мл калий-фосфатного буфера, 0,1 мл раствора NADPH, 0,1 мл гемолизата и 0,1 мл раствора GSSG. Реакция запускается добавлением в пробу окисленного глутатиона. Смесь перемешивают. Изменеие оптической плотности регистрируют через 1 минуту в течение 3 минут против пробы, содержащей все компоненты, кроме GSSG.
Реактивы:
1. 50 мМ калий-фосфатный буфер , рН 7,0, содержащий 1мМ EDTA;
2. 0,1 мМ раствор NADPH;
3, 0,5 мМ раствор окисленного глутатиона (хранят в замороженном виде).
Активность фермента выражают в мкмолях ¤г Hb в минуту. Расчет производят по формуле:
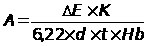 ,
где:
А – активность глутатионредуктазы;
DЕ – изменение оптической плотности;
К – коэффициент, учитывающий разведение эритроцитов в реакционной пробе, равный 300;
6,22 – коэффициент экстинкции для NADPH в см-1/мМ-1, при длине волны 340 нм;
t – время наблюдения, мин;
d – расстояние между рабочими гранями кюветы (10 мм);
Hb – гемоглобин в г/л.
2.8. Статистическая обработка результатов
В работе использованы стандартные статистические приемы подсчета, медианы, определения 25 и 75 перцентеля с помощью пакета прикладных программ Statistica 7.0. Достоверность полученных данных оценивали с помощью непараметрического критерия Манна-Уитни, с достоверностью Р<0,05, корреляционный анализ по Спирману.
ГЛАВА 3. РЕЗУЛЬТАТЫ ИССЛЕДОВАНИЙ И ИХ ОБСУЖДЕНИЕ
3.1. Анализ содержания GSH и активности глутатионзависимых ферментов в эритроцитах крови практически здоровых людей и людей с ЛОР-заболеваниями
Воздушные загрязнения играют ключевую роль в развитии окислительного стресса, который является причинной развития патологии дыхательной системы [Менщикова, 2008]. Особое положение, которое занимает эпителий легкого в отношении организма с насыщенной кислородом внешней средой, делает его объектом токсичного действия радикалов экзогенного и эндогенного происхождения. Острые респираторные заболевания являются главной причиной детской смертности: от пневмонии ежегодно в мире умирает более 4 млн. детей. В последние десятилетия наблюдается рост числа хронических неспецифических заболеваний легких, в настоящее время они занимают 3-е место среди причин смертности, в северных регионах на них приходится на 2/3 всех дней нетрудоспособности [Менщикова, 2008].
Проведенные исследования показали, что содержание восстановленного глутатиона у ЛОР-больных людей в 1,29 раза ниже, чем у практически здоровых людей. Активность GPO и GST в эритроцитах у ЛОР-больных людей снижается в 2,77 и 1,46 раз соответственно, по сравнению с активностью исследуемых показателей в эритроцитах практически здоровых людей. По активности GR достоверных отличий между исследуемыми группами не обнаружено. Полученные данные приведены в табл. 2.
Изменения содержания GSH и активности глутатионзависимых ферментов может быть обусловлено увеличением образования АФК при ЛОР-патологиях, поскольку процесс развития острых респираторных заболеваний сопровождается генерацией большого количества АФК [Miller, 1995]. Ингаляция атмосферных прооксидантных поллютантов приводит к увеличению количества альвеолярных макрофагов [Martin, 1985]. При контакте с мембраной альвеолярного макрофага частицы воздуха интенсивно повышают уровень потребления клеткой кислорода. Практически весь дополнительно поглощенный кислород не используется ни на энергетические, ни на пластические потребности клетки. Особая ферментная система фагоцитов, встроенная во внешнюю клеточную мембрану – NADPH-оксидаза изменяет электронную структуру молекулы кислорода, превращая его в главное оружие бактерицидной защиты клетки – кислородные радикалы. Прооксиданты повышают проницаемость эпителия, повреждают фибробласты, снижают выработку суперксидного аниона полимофноядерными нейтрофилами. Повреждающее действие АФК заключается в увеличении эпителиальными клетками слизи с высоким молекулярным весом, ослаблении функции ресничек, стимуляции образования тромбоксана, снижении сурфактантной активности [Lee, 1997].
Таблица 2
Содержание GSH и активность глутатионзависимых ферментов в эритроцитах крови практически здоровых и ЛОР-больных людей
| Показатели | Здоровая группа Median |
ЛОР-группа Median |
Достоверность отличий |
|
GSH Мкмоль/гHb |
2,58 1,60 4,87 N=91 |
2,00 1,49 2,16 N=29 |
Р<0,05 |
|
GPO Мкмоль/мин*гHb |
28,16 17,94 44,50 N=89 |
10,17 8,36 30,50 N=20 |
Р<0,05 |
|
GST Моль/мин*гHb |
12,14 10,03 14,14 N=90 |
8,33 5,19 11,40 N=28 |
Р<0,05 |
|
GR Моль/мин*гHb |
10,59 7,00 13,06 N=67 |
11,33 10,00 13,64 N=6 |
нет |
Найденное нами снижение активности ферментов глутатионового метаболизма также может быть связано с непосредственным модифицирующим действием АФК, на ферментативные белки. Так Devies K.J. и сотрудники (1987) показали в опытах in vitro, что НО· или НО· + О`2 вызывают изменение первичной, вторичной и третичной структур белковой молекулы. На примере большого количества белков авторы выявили высокую их чувствительность к действию АФК, что сопровождается в зависимости от типа АФК либо фрагментацией, либо агрегацией белковых молекул. Так, для большинства белков интенсивное воздействие радикалов НО· приводит к их агрегации, но в присутствии О`2 предпочтительным процессом становится фрагментация белковых макромолекул. Следствием таких структурных повреждений является, в частности, резкое повышение чуствительности белков к протеолитической деградации [Devies, 1995; Дубинина, 2001; Пасечник, 2001]. Окисление отдельных аминокислот (серосодержащих, ароматических и других) ферментов сопровождается изменением ферментативной активности и структуры белка [Devies, 1995]. При этом окисленные белки способны выступать в качестве источника свободных радикалов и истощать запасы клеточных антиоксидантов, таких как аскорбиновая кислота и глутатион [Simpson, 2002; Dean, 2007; Cakatay, 2000]. In vitro показано, что продукты CРО белков опосредуют окислительное повреждение ДНК [Halliwell, 2001; Morin, 1998]. Таким образом, окисленные протеины являются не только «свидетелями», но и активными участниками процесса свободнорадикального повреждения.
Модификации под действием АФК могут подвергаться все аминокислотные остатки, но наиболее чувствительными являются остатки триптофана, тирозина, гистидина и цистеина. Кроме того, отмечена роль окислительной модификации лизина, аргинина, пролина и серина [Devies, 1995; Арчаков, 1989; Пасечник, 2001]. К тому же при наличии в среде SH-содержащих соединений они подвергаются окислению в первую очередь, что предохраняет от окисления другие функциональные группы и