Фізіологія рослинної клітини
У вищих рослин усі типи пластид утворюються з про пластид, що є присутніми у клітинах меристематичних тканин. Їхня внутрішня мембрана має лише невеликі інвагінації (утягування). Якщо такі структури зберігаються в зрілих клітинах, їх називають лейкопластами. Оскільки в лейкопластах відкладаються запасні речовини, то назву вони одержують залежно від типу запасної сполуки : якщо запасається крохмаль – амінопласти, жири – олеопласти, білки - протеїнопласти. Етіопласти утворюються при вирощуванні рослин у темряві. При освітлені вони перетворюються в хлоропласти.
Хлоропласти - зелені пластиди рослин. У них здійснюється – фотосинтез. Це овальні тіла довжиною 5-10 мкм і 2-3 мкм у діаметрі (рис.1.21).
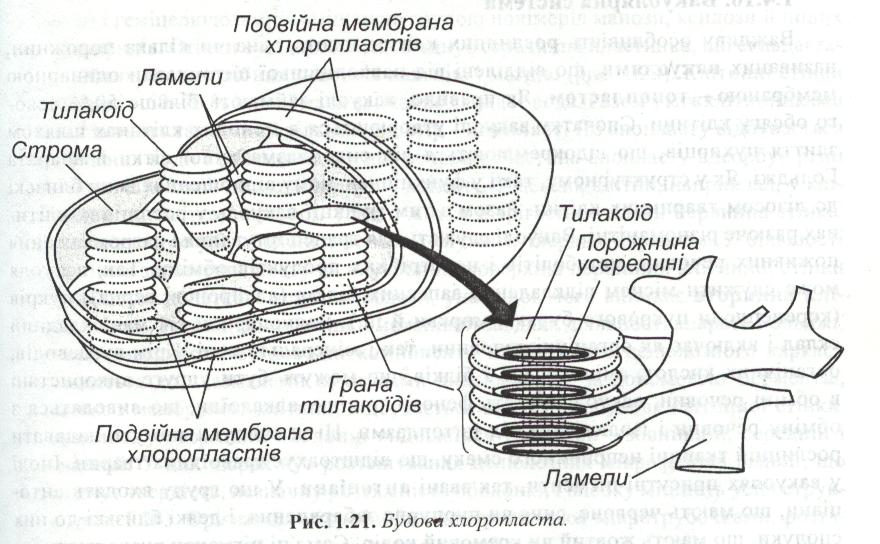
Внутрішня мембрана утворює безліч плоских, заповнених рідиною мішків, так званих тилакоїдів. Декілька таких телакоїдів формують купку - грану. Окремі грани хєднані довгими поодинокими тилакоїдами – ламелами. На мембранаї тилакоїдів локалізовані зелені пігменти – хлорофіли, а також жовті і червоні – каротиноїди. На мембранах тилакоїдів відбуваються світові реакції фотосинтезу. Внутрішнє, гомогенне середовище хлоропластів називається стромою. У ній знаходяться розчинні ферменти, що здійснюють темнові реакції фотосинтезу. Надлишок вуглеводів, що утворюється в процесі цих реакцій, може запасатися у вигляді зерен крохмалю. З мембран часто бувають зв’язані кулясті краплі ліпідів, у яких акумулюються ліпідні компоненти мембран. Кільцева ДНК і рибосоми дозволяють пластидам, так само як і мітохондріям, ділитися незалежно від поділів самої клітини. Іноді кількість хлоропластів може збільшуватися не шляхом поділу, а брунькуванням.
Хромосоми містять у стромі велику кількість каротиноїдів. Пігменти, що розташовані не на мембранах і знаходяться в атмосферному стані, часто представлені у вигляді кристалів. Присутністю каротиноїдів пояснюється забарвлення плодів томата, горобини, осіннього листя, коли хлорофіл у них руйнується і виявляється колір інших пігментів.
12. Мікросоми
Уперше були виявлені в 1880 р. Ганштейном. Мікросоми являють собою кулясті тіла діаметром від 0.2 до 1.5 мкм, обмежені елементарною мембраною. Первинні мікросоми утворюються за рахунок діяльності ендоплазматичної сітки. У клітинах рослин виявлені два типи мікросом, що виконують різні функції - пероксисоми і гліоксисоми.
Пероксисоми численні в клітинах листків, де вони тісно зв’язані з хлоропластами. У них відбувається окислювання синтезованої в процесі фотосинтезу гліколевої кислоти з утворенням амінокислоти гліцину, яка вже в мітохондріях перетворюється в серин. При роботі ферментних систем пероксисом утворюється пероксид водню, який руйнується в цих органоїдах ферментом каталазою, що міститься в органоїдах.
Гліоксисоми з’являються при проростанні насіння, у якому запас поживаних речовин представлений здебільшого жирами. Вони містять ряд ферментів, необхідних для перетворення жирів у цукри в процесі окислювання жирних кислот і реакцій гліоксилатного циклу.
13. Вакуолярна система
Важливу особливість рослинних клітин мають одна чи кілька порожнин, називають вакуолями, що відділені від навколишньої цитоплазми одинарною мембраною – тонопластом. Як правило, вакуолі займає більше 50% всього обсягу клітини. Спочатку вакуолі утворюються в молодих клітинах шляхом злиття пухирців, що відокремлюються від ендоплазматичної сітки й апарата Гольджі. Як у структурному, так і у функціональному відношеннях вони близькі до лізосом тваринних клітин. Разом з тим функції вакуоль у рослинних клітинах разюче різноманітні. Вакуолі служать для транспортування і нагромадженні поживних речовин, метаболітів і непотрібних продуктів обміну. Вакуоле може служити місцем відкладання запасних білків, цукрі. Вакуолярний сік має складний склад і включає як органічні речовини, так і мінеральні солі. Крім вуглеводів, органічних кислот, амінокислот і білків, що можуть бути удруге використані в обміні речовин, вакуолі містять феноли, таніни, алколодїи, що виводяться з обміну речовин і ізолюються від цитоплазми. Ці сполуки можуть надавати рослинній тканині неприємного смаку, що відштовхує травоїдних тварин. Іноді у вакуолях присутні пігменти, так звані антоціани. У цю групу входять антоціани, що мають червоне, синє чи пурпурне забарвлення, і деякі близькі до них сполуки, що мають жовтий чи кремовий колір. Саме ці пігменти визначають забарвлення квітів у рожевих фіалок, жоржин та ін..
Вакуолярний сік може містити ряд гідролітичних ферментів, і тоді при житті клітини вакуолі діють як лізосоми,здійснюючи автофагію – знищення непотрібних клітині структур з утворенням окремих автофагічних вакуоль.. Після загибелі клітин тонопласт як і всі мембрани утрачає свою вибірну проникність і вже не здатний виконувати бар’єрну роль.
Одна з головних функцій вакуолі – це участь в осмотичнихявищах. Вода звичайно надходить у концентрований клітинний сік шляхом осмосу через вибірково проникний тонопласт. У результаті в клітині розвивається тургорний тиск і цитоплазма притискається до клітинної стінки. Такий тиск – необхідна умова росту клітин розтяганням, причому обсяг клітин збільшується без збільшення обсягу самої цитоплазми.
14. Апарат Гольджі, будова і функції
Структуру, відому тепер як апарат Гольджі уперше знайшов у тваринних клітинах у 1898 р. італійський гістолог К. Гольджі. Однак у рослинних клітках існування подібних структур було достовірно встановлене в результаті робіт із застосуванням електронного мікроскопа Бюва і Портером лише в 1957 році. Апарат Гольджі. Являє собою купку сплощених мембранних мішечків, так званих цистерн, і зв’язану з ними систему пухирців, які називають пухирцями Гольджі, чи везикулами. Ряд окремих купок називають диктіосомами. (рис. 1.18).
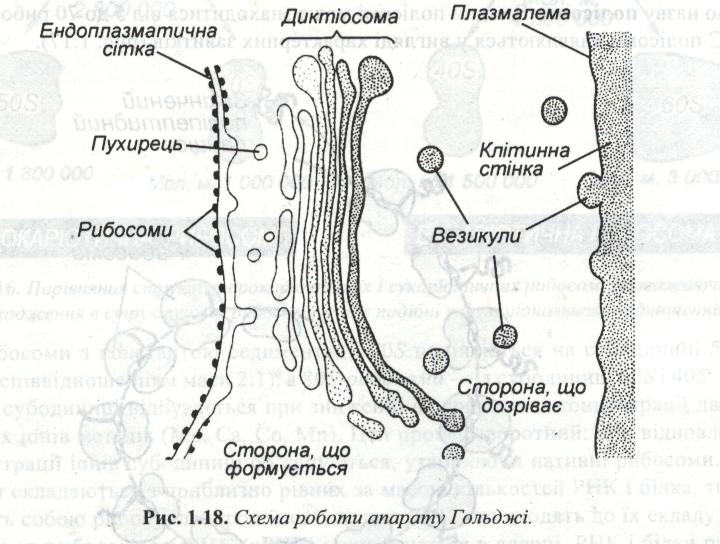
У зоні диктіосоми розрізняють дві ділянки. З однієї сторони шляхом злиття пухирців, що відбруньковуються від гладенької ЕПС, постійно утворюються нові цистерни. Ця сторона купки, що формується, опукла, тоді як інша, де завершується дозрівання і цистерна знову розпадаються на пухирці, має увігнуту форму. Локалізація, величина і розвиток елементів змінюється залежно від типу клітини і її фізіологічного стану. Так, АГ найбільш розвинутий в активно функціонуючих клітинах у процесі старіння він поступово атрофується, а потім зникає.
Функції, які виконує апарат Гольджі, чисельні та різноманітні. З його участю здійснюються секторні процеси, регулювання вмісту води в клітині, нагромадження вуглеводів, виділення слизів та ін.. У зоні апарата Гольджі можуть здійснюватися такі метаболічні процеси, як модифікація різних білків і ліпідів, фосфорилювання, ацилування амінокислот тощо. У рослинних клітинах вдалося простежити участь АГ в утворенні серединної пластинки і росту клітинних стінок. Установлено, що за допомогою везикул вуглеводні компоненти постачаються до плазми, при цьому транспорт у певному напрямку здійснюють мікротрубочки ;мембрана пухирців відбувається у плазмалему, сприяючи її росту і відновленню, а секретизовані рослини виявляються в клітинній стінці, де за допомогою ферментів синтезуються целюлозні мікрофібрини.
Таким чином, мембрання елементи апарата Гольджі є сполученою ланкою між мембранами ЕПС і плазмалемою.
15. Будова і функції клітинних стінок
Оболонку клітин, що поділяють і ростуть, називають первинною стінкою. Вона складається з целюлозних мікрофібрил, занурених у матрикс (рис. 1.22).
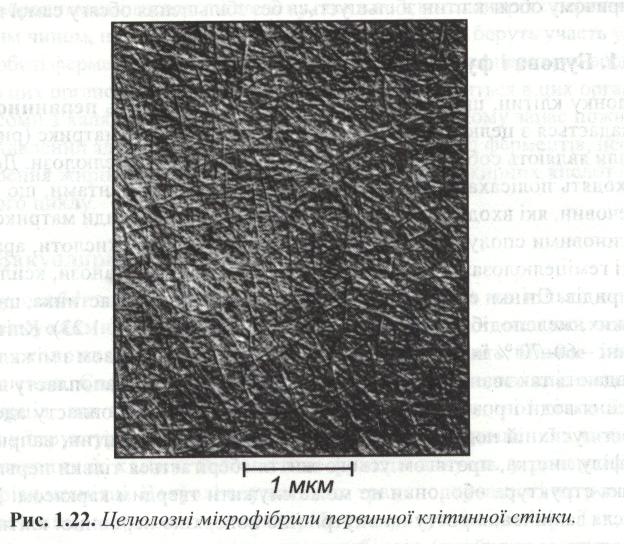
Мікрофібрили являють собою пучки довгих тонких молекул целюлози. До складу матрикса входять полісахариди і білки, багато з яких є ферментами, що каналізують синтез речовин, які входять до складу оболонки. Полісахариди матриксу представлені пектиновими сполуками і геміцелюлозами - змішаною групою полімерів занози, ксилоли й інших моносахаридів. Стінки сусідніх клітин з’єднує серединна пластинка, що складається з клейких желеподібних пектитів кальцію і магнію (рис. 1.23).
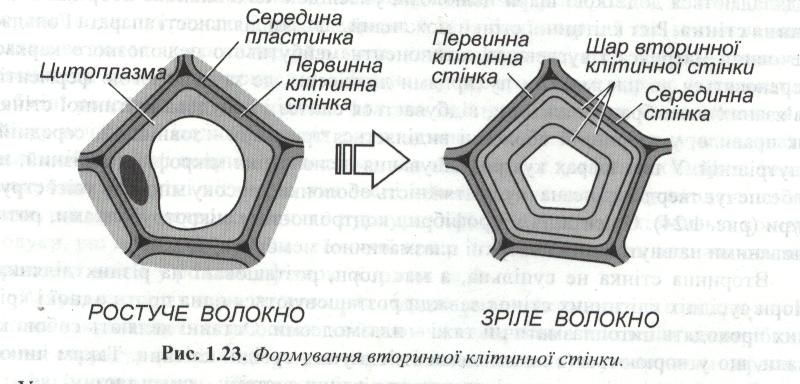
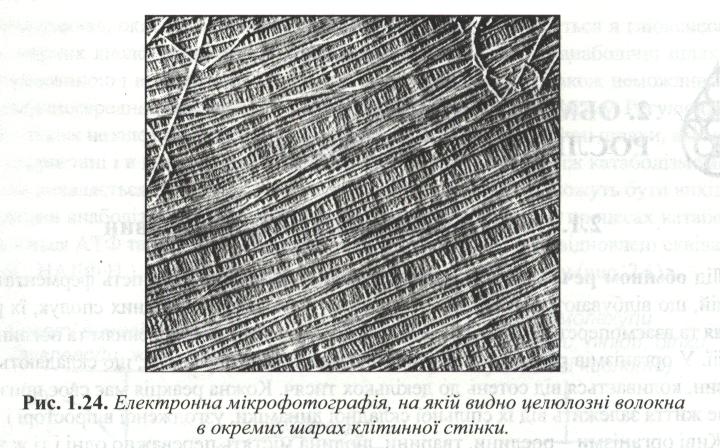
Клітинні стінки гідратовані – 60-70% їхньої маси звичайно складає вода. Разом з міжклітинниками вони складають так званий вільний простір - апопласт. По апопласту відбувається переміщення води і розчинених у ній речовин. Частка апопласту адсорбує різні іони, полегшує їхній подальший рух у клітину. У деяких клітин, наприклад, у клітин мезофілу листка, протягом усього життя зберігається тільки первинна стінка. У більшості клітин після закінчення росту на внутрішню поверхню первинної клітинної стінки відкладаються додаткові шари целюлози, унаслідок чого виникає вторинна клітинна стінка. Ріст клітинної стінки можливий завдяки апарата Гольджі. На вторинній оболонці виділяється три шари – зовнішній, середній і внутрішній. У цих шарах кут розташування целюлозних мікрофібрил різний, що забезпечує твердість, незначну розтяжність оболонки і високу міцність усієї структури. (рис. 1.24.) Орієнтація мікрофібрил контролюється мікротрубочками, розташованими на внутрішній поверхні плазматичної мембрани.
Вторинна стінка не суцільна, а має пори, розташовані на різних ділянках. Пори сусідніх клітинних стінок завжди розташовуються одна проти одної і крізь них проходять цитоплазматичні тяжі – плазмодесми. Останні являють собою канали, що утворюються з плазма леми і з’єднують сусідні клітини. Таким чином, протопласти окремих клітин з’єднуються в єдину систему - симпласт.
Вторинна стінка, що виникає в клітинах диференційованих тканин, поділяється значним структурним і хімічним змінам. Трахеальні елементи ксилеми і клітинами склеренхіми піддаються інтенсивній лігніфікації. Це відбувається при просочуванні шарів целюлози лігніном – складною полімерною речовиною, що відноситься до полі фенолів. Лігнін скріплює целюлозні волокна й утримує їх у єдиній структурі. Характер і ступінь одеревіння можуть бути різними. Лігніфікація характерна для механічних і провідних тканин.
У вторинних покривних тканинах відбувається опробування клітинних стінок. При цьому у вторинній клітинній стінці відкладається суберин – жироподібна речовина, до складу якої входять жирні кислоти і їх ефіри з гліцерином та іншими спиртами. Опробковані клітини широко відмирають і перетворюються у захисний шар. Суберин надає їм непроникності щодо води, газів, грибної та мікробної інфекції.
Зовнішні клітинні стінки епідермальних тканин деяких видів рослин можуть бути покриті кутикулою - тонкою плівкою, що складається з кутину (суміш високомолекулярних жирних кислот і їх ефірів). Часто кутикула покривається шаром воску, товщина якого у деяких рослин досягає 5 мм. Епідермальні тканини можуть піддаватися також ослизненню, тобто покриваються сумішшю високомолекулярних вуглеводів, білків, ферментів, і органічних кислот. Кутинізація й ослизнення захищають рослин від перегріву і надмірної втрати води.
Література
Грин Н., Стаут У.,Тейлор Д., Биология, Мир 1990.
Лебедев С.И. Физиология растений, Колос 1988.
Мусієнко М.М. Фізіологія рослин. Київ. Фітосоціоцентр, 2001.
Макрушин М.М., Макрушина Є.М., Петерсон Н.В., Мельников М.М. Фізіологія рослин. / За редакцією професора М.М.Макрушина Віниця: Нова Книга, 2006.
Полевой В.В. Физиология растений. Выссшая школа, 1989.