Поведение животных при внутривидовых взаимоотношениях
На всех трех стадиях родители охраняют и защищают птенцов самыми разными способами. Птицы ряда видов защищают потомство, самоотверженно и яростно нападая на приближающихся к гнезду врагов. Это характерно для многих хищных птиц, пускающих в ход когти и клювы. Чайки, крачки, а также дрозды-рябинники нападают на хищных птиц и зверей целой стаей и ударами с налета обычно обращают их в бегство. При нападении на приближающегося к гнезду человека они налетают на него и довольно точно попадают своими фекалиями. Чибисы около гнезд налетают на собак, лисиц и хищных птиц. Активно защищают своих птенцов (в гнездах) дрозды - белобровики в отличие от певчих и черных дроздов. Такая форма защиты потомства, характерна и для ряда рыб. Другая форма защиты заключается в затаивании самки на гнезде или около выводка и внезапном вылете на очень близком расстоянии от хищника (или человека). Часто при этом наблюдается так называемая «отвлекающая демонстрация. Она заключается в том, что птица так или иначе имитирует доступный для хищника пищевой объект, отвлекая его от гнезда или от выводка. Различают в этих отвлекающих демонстрациях несколько форм: 1) имитация убегающего зверька, когда птица бежит по земле с взъерошенными перьями спины, втянутой шеей и опущенным к земле хвостом; 2) имитация птенца с трепещущими крыльями и громким тонким ювенильным писком; 3) имитация раненой птицы с подлетами и падением на землю. Все эти формы известны и у других видов птиц, гнездящихся на земле или низко над землей. Так, например, хорошо известны отвлекающие демонстрации «раненой» птицы у самки рябчика около выводка. Элементы отвлекающего полета можно видеть у некоторых пеночек и славок.
В какой-то степени сходно с птицами проходит цикл репродуктивного поведения и у млекопитающих. У зрелорождающихся (например, копытные) родители не делают обычно гнезда или логова и детеныши уже через несколько часов после появления на свет могут следовать за матерью. У незрелорождающихся, как правило, имеет место устройство гнезда или логова с последующим выкармливанием детенышей сначала молоком, а затем обработанной пищей. Например, волк самец приносит выводку пищу (мясо), наполовину переваренную, которую он отрыгивает при соответствующих сигналах со стороны своего потомства.
У большинства млекопитающих родители (чаще всего самки) очень заботятся о своих детенышах, ухаживают за ними и самоотверженно защищают их. Таким образом, именно у млекопитающих особенно развит материнский инстинкт.
Потревоженные человеком и при других отрицательных моментах родители многих млекопитающих переносят свое потомство на новое место. Этот акт резко отличает млекопитающих от большинства птиц, у которых перетаскивание птенцов при опасности наблюдалось только у самки вальдшнепа.
Групповое поведение.
Часто можно наблюдать животных, относящихся к самым различным таксонам, которые образуют одновидовые концентрации особей и тем самым так или иначе вступают во взаимоотношения друг с другом и на короткий срок или длительно ведут групповой образ жизни.
Скопления.
Простейшее образование таких групп — называемых скоплениями, происходит не вследствие привлечения одних особей другими, а в результате привлечения в одно и то же место каждой особи независимо от других. Привлекающие факторы могут быть при этом самые разные: в одних случаях — большое количество пищи (мухи и другие насекомые у разлагающихся органических остатков, скопления травоядных животных на пастбищах, скопления у водопоев и т. п.), в других — тепловые и световые пятна (многие насекомые), многие запахи. В качестве примера приведем наблюдаемое нами скопление бабочек — тополевых ленточников (Limenitus populi) , которых привлек в одно место запах лисьего фекалия (наблюдение 17 топя 1972 г.)
Можно привести
также пример
образования
скопления
водомерок
(Hydrometra Sp.),
которые собрались
в одно место
(затишное от
ветра) вблизи
выступа берега
на одном из
озер Киевской
области. Как
видно на рисунке,
водомерки то
держатся, не
мешая друг
другу, довольно
стройными
рядами, то, будучи
напуганными,
собираются
в беспорядочное
скопление. По
окончании
ветра они
рассеиваются
вдоль береговой
липни.

Скопление водомерок, напуганное экспериментатором
Большие скопления образуются при миграциях животных — на местах отдыха, ночевки или у преград, возникающих на путях миграций (например, у мест переправ млекопитающих через реки).
Иначе обстоит дело в тех группах животных, которые создаются на более длительный срок в результате взаимного привлечения особей. Для них характерно, как правило, социальное, взаимообусловленное поведение, базирующееся на контактах и сложных комплексах сигналов.
Множество исследователей делят группы и групповое поведение животных на семейные и несемейные. Хотя семейные группы представляют собой лишь частный случай группового поведения, семейное групповое поведение имеет очень большое значение в жизни высших позвоночных животных.
Семейные группы.
Образование семейных групп рассматривается как следствие описанного выше репродуктивного поведения у большинства птиц и млекопитающих, а также у некоторых видов рыб и членистоногих. Эти группы состоят из родителей (или одного из них) и их потомства одной или даже нескольких генераций. Обычно родители доминируют в этих группах, кормят и защищают потомство и способствуют выработке у него необходимых для самостоятельной жизни реакций и навыков, что имеет очень большое значение в их экологии. Длительность существования семейных групп у животных разных классов и разных видов весьма различна: от нескольких декад до нескольких лет. Особенно длителен этот период у некоторых млекопитающих. Семейные группы и семейное поведение имеют место обычно до тех пор, пока молодые животные подрастут и приобретут основные черты поведения взрослых животных. Тогда происходит распад семейных групп, и животные переходят либо к одиночной жизни, либо к образованию несемейных групп (стад, стай).
Несемейное групповое поведение
Групповое поведение животных, относящихся к одному виду, представляет собой чрезвычайно интересное явление, поскольку оно, включает так или иначе проявляющуюся согласованность действий животных, входящих в данную группу. Эта согласованность обычно происходит на основе различной сигнализации и инстинкта подражания, которые позволяют группе действовать как единому целому. Д. В. Радаков отметил, что «групповая жизнь животных — это пример специфических закономерностей жизни, свойственных ее надорганизменному уровню и как таковая она представляет собой биологическую проблему большого теоретического значения». Действительно, групповое поведение и жизнь в группах (стаях, стадах, колониях), которое можно наблюдать у животных самых различных классов, следует рассматривать как адаптацию данной популяции, проявляющуюся на надорганизменном уровне. Именно так и рассматривается груповое (стайное) поведение животных: это поведение создает определенные преимущества всей группы в целом, давая ей возможность коллективно влиять на окружающую среду в сторону ее оптимизации. Поэтому групповой образ жизни возникает конвергентно у животных различных таксонов, и эти животные отличаются обычно высокой численностью и большой экологической устойчивостью.
Можно вслед за другими исследователями установить два основных типа несемейных группировок животных, которые различаются по особенностям взаимоотношении и поведения животных, составляющих группу:
1) с доминированием одних особей над другими (такие группы называются иерархическими);
2) стаи без доминирования. В первых взаимоотношения в группе и единство группы основаны на системе «господства» и «подчинения», что рассматривают как проявление разносторонности особей в области их поведения. Это значительно способствует существованию популяции вида в целом. Степень доминирования в стаях различных животных очень варьирует. Доминирующие особи часто сменяются. В одних случаях лидером является самец, в других — самка. Об иерархических группах и доминировании у животных существует большая литература, поскольку на это явление было обращено много внимания исследователей.
Стайное поведение.
 В
группах второго
типа иерархия
и доминирование
обычно отсутствуют.
Животные держатся
вместе в силу
инстинкта
стайности. Если
иерархические
группы можно
наблюдать почти
у всех классов
позвоночных,
то стаи без
доминирования
в основном
имеют место
и особенно
распространены
в классе рыб.
В какой-то степени
их можно предполагать
в стаях воробьиных
птиц. Однако
наиболее пристально
они изучались
именно в классе
рыб. Дело в том,
что стайные
рыбы представляют
особую ценность
в хозяйственном
отношении.
Кроме того,
изучать стайное
поведение,
механизмы
этого поведения
наиболее удобно
на стаях рыб,
помещенных
в аквариумы
и бассейны, да
и просто в водоемах
с применением
современной
техники (акустическая
локация, авианаблюдения,
подводные
наблюдения
и киносъемка).
Интенсивные
исследования
стайного поведения
рыб проводил
в лаборатории
Д. В. Радаков,
который на
основе своих
работ написал
интересную
монографию
«Стайность
рыб как экологическое
явление» [1972]. В
этой книге он
дает свое определение
стаи рыб как
«временной
группы особей
обычно одного
вида, которые
находятся (все
или большей
частью) в одной
фазе жизненного
цикла, активно
поддерживают
взаимный контакт
и проявляют
или могут проявлять
в любой момент
организованность
действий,
биологически
полезную, как
правило, для
всех особей
данной группы.
Внешний облик
стаи может
часто и сильно
изменяться
в зависимости
от состояния
рыб и условий,
в которых они
находятся».
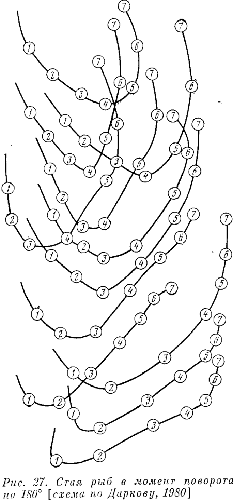
Основные типы структуры стаи пелагических рыб доказаны на схеме. Большое внимание Радаков уделил механизмам согласованности (или организованности) действий рыб в стае, что представляет интерес особенно в связи с отсутствием постоянных вожаков в стае рыб. В этом отношении стаю рыб, говоря языком кибернетики, следует рассматривать, как пример самоуправляемой системы без центрального управления. Опыты Радакова над некоторыми видами стайных рыб подтвердили вывод о том, что в стаях большинства рыб постоянные вожаки отсутствуют. При этом рыбы, идущие в головной части стаи, постоянно заменяются новыми из основной массы данной стаи. Расшифровка кадров киносъемки движущихся стай в экспериментальных бассейнах показала, как рыбы, движущиеся в головной части, даже при прямолинейном движении, постепенно отстают и оказываются в середине стаи, а при повороте на 180 градусов передние начинают поворот, но в поворот включаются все особи и в результате идущие в задней части оказываются впереди (см. рис.). Эти эксперименты также показали, что роль «вожака» на каждый данный момент выполняет достаточно большая по численности часть стаи. Так, для молоди сельди и карповых рыб было доказано, что изменение поведения и движения всей стаи определялось соответствующим изменением части стаи в том случае, если эта часть по своей численности составляла не менее 30— 40% от общего количества особей стаи. Сигнализация в данном случае заключается в передаче особенностей поведения и скорости движения определенной части стаи, выполняющей в этот момент функцию инициатора поведенческой реакции, остальным членам стаи.
Кроме того, экспериментируя в бассейнах Института океанологии Академии наук Республики Куба со стаями атериноморуса (Atherinomorus stipes Muller a. Troshel), Д. В. Радаков установил при помощи киносъемки, что в случае локального испуга у рыб, составляющих незначительную часть стаи, по всей стае пробегает «волна возбуждения». Это быстро перемещающаяся по стае сигнальная зона, в которой рыбы мгновенно реагируют на действия соседей измененном позы тела. Сами рыбы при этом почти не двигаются, но подгибают хвост, как бы готовясь к броску, а передвижение «волны возбуждения» достигает скорости 11,8— 15,1 м/сек, т. е. она в 10—15 раз превышает максимальную (бросковую) скорость плавания атериноморусов (рис. 28). Таким образом, сигнал испуга обычно передается по стае атериноморуса быстрее, чем за секунду. Далее этот сигнал может или затухнуть или вызовет «поток движения» всей стаи или ее части. «Поток движения» наблюдался в стаях почти всех исследованных видов рыб. В свою очередь, возникнув у части стаи, он может затухнуть или превратиться в «лавинообразный поток» всей стаи, что зависит от реактивности рыб, количества их в «потоке», скорости его движения и расстояния между «потоком» и остальными рыбами стаи. В большой степени общая реакция стаи зависит и от силы и направления пугающего раздражителя.
Защитное значение стаи.
Для животных, находящихся в естественных условиях, там, где они, как правило, окружены врагами, скопление в многочисленные группы, казалось бы, должно было увеличить их способность к обороне, если сами эти группы не имеют оборонительных способностей. Но поскольку в группах (стаях, стадах, колониях) держатся (по временам или постоянно) животные, относящиеся к весьма различным таксонам, невольно приходит мысль о том, что именно такие группы представляют собой конвергентные оборонительные адаптации, служащие для сохранения численности популяции вида.
И, действительно, исследования выявляют все больший «арсенал» оборонительных возможностей организованной группы животных. Прежде всего, группа животных, которая ведет «тактику кругового обзора», замечает своего врага на значительно большем расстоянии, чем одна особь. Поэтому хищнику намного труднее приблизиться к группе животных на расстояние броска. Одиночные гольяны легче становились добычей щуки. В стаях большинства позвоночных животные могут более спокойно отдыхать или питаться, поскольку часть из них (случайно или даже специально) выполняет роль «часовых» и при появлении опасности движениями или звуками настораживает всю группу. Затем следуют различные оборонительные действия всей группы.
Животные ряда видов, объединившись в группы, активно обороняются от врагов и даже нападают на них. Такое поведение известно для копытных животных (быков, вилорогов и овцебыков). Эти животные при нападении волков и некоторых других хищников часто образуют каре, и, спрятав телят в середину, становятся рогами наружу, организуя круговую защиту. Морские чайки, так же как и вороны, объединившись в гнездовые колонии, часто нападают на хищников и прогоняют их. Следует вспомнить, что активные способы групповой защиты существуют и в ветви первичноротых, где ряд видов общественных перепончатокрылых активно защищают свои гнезда и колонии коллективно, нападая на врагов и пуская в ход свое «оружие».
Такая активная защита — нападение характерна для тех животных, ведущих групповой образ жизни, которые по тем или иным причинам не могут спасаться от врагов бегством, будучи приуроченными к постоянным местам (гнезда с потомством, колонии перепончатокрылых, слабый молодняк) и в то же время имеют различные возможности нападения.
Многие стайные животные спасаются от хищников, убегая, улетая или уплывая от них тесной группой. Казалось бы, увеличенное количество особей в стае увеличивает возможность их поимки хищником, но данные научных исследований показывают обратное: в ряде случаев рыбы, птицы и млекопитающие, так же как и некоторые другие животные, держась в стаях, оказываются менее доступными или даже совсем недоступными для хищников. Даже рыбы, питаясь беспозвоночными (например, дафниями) , находящимися в плотных скоплениях, поедают их менее интенсивно, чем при более разреженных концентрациях. Такое явление называют «эффектом смущения» хищника многочисленностью жертв. В погоне за стаей рыб дневной хищник как бы «дезориентируется» большим количеством мелькающих рыбешек, его погоня становится менее целеустремленной, броски следуют один за другим и их подавляющее большинство оканчивается промахами. В то же время погоня за одной рыбкой проходит очень направленно и завершается одним удачным броском». Это дало основание назвать описываемое явление «дезориентацией хищника» вследствие многочисленности жертв.
Дезориентация хищника еще более увеличивается в результате особых защитных «маневров» стаи. Эти маневры неоднократно наблюдал и фиксировал Д. В. Радаков киносъемкой для целого ряда морских и пресноводных рыб, как в отношении живых хищников, так и их моделей. «Маневрирование» заключается в том, что при броске хищника на стаю, находящуюся в состоянии кругового обзора, рыбы ближайшей части стаи рассыпаются от хищника веером вперед и в стороны, создавая перед мордой хищника постоянную «пустоту», и, немного проплывая, тут же заворачивают к хвосту хищника против направления его броска. При этом часто стая, разделившись на две части, снова соединяется и следит за удаляющимся хищником. Этот маневр, если его нанести на бумагу, похож на букву Ф, причем путь хищника составляет вертикальную часть этой буквы (см. рис.А). За это сходство называют такой маневр стаи условно «Ф-маневром». Такое маневрирование было зафиксировано для целого ряда рыб в экспериментах в больших бассейнах. Они были отмечены при погоне кефали и морского налима за стаями атерины (Atherina mochon pontica Euch.), саргана (Belone belone (L.)) за стаями хамсы (Engraulis encrasicholus (L.)), ставриды (Trachurus mediterraneus ponticus Aleev), за стаями мальков кефали, щуки, за стаями верховок и в ряде других случаев.
для стаи песчанки (Ammodytidae), преследуемой пловцом. В момент внезапного испуга (например, бросок хищника) стая мелких рыб часто рассыпается веером, что также дезориентирует хищника. Рассеявшаяся таким образом стая обычно снова быстро восстанавливается. Следует заметить, что картина реагирования стаи пелагических рыб на хищника и специфика ее маневрирования в значительной степени зависят также от соотношения направлении движения стаи и движения хищника.
Указанные особенности стайного поведения рыб в условиях дневной освещенности значительно затрудняют охоту хищников за рыбами, находящимися в стае. Эксперименты, проведенные Д. В. Радаковым и его сотрудниками, показали примерно одно и то же: рыбы в стаях при нападении хищников оказывались для них значительно менее доступными, чем одиночные особи, и истреблялись в 5—6 раз медленнее. Это было доказано как на морских, так и на пресноводных рыбах. Как пишет Радаков, «хищник, нападая на стаю, не преследует какой-нибудь одной рыбки до тех пор, пока не поймает ее. Погнавшись сначала за одной и упустив се, он устремляется за другой, за третьей, пока, наконец, ему удается схватить одну из жертв. В результате, на ее поимку уходит больше времени, чем, если в аквариуме находится одиночная рыбка, погоня за которой получается более целеустремленной».
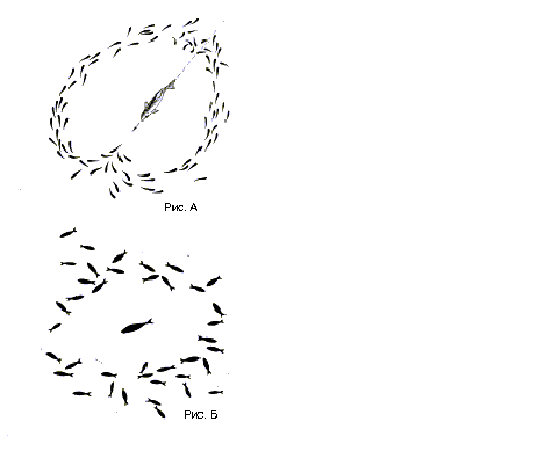 Обычно
голодные хищники,
помещенные
при достаточной
освещенности
вместе со стайкой
рыб-жертв, в
первые минуты
начинали энергичную
погоню и за это
время иногда
успевали схватить
несколько
рыбок. За эти
первые минуты
в результате
пугающего
воздействия
хищника стая
уплотнялась,
принимая
«оборонительную»
структуру (см.
рис. Б). Это в еще
большей степени
снижало эффективность
охоты, соответственно
его пищевая
активность
уменьшалась,
а в ряде случаев
прекращалась
совсем. Можно
считать, что
прекращение
охоты связано
с том, что энергия,
затрачиваемая
хищником на
погоню, оказывается
значительно
большей, чем
энергия, получаемая
от пищи. Таким
образом, охота
становится
энергетически
невыгодной.
При изучении оборонительного значения стайного поведения рыб особый интерес представляет их химическая защитная сигнализация. Впервые эту сигнализацию обнаружил Фриш [Frisch, 1938], установивший, что при ранении одного гольяна вся стайка становилась испуганной, разбегалась или уходила в сторону. Фриш показал, что такое же действие оказывает на стаю экстракт из кожи только что убитого гольяна. Эти исследования, продолженные Фришем и другими исследователями, показали, что в коже целого ряда видов рыб находятся специальные колбовидные клетки, не имеющие связи с поверхностью и содержащие вещества, которые при ранении кожи выходят в воду и немедленно вызывают у рыб данного вида сильнейшую реакцию испуга. Это вещество названо «веществом испуга», и установлено, что оно воспринимается при помощи обоняния даже в очень небольших концентрациях. Фриш в опытах с гольянами подсчитал, что пороговая концентрация этого вещества в воде равнялась примерно 1,4 •1010 г/л. «Вещество испуга» (иногда его называют «феромоном тревоги») и соответствующие реакции были обнаружены у подавляющего большинства рыб отряда карпообразных (Cyprinifornies) и у некоторых видов из других отрядов. Это действие у рыб разных экологических групп проходило по-разному: рыбы, обитающие в зарослях и у других укрытий, состаивались и четко ориентировались на источник запаха, а затем затаивались или уходили в укрытия; придонные рыбы после кратковременного состаивания и броска от источника запаха затаивались у дна на длительное время; рыбы, обитающие в толще воды и у поверхности, реагировали уходом или бросками, а затем снижали активность с образованием плотной защитной стайки. Таким образом, можно сделать вывод, что при воздействии «вещества испуга» образуются определенные экологические стереотипы оборонительного поведения рыб.
Весьма близко к указанной сигнализации стоит явление «запаха страха», установленное для грызунов. Запах, оставленный раненой живой домовой мышью, отпугивает от данного места се сородичей. Было отмечено, что поскольку пятна крови и остатки шерсти мышью не оказывают такого отпугивающего действия на других мышей, то можно думать, что «запах страха» выделяется соответствующими железами испуганного зверька. Наличие таких сигналов, приносящих пользу всей стае, или популяции, еще раз подчеркивает правоту вывода Радакова о том, что групповая жизнь животных, и в частности стайное поведение,— это явление, характерное для надорганизменного уровня, это — групповая защитная адаптация, которая могла создаться в результате группового, а не индивидуального отбора.
Защитное значение стаи известно и для ряда птиц. Ориентолог В. Э. Якоби [1967] пишет, что плотные и быстроманеврирующие стаи скворцов, а также некоторых болотных птиц мешают хищникам, и в частности соколу-сапсану, прицельно и успешно атаковать и схватить определенную птицу. Поэтому хищные птицы при нападении на стаю, прежде всего, стараются отбить от стаи одну особь, а потом уже хватают ее. Часто же при нападении ястреба на стаю мелких птиц он не может схватить ни одной из них.
Для некоторых копытных животных стайное скопление имеет определенное защитное значение также по отношению к кровососущим насекомым. Летом при обилии гнуса (оводов, комаров, кровососущих мух) северные олени собираются в плотное стадо. Кровососы обычно облепляют оленей, находящихся в наружных рядах, и почти не проникают в глубь стада. Поэтому животные в центре стада спокойно стоят или лежат, а внешние ряды оленей ведут себя беспокойно и постепенно передвигаются вокруг центра стада. Чем активнее ведут себя кровососы, тем больше внешних рядов стада оленей находятся в движении, но их число обычно не превышает пяти. Время от времени крайние олени, измученные гнусом, силой прорываются в центр, расталкивая соседей. Учитывая количество оленей в стаде и количество оленей во внешних (беспокойных) рядах, подсчитано, что при 500 оленях в стаде, защищено от кровососов 56% стада, при 2000—77%, а при 4000-83%.
 Говоря
о защитном
значении группового
поведения,
следует отметить
и защиту животных
от неблагоприятных
абиотических
факторов среды.
В целом ряде
работ можно
найти данные
о том, что животные,
собравшись
в группу, тем
самым как бы
влияют здесь
на микроклимат
и потому легче
переносят
ветры, метели,
чрезмерную
низкую или
высокую температуру.
Взаимное обогревание
и коллективную
регуляцию
температуры
в группах животных
самых разных
таксонов отмечали
большое количество
исследователей.
Оно известно
и в колониях
общественных
насекомых
(пчелы, муравьи),
и при ночевках
некоторых птиц
и для ряда стадных
млекопитающих.
Неоднократно
описаны скопления
пингвинов
во время морозных
ураганов. Эти
антарктические
птицы образуют
плотные тысячные
стаи, в которых
птицы со стороны
постепенно
передвигаются
на подветренную.
При этом огромная
их масса постоянно
«ползет», подгоняемая
ветром. Такое
движущееся
скопление
пингвинов
иногда называют
«черепахой».
Сходно ведут
себя во время
снежных буранов
стада овец,
лошадей, антилоп
и северных
оленей. В степях
и пустынях в
летние жаркие
дни овцы также
образуют скопления,
пряча свои
головы в тени,
отбрасываемой
сочленами
стада. Наконец,
многие рыбы,
змеи и некоторые
млекопитающие,
впадая в зимнюю
спячку, также
образуют большие
зимовочные
скопления,
в которых значительно
снижается
уровень обмена
веществ.
Значение стаи при питании.
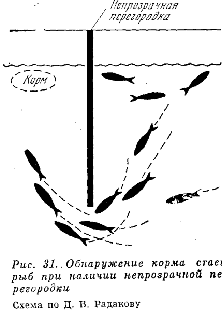
Значение стаи (пли вообще группирования) животных при питании также довольно разнообразно. Прежде всего, в группах животные легче находят скопления пищи. Как показали опыты, проведенные с молодью сайды, та часть рыб из стаи, которая обнаружила корм и бросалась к нему, увлекала за собой других рыб стаи, которые не могли видеть корма (он был от этих рыб скрыт непрозрачной перегородкой), а те в свою очередь увлекали еще более отдаленных сочленов стаи (См. рис3.1) . Таким образом, стадность облегчала рыбе поиск пищи, и в считанные секунды вся стая собиралась на скоплении кормовых организмов, обнаруженных лишь частью ее сочленов.
Велико значение стаи и при поимке добычи у тех хищников, которые применяют тактику «коллективной охоты». Выше было показано, что рыбы, держащиеся оборонительными стаями, становятся почти недоступными для одиночных хищников. Однако в качестве коадаптации у некоторых хищников выработался стайный способ охоты за стайными жертвами. Крупные окуни стаей окружают стайку молоди карповых рыб, отгоняют ее от укрытий и поедают Примерно также описано подобное явление для хищных рыб тропических морей. Д. В. Радаков приводит два своих наблюдения: днем у Западной Африки на поверхности воды, было замечено несколько стай анчоусов, преследуемых снизу тупцами и акулами, а сверху серыми буревестниками. Над стаями стояла пена и брызги. Стаи имели около 5 м в диаметре. Вскоре стаи были уничтожены, и на их месте можно было видеть лишь медленно погружающуюся чешую. Второе наблюдение было произведено в Черном море около Карадагской биологической станции, где Д. В. Радакову удалось приблизиться в подводной маске к стае ставрид, напавших на стаю песчанки. Песчанка держалась в очень плотной стае около полуметра в поперечнике и преследуемая снизу ставридами, была «буквально прижата к поверхности поды». Численность этой стайки быстро уменьшалась. Исходя из этих наблюдений, Д. В. Радаков заключает, что стая хищных рыб прижимает стаю своей добычи к поверхности воды снизу, в результате чего рыбы этой стаи не могут ни спастись бегством в стороны, ни скрыться в глубину. Далее этот автор делает общий вывод, что стайное поведение хищных рыб представляет собой адаптацию, способствующую поимке добычи, поскольку стая хищников может:
1) легче обнаружить стаю жертв и приблизиться к ней;
2) окружить добычу, препятствуя ее бегству;
3) оттеснить добычу от обычных укрытий и, в частности, «прижать» ее снизу к поверхности воды;
4) дезориентировать стаю жертв и внести в ее поведение элементы паники. Таким образом, стайное, организованное поведение рыб хищников оказывается полезным для всей группы в отношении питания. Это верно именно для стай, отличающихся взаимообусловленным, согласованным поведением, тогда как для простого скопления индивидуумов без согласованного поведения вполне подходит заключение «чем больше ртов, тем меньше на долю каждого».
Широко известна «коллективная» стайная охота хищников из семейства собачьих,