Определение таксономического состава и вертикального распределения организмов дрифта беспозвоночных
При дальнейшей обработке подсчитанного материала была рассчитана интенсивность дрифта.
Интенсивность дрифта – это количество организмов, снесенных через единицу площади живого сечения потока за единицу времени (экз/м2 в час).
Расчет интенсивности дрифта производился по формуле:
Nd=n/(s*t),
где Nd – интенсивность дрифта
n – численность (экз.) организмов в пробе
s – площадь рамки (м2)
t – время экспозиции (час).
Всего проведено 8 суточных учетов дрифта и обработано 192 количественные пробы.
Пользуясь случаем выражаю благодарность своему научному руководителю Н.Н. Панькову, А.С. Козлову за консультации по определению организмов дрифта.
4. Результаты исследований и их обсуждение
4.1 Таксономическая структура дрифта
В результате наших исследований в составе водной фракции дрифта р. Сылвы зарегистрированы 23 таксономические группы животных, в составе воздушной фракции дрифта – 13 таксономических групп животных.
Разнообразнее всего в составе водной фракции дрифта представлены амфибиотические насекомые: Ephemeroptera (16 видов), Trichoptera (12 видов), Diptera (5 семейств) (табл. 1).
В пробах встречаются кишечнополостные Coelenterata (Hydra sp.), малощетинковые черви Oligochaeta, Turbellaria, пиявки Hirudinea (Erpobdella octoculata Linne, 1758, Hellobdella stagnalis Linne, 1758, Piscicola geometra (Linne, 1761)), моллюски (9 видов), ракообразные Corophium curvispinum Sars, 1895, Ostracoda, водные клещи Hydracarina, клопы Micronecta sp. и Aphelocheirus aestivalis (Fabricius, 1794), личинки и имаго жуков Elmidae, Dytiscidae, личинки веснянок Perlodidae (табл. 1).
В составе водной фракции дрифта наиболее богаты видами поденки Ephemeroptera: Cloeon luteolum (Muller, 1776), Baetis fuscatus (Linnaeus, 1761), B. inexpectatus (Tshernova, 1982), B. muticus (Linnaeus, 1758), B. niger (Linnaeus, 1761), B. scambus (Eaton, 1870), B. vernus (Curtis, 1830), Heptagenia fuscogrisea (Retzius, 1783), Heptagenia sulphurea (Muller, 1776), Ecdyonurus aurantiacus (Burmeister, 1839), Ephemera lineata (Eaton, 1870), Potamanthus luteus (Linnaeus, 1767), Caenis horaria (Linnaeus, 1758), Caenis macrura (Stephens, 1835), Habrophlebia lauta (McLachlan, 1884), Ephemerella ignita (Poda, 1761) (табл. 1).
Среди ручейников встречаются следующие формы: Cheumatopsyche lepida (Pictet, 1834), Hydropsyche contubernalis (McLachlan, 1865), Hydropsyche pellucidula (Curtis, 1834), Agraylea sp., Hydroptila sp., Ithytrichia lamellaris (Eaton, 1873), Orthotrichia costalis (Curtis, 1834), Ttricholeiochiton fagesii (Guinard, 1879), Triaenodes bicolor (Curtis, 1834), Brachycentrus subnubilus (Curtis, 1834), Psychomyia pusilla (Fabricius, 1781), Polycentropus flavomaculatus (Pictet, 1834) (табл. 1).
Таблица 1. Таксономический состав и встречаемость организмов дрифта
|
ВОДНАЯ ФРАКЦИЯ |
|
|
Таксон |
V* |
| Hydra sp. |
+++ |
| Oligochaeta |
+++ |
| Turbellaria |
+ |
| Erpobdella octoculata Linne, 1758 |
+ |
| Hellobdella stagnalis Linne, 1758 |
+ |
| Piscicola geometra (Linne, 1761) |
++ |
| сем. Spheariidae indet. |
++ |
| Sphaerium corneum (Linnaeus, 1758) |
+ |
| сем. Euglesidae indet. |
+ |
| сем. Valvatidae indet. |
+ |
| Valvata sp. |
+ |
| Bithynia tentaculata (Linnaeus, 1758) |
++ |
| Opisthorchophorus hispanicus (Servain, 1880) |
+ |
| сем. Lymnaeidae indet. |
+ |
| Lymnaea sp. |
+ |
| сем. Planorbidae indet. |
++ |
| Ancylus fluviatilis Mueller, 1774 |
+ |
| Armiger crista (Linnaeus, 1758) |
+ |
| Bradybaena sp. |
+ |
| Acrolocsus sp. |
+ |
| Corophium curvispinum Sars, 1895 |
+++ |
| Ostracoda sp. |
++ |
| Hydracarina |
+++ |
| Micronecta sp. |
+++ |
| Aphelocheirus aestivalis (Fabricius, 1794) |
++ |
| сем. Dixidae indet. |
+ |
| сем. Elmidae indet. |
++ |
| Riolus sp. |
+ |
| сем. Dytiscidae indet. |
+ |
| отр. Trichoptera indet. |
++ |
| сем. Hydropsychidae indet. |
++ |
| Cheumatopsyche lepida (Pictet, 1834) |
+ |
| Hydropsyche contubernalis McLachlan, 1865 |
++ |
| Hydropsyche pellucidula (Curtis, 1834) |
+ |
| Сем. Hydroptilidae indet. |
+++ |
| Agraylea sp. |
+ |
| Hydroptila sp. |
++ |
| Ithytrichia lamellaris Eaton, 1873 |
++ |
| Orthotrichia costalis (Curtis, 1834) |
+ |
| Продолжение табл. 1 | |
|
Таксон |
V* |
| Tricholeiochiton fagesii (Guinard, 1879) |
++ |
| Сем. Leptoceridae indet. |
+++ |
| Triaenodes bicolor (Curtis, 1834) |
+ |
| Brachycentrus subnubilus (Curtis, 1834) | + |
| Psychomyia pusilla (Fabrricius, 1781) | + |
| Polycentropus flavomaculatus Pictet, 1834 | + |
| отр. Ephemeroptera indet. | + |
| сем. Baetidae indet. | +++ |
| Cloeon luteolum (Muller, 1776) | +++ |
| Baetis fuscatus (Linnaeus, 1761) | + |
| B. inexpectatus (Tshernova, 1982) | + |
| B. muticus (Linnaeus, 1758) | ++ |
| B. niger (Linnaeus, 1761) | + |
| B. scambus Eaton, 1870 | +++ |
| B. vernus Curtis, 1830 | + |
| Heptagenia fuscogrisea (Retzius, 1783) | + |
| Heptagenia sulphurea (Muller, 1776) | + |
| Ecdyonurus aurantiacus Burmeister, 1839 | + |
| Ephemera lineata Eaton, 1870 | + |
| Potamanthus luteus (Linnaeus, 1767) | + |
| Caenis horaria (Linnaeus, 1758) | + |
| Caenis macrura Stephens, 1835 | ++ |
| Habrophlebia lauta McLachlan, 1884 | + |
| Ephemerella ignita (Poda, 1761) | + |
| сем. Perlodidae indet. | + |
| отр. Diptera indet. | ++ |
| Atherix ibis (Fabricius, 1798), личинки | + |
| сем. Сhironomidae indet. | +++ |
| сем. Simuliidae indet. | +++ |
| сем. Culicidae indet. | + |
| сем. Limoniidae indet. | + |
| сем. Ceratopogonidae indet. | ++ |
|
ВОЗДУШНАЯ ФРАКЦИЯ |
|
| отр. Araneae indet. | + |
| сем. Trombidiidae indet. | + |
| сем. Leniphiidae indet. | + |
| сем. Clubionidae indet. | + |
| Hyracantium sp. | + |
| класс Insecta indet. | + |
| отр. Trichoptera indet. | ++ |
| Hydropsyche sp. | + |
| Cheumatopsyche lepida (Pictet, 1834) | + |
| сем. Hydroptilidae indet. | ++ |
| Hydroptila sp. | + |
| Ithytrichia lamellaris (Eaton, 1873) | + |
| сем. Leptoceridae indet. | + |
| Окончание табл. 1 | |
|
Таксон |
V* |
| Psychomyia pusilla (Fabricius, 1781) | + |
| отр. Ephemeroptera indet. | + |
| Сем. Baetidae indet. | +++ |
| Baetis sp. | ++ |
| B. vernus (Curtis, 1830) | + |
| Caenis horaria (Linnaeus, 1758) | + |
| Caenis macrura Stephens, 1835 | + |
| Collembola indet. | +++ |
| сем. Sminturidae indet. | + |
| Podura sp. | + |
| отр. Psocoptera indet. | + |
| Tardigrada sp. | + |
| отр. Homoptera indet. | ++ |
| отр. Coleoptera indet. | + |
| сем. Staphilinidae indet. | + |
| сем. Curculionidae indet. | + |
| сем. Ptilidae indet. | + |
| сем. Elmidae indet. | ++ |
| сем. Lumiidae indet. | + |
| отр. Neuroptera indet. | + |
| отр. Lepidoptera indet., личинки | ++ |
| отр. Hymenoptera indet. | +++ |
| сем. Formacidae indet. | + |
| отр. Thysanoptera indet. | +++ |
| отр. Diptera indet. | +++ |
| сем. Tipulidae indet. | + |
| сем. Limoniidae indet. | + |
| сем. Сhironomidae indet. | +++ |
| сем. Simuliidae indet. | +++ |
*V – встречаемость таксона: +++ – массовый, ++ – обычный, + – редкий.
Среди дрейфующих организмов наиболее многочисленны кишечнополостные Hydra sp., малощетинковые черви Oligochaeta, ракообразные Corophium curvispinum Sars, 1895, клопы Micronecta sp., водные клещи Hydracarina, личинки ручейников (Hydroptilidae, Leptoceridae), личинки поденок Ephemeroptera (Baetidae), личинки и куколки комаров-звонцов Сhironomidae, Simuliidae (рис. 1).
Значительно реже в пробы попадают личинки и имаго жуков Elmidae, личинки Ceratopogonidae, личинки мух Atherix ibis (Fabricius, 1798), веснянок Perlodidae, ручейников Brachycentridae, Psychomyiidae, Polycentropodidae, поденок Baetis fuscatus (Linnaeus, 1761), B. inexpectatus (Tshernova, 1982), B. vernus Curtis, 1830, Heptagenia fuscogrisea (Retzius, 1783), Ecdyonurus aurantiacus (Burmeister, 1839), Ephemera lineata Eaton, 1870, Potamanthus luteus (Linnaeus, 1767), Caenis horaria (Linnaeus, 1758), Habrophlebia lauta (McLachlan, 1884) и Ephemerella ignita (Poda, 1761), пиявки и моллюски.

Рис. 1. Таксономическая структура организмов водной фракции дрифта
Таким образом, можно сказать, что структура дрифта не является точным отражением структуры зообентоса, возможно, это связано с различиями в миграционной активности животных, а так же с их разной способностью удержаться на грунте в условиях сильного течения.
Здесь же следует рассмотреть и воздушную фракцию в составе дрифта, или аллохтонный компонент дрифта (Чебанова, 1992). К данной группе относятся животные суши, случайно оказавшиеся в воде.
Постоянным компонентом в пробах являются имагинальные стадии Diptera, Hymenoptera, представители Thysanoptera (рис. 2).
Реже, в основном, в вечернее время, в пробах обнаруживаются взрослые представители амфибиотических насекомых Trichoptera и Ephemeroptera. Из ручейников чаще всего встречаются имаго Hydroptilidae, из поденок – Baetidae (Baetis sp.). Единичными экземплярами представлены имаго Caenis macrura (Stephens, 1835), Caenis horaria (Linnaeus, 1758), Psychomyia pusilla (Fabricius, 1781), Ithytrichia lamellaris (Eaton, 1873), Cheumatopsyche lepida (Pictet, 1834).
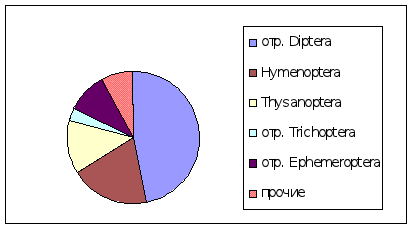
Рис. 2. Таксономическая структура организмов воздушной фракции дрифта
Малую долю сносимых в воду животных составляют личинки Lepidoptera, имаго Neuroptera, Coleoptera, Homoptera, Collembola, Araneae. Вероятно, данные группы животных сносятся ветром, либо смываются с берегов во время дождей.
4.2 Вертикальное распределение организмов дрифта
Как видно из таблицы 2, вертикальное распределение организмов дрифта не вполне однородно.
Таблица 2. Вертикальная структура дрифта
|
Таксон |
Поверхностный горизонт |
Придонный горизонт |
|||
|
днем |
ночью |
днем |
ночью |
||
| Hydra sp. | 6,7 | 6,7 | 2,1 | 1,5 | |
| Oligochaeta indet. | 4,8 | 5,0 | 4,4 | 4,7 | |
| Erpobdella octoculata Linne, 1758 | 0,0 | 0,1 | 0,1 | 0,0 | |
| Hellobdella stagnalis Linne, 1758 | 0,0 | 0,3 | 0,0 | 0,0 | |
| Piscicola geometra (Linne, 1761) | 0,1 | 0,3 | 0,0 | 0,2 | |
| сем. Spheariidae indet. | 0,1 | 0,3 | 0,0 | 0,1 | |
| Sphaerium corneum (Linnaeus, 1758) | 0,1 | 0,0 | 0,0 | 0,0 | |
| Sphaerium nitidum | 0,2 | 0,1 | 0,0 | 0,0 | |
| Valvata sp. | 0,0 | 0,0 | 0,0 | 0,11 | |
| Bithynia tentaculata (Linnaeus, 1758) | 0,3 | 0,5 | 0,0 | 0,0 | |
| сем. Lymnaeidae indet. | 0,0 | 0,1 | 0,0 | 0,0 | |
| Lymnaea sp. | 0,1 | 0,2 | 0,1 | 0,0 | |
| сем. Planorbidae indet. | 0,0 | 0,1 | 0,3 | 0,6 | |
| Corophium curvispinum Sars, 1895 | 7,0 | 8,4 | 0,6 | 1,2 | |
| Ostracoda | 1,8 | 1,0 | 1,0 | 1,2 | |
| Hydracarina | 51,0 | 95,3 | 15,0 | 23,3 | |
| Micronecta sp. | 20,3 | 24,7 | 1,0 | 20,9 | |
| Aphelocheirus aestivalis (Fabricius, 1794) | 0,0 | 0,1 | 0,0 | 0,3 | |
| сем. Elmidae indet. | 1,1 | 1,1 | 1,3 | 1,6 | |
| Отр. Trichoptera indet. | 4,4 | 17,3 | 2,6 | 13,0 | |
| Сем. Hydropsychidae indet. | 0,5 | 1,5 | 0,0 | 1,8 | |
| Cheumatopsyche lepida (Pictet, 1834) | 0,0 | 0,1 | 0,0 | 0,3 | |
| Hydropsyche contubernalis (McLachlan, 1865) | 0,5 | 3,0 | 0,3 | 1,3 | |
| Сем. Hydroptilidae indet. | 1,4 | 2,7 | 0,2 | 0,9 | |
| Hydroptila sp. | 0,5 | 1,0 | 0,1 | 0,7 | |
| Ithytrichia lamellaris (Eaton, 1873) | 0,4 | 1,7 | 0,2 | 1,4 | |
| Orthotrichia costalis (Curtis, 1834) | 0,0 | 0,2 | 0,0 | 0,1 | |
| Tricholeiochiton fagesii (Guinard, 1879) | 0,3 | 2,3 | 0,2 | 1,5 | |
| Сем. Leptoceridae indet. | 0,8 | 21,2 | 0,2 | 9,0 | |
| Brachycentrus subnubilus (Curtis, 1834) | 0,1 | 0,2 | 0,0 | 0,0 | |
| Psychomyia pusilla (Fabrricius, 1781) | 0,1 | 0,1 | 0,0 | 0,2 | |
| Отр. Ephemeroptera indet. | 0,1 | 0,1 | 0,0 | 0,0 | |
| Сем. Baetidae indet. | 1,3 | 16,9 | 0,9 | 8,1 | |
| Cloeon luteolum (Muller, 1776) | 0,3 | 51,4 | 0,5 | 17,7 | |
| Baetis fuscatus (Linnaeus, 1761) | 0,0 | 0,1 | 0,0 | 0,0 | |
| B. inexpectatus (Tshernova, 1982) | 0,0 | 0,3 | 0,0 | 0,2 | |
| B. muticus (Linnaeus, 1758) | 0,2 | 0,6 | 0,1 | 0,4 | |
| B. niger (Linnaeus, 1761) | 0,0 | 0,3 | 0,0 | 0,0 | |
| B. scambus (Eaton, 1870) | 0,5 | 15,5 | 0,2 | 1,4 | |
| B. vernus (Curtis, 1830) | 0,1 | 0,1 | 0,0 | 0,3 | |
| Baetis sp. | 1,3 | 1,0 | 0,8 | 0,4 | |
| Heptagenia sulphurea (Muller, 1776) | 0,1 | 0,7 | 0,1 | 0,4 | |
| Potamanthus luteus (Linnaeus, 1767) | 0,0 | 0,2 | 0,2 | 0,2 | |
| Caenis macrura (Stephens, 1835) | 0,2 | 1,7 | 0,3 | 2,5 | |
| Ephemerella ignita (Poda, 1761) | 0,0 | 0,3 | 0,1 | 0,0 | |
| сем. Perlodidae indet. | 0,1 | 0,0 | 0,0 | 0,1 | |
| отр. Diptera indet., куколки | 0,0 | 0,3 | 0,0 | 0,1 | |
| Atherix ibis, личинки | 0,1 | 0,1 | 0,0 | 0,01 | |
| сем. Сhironomidae, личинки | 37,3 | 88,4 | 21,2 | 50,71 | |
| сем. Сhironomidae, куколки | 14,7 | 20,7 | 2,4 | 4,6 | |
| сем. Simuliidae, личинки | 3,3 | 15,7 | 2,3 | 10,4 | |
| сем. Simuliidae, куколки | 0,4 | 0,1 | 0,2 | 0,0 | |
| сем. Culicidae | 1,1 | 1,1 | 0,0 | 0,0 | |
| сем. Ceratopogonidae | 0,0 | 2,2 | 0,1 | 0,0 | |
| Прочие | 0,2 | 9,3 | 0,5 | 14,4 | |
|
ВСЕГО |
163,7 |
422,2 |
59,8 |
197,6 |
|
Большинство организмов сносятся в поверхностном горизонте воды (табл. 2), что еще раз доказывает тот факт, что дрифт не является полностью пассивным процессом (Леванидов, Леванидова, 1981).
Более высокая плотность животных в верхних слоях воды объясняется их целенаправленными миграциями, которые могут быть спровоцированы столкновениями конкурирующих особей. Это может быть связано с вылетом ряда групп амфибиотических насекомых, которому предшествует активный предимагинальный дрифт (Леванидов, Леванидова, 1981).
Пассивное всплытие организмов происходит вместе с фрагментами перифитонных матов (сем. Naididae) или увлечением их с турбулентными токами воды (личинки и взрослые жуки Elmidae) (Паньков, 2007).
Литературные данные о вертикальном распределении организмов дрифта довольно противоречивы. Так в мощном предгорном потоке (р. Хор) плотность всплывающих организмов в верхнем горизонте была в 4 – 5 раз выше, чем в придонном (Леванидов, Леванидова, 1981).
В небольшой горной реке Щугор, напротив, наибольшая численность дрейфующих организмов приурочена к придонному горизонту (Шубина, 1986). Мигрирующие беспозвоночные преобладают в придонном горизонте и в р. Волге (Аристовская, 1945).
Таким образом, вертикальное распределение организмов дрифта еще не достаточно изучено и нуждается в дальнейшем исследовании.
4.3 Суточная динамика интенсивности дрифта
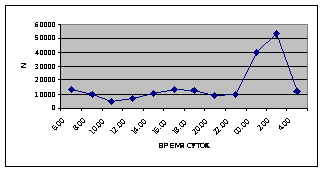
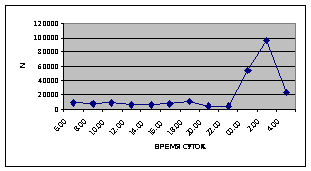
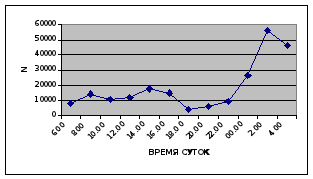
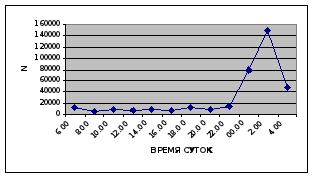
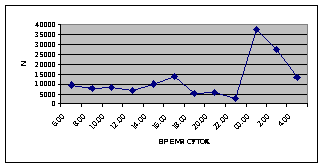
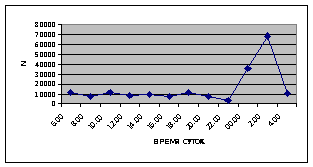
Суточная динамика интенсивности дрифта донных беспозвоночных р. Сылвы описывается кривой довольно сложной конфигурации, на которой могут быть выделены максимумы и минимумы первого и второго порядков (рис. 3).
Рассмотренная кривая на уровне элементов первого порядка имеет одновершинную форму с наивысшими показателями с двенадцати до двух часов ночи и низкими показателями в дневные часы.
а) 29 июня 2005 г. д) 19 июня 2006 г.
б) 06 июля 2005 г. е) 11 июля 2006 г.
в) 16 июля 2005 г. ж) 18 июля 2006 г.
г) 18 июля 2005 г. з) 27 июля 2006 г.
Рис. 3. Суточная динамика интенсивности дрифта (N, экз/ м2 в час, водная фракция)
Важной характеристикой дрифта является амплитуда колебаний его параметров в течение суток. В р. Сылве максимальная интенсивность дрифта (Nmax) превосходит минимальную (Nmin) в 4,5 – 23,4 раз.
Минимальные показатели интенсивности дрифта приурочены к дневному времени суток, в основном, с четырех часов утра до восьми часов вечера. Они изменяются в пределах от 7,2 до 21,4 тыс. экз/ мІ в час.
В этот период мигрируют животные с разной склонностью к дрифту. Это могут быть и животные, сравнительно легко расстающиеся с бенталью и животные, в целом не расположенные к вертикальным миграциям.
К ним относятся водные клещи Hydracarina и клопы Micronecta sp., ракообразные Corophium curvispinum Sars, 1895 и Ostracoda sp., личинки амфибиотических насекомых Trichoptera, Ephemeroptera, Diptera и другие (прилож. 1, 5, 9, 13, 17, 21, 25, 29).
Далее, с десяти до двенадцати часов ночи, наблюдается увеличение интенсивности дрифта до 40,5 тыс. экз/ мІ в час. Это происходит за счет увеличения миграционной активности амфибиотических насекомых: личинок и куколок Сhironomidae, Leptoceridae, Baetidae (Cloeon luteolum (Muller, 1776)).
К двум часам ночи интенсивность дрифта возрастает до максимальных значений в суточном цикле, в среднем до 63,8 тыс. экз/ мІ в час. Эти показатели обусловлены подъемом в толщу воды массовых групп животных. К ним относятся личинки и куколки Сhironomidae, Trichoptera, Cloeon luteolum, Baetis scambus и другие таксоны (прилож. 1, 5, 9, 13, 17, 21, 25, 29).
Приуроченность наивысших показателей интенсивности дрифта к первой половине ночи отмечена и в литературе (Леванидов, Леванидова, 1981; Богатов, 1983; Шубина, 1986; Задорина, 1987б).
Именно в эти часы дрифт достигает не только максимальной интенсивности, но и максимального разнообразия – в пробах отмечены все зарегистрированные таксономические группы (прилож. 1, 5, 9, 13, 17, 21, 25, 29).
Пик интенсивности дрифта обусловлен возрастанием миграционной активности всех участвующих в дрифте групп. Наибольшая интенсивность дрифта в эти часы зарегистрирована у личинок Ephemeroptera – 20,1 тыс. экз/ мІ, Trichoptera – 9,8 тыс. экз/ мІ и у личинок Сhironomidae – 15,1 тыс. экз/ мІ в час (рис. 4).
Иногда максимальная интенсивность дрифта в течение суток достигает показателей в 148,7 тыс. экз/ мІ в час (18 июля 2006 г.), а в другие дни она может быть ниже в несколько раз (6 июля 2005 г. – 23,8 тыс. экз/ мІ в час).
Вероятно, различия показателей интенсивности дрифта напрямую связаны с погодными и гидрологическими условиями. Так, 6 июля 2005 г. температура воздуха была +13…+150С, а 18 июля 2006 г. – +34…+360С, при этом уровень воды в начале июля 2005 г. был выше уровня воды в этот же период 2006 г.
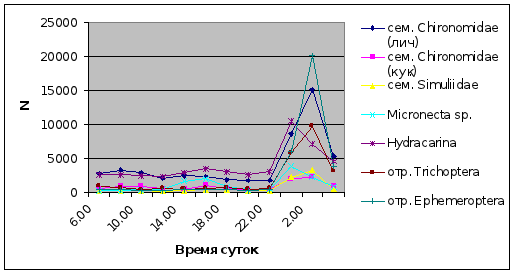
Рис. 4. Суточная динамика интенсивности массовых таксонов водной фракции дрифта (N, экз/ мІ в час)
С наступлением утренних сумерек интенсивность дрифта резко уменьшается и достигает минимальных показателей – 6,5 тыс. экз/ мІ в час. Возможно, к этому времени большинство организмов удовлетворили свои потребности в расселении.
На фоне дневного минимума можно наблюдать пики второго порядка. Такие пики были отмечены 29 июня 2005 г. в шесть часов утра и в четыре часа дня, 6 июля 2005 г. – в восемь и четыре часа, 16 июля 2005 г. – в восемь и четыре часа, 18 июля 2005 г. – в четыре часа дня и 11 июля 2006 г. – в восемь и четыре часа. 19 июня, 18 и 27 июля 2006 г. пиков второго порядка вообще не наблюдалось (рис. 3).
Большую долю в максимальных пиках второго порядка составляют водные клещи Hydracarina, клопы Micronecta sp., ракообразные Corophium curvispinum Sars, 1895, личинки и куколки Сhironomidae.
Миграционная активность бентосных животных находится в противофазе с пищевой активностью хариуса – одного из наиболее многочисленных видов рыб на Сылве (Паньков, 2002). Низкие показатели дрифта утром можно объяснить наибольшей активностью хариуса в эти часы.
В целом показатели интенсивности дрифта р. Сылвы имеют довольно высокие значения и сильно отличаются от литературных данных по разным водотокам. Так для р. Лувеньги (Кольский полуостров) интенсивность дневного дрифта изменялась от 45 до 125 экз/ мІ в час в конце июня – начале июля (Задорина, 1987б); для р. Лижмы (бассейн Онежского озера) интенсивность дрифта составила 554–1545 экз/ мІ в час (Шустов, Широков, 1980); в р. Порье (бассейн Белого моря) интенсивность дрифта в июле составила 665–1194 экз/ мІ в час (Задорина, 1987а).
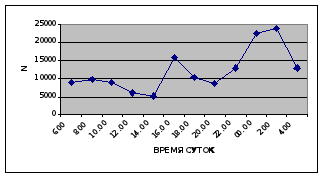
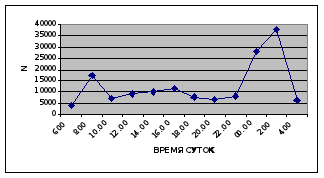
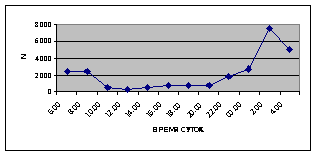
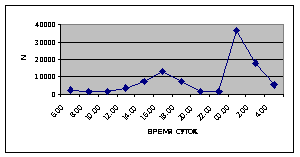
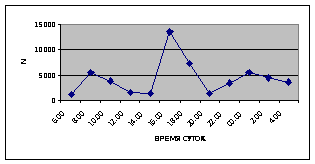
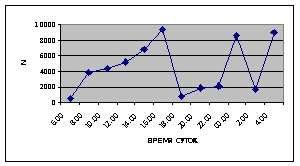
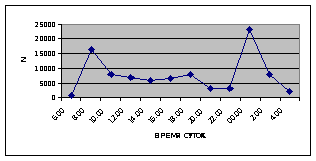
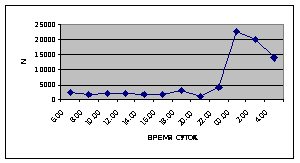
Суточная динамика интенсивности воздушной фракции дрифта не обнаруживает четкой закономерности (рис. 5).
На кривых, описывающих суточный ритм интенсивности воздушной фракции дрифта выделяется от одного до трех пиков (от 1,5 до 17,6 тыс. экз/ мІ в час), которые приходятся как на светлое, так и на темное время суток.
Вероятно, это объясняется тем, что в воздушной фракции дрифта присутствуют организмы с разной биологией и с различной суточной активностью.
а) 29 июня 2005 г. д) 19 июня 2006 г.
б) 06 июля 2005 г. е) 11 июля 2006 г.
в) 16 июля 2005 г. ж) 18 июля 2006 г.
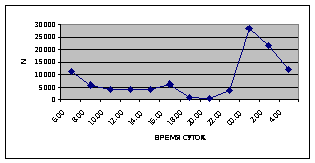
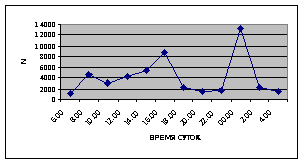
г) 18 июля 2005 г. з) 27 июля 2006 г.
Рис. 5. Суточная динамика интенсивности дрифта (N, экз/ мІ в час, воздушная фракция)
Тем не менее, имеются некоторые общие черты суточной динамики водной и воздушной фракции дрифта.
В большинстве случаев максимальные пики интенсивности воздушной фракции дрифта приходятся на ночное время суток. Исключение составляют показатели интенсивности дрифта 6 июля 2005 г. и 11 июля 2006 г. Здесь максимальные пики интенсивности дрифта отмечены в дневное время. Это связано с увеличением суточной активности взрослых особей Сhironomidae, Hymenoptera и Thysanoptera.
Минимальные показатели интенсивности дрифта воздушной фракции приурочены к дневному времени суток и изменяются в пределах от 1,5 до 7,5 тыс. экз/ мІ в час.
Днем самая высокая интенсивность дрифта воздушной фракции отмечена 6 июля 2005 г. (13,5 тыс. экз/ мІ в час) в четыре часа, 16 июля 2005 г. в восемь часов утра (16,6 тыс. экз/ мІ в час) и 19 июня 2006 г. (13,2 тыс. экз/ мІ в час) в четыре часа за счет суточной активности имаго Diptera и Thysanoptera (рис. 5, 6; прилож. 6, 10, 18).
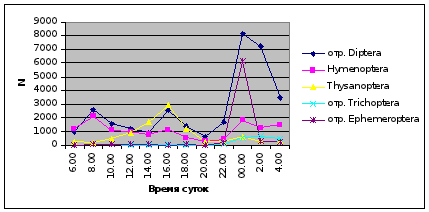
Рис. 6. Суточная динамика интенсивности массовых таксонов воздушной фракции дрифта (N, экз/ мІ в час)
Максимальные показатели интенсивности дрифта воздушной фракции приходятся на двенадцать часов ночи и изменяются в пределах 2,7 – 36,5 тыс. экз/ мІ в час.
Самая высокая интенсивность дрифта воздушной фракции была отмечена 19 июня 2006 г. (36,5 тыс. экз/ мІ в час) в двенадцать часов ночи, когда наблюдался вылет поденок Baetis sp. и двукрылых (рис. 6; прилож. 18).
Выводы
1. В составе водной фракции дрифта беспозвоночных р. Сылвы летом 2005–2006 гг. зарегистрировано 23 таксономические групп, в воздушной фракции – 13.
В водной фракции дрифта наиболее разнообразно представлены амфибиотические насекомые: Ephemeroptera (16 видов), Trichoptera (12 видов), Diptera (5 семейств).
Достаточно богаты видами моллюски (Sphaerium corneum (Linnaeus, 1758), Valvata sp., Bithynia tentaculata (Linnaeus, 1758), Opisthorchophorus hispanicus (Servain, 1880), Lymnaea sp., Ancylus fluviatilis Mueller, 1774, Armiger crista (Linnaeus, 1758), Bradybaena sp., Acrolocsus sp.), пиявки (Erpobdella octoculata Linne, 1758, Hellobdella stagnalis Linne, 1758, Piscicola geometra (Linne, 1761)).
По численности в водной фракции дрифта преобладают личинки и куколки комаров-звонцов Сhironomidae, личинки мошек Simuliidae, личинки поденок Baetis scambus (Eaton, 1870), Cloeon luteolum (Muller, 1776), ручейников Leptoceridae, Hydroptilidae, водные клещи Hydracarina, клопы Micronecta sp.
Существенную роль в составе дрифта играют личинки ручейников Hydroptilidae, Leptoceridae и поденок Baetidae, ракообразные C. curvispinum Sars, 1895, клопы Micronecta sp.
В составе воздушной фракции дрифта обычным компонентом являются имагинальные стадии Diptera (Сhironomidae, Simuliidae), Hymenoptera и Thysanoptera. В вечернее время можно наблюдать взрослых представителей амфибиотических насекомых Trichoptera (Hydroptilidae) и Ephemeroptera (Baetidae).
Малую долю сносимых в воду животных составляют личинки Lepidoptera, имаго Neuroptera, Coleoptera, Homoptera, Collembola, Araneae.
2. Вертикальное распределение организмов неоднородно: плотность дрейфующих организмов в поверхностном горизонте в 2,0 – 2,7 раза выше, чем в придонном. Это объясняется активным подъемом организмов в толщу воды.
3. Суточная динамика интенсивности дрифта описывается кривой сложной конфигурации, на которой выделяются максимумы и минимумы первого и второго порядков.
Наивысшие показатели интенсивности водной фракции дрифта (23,8 – 148,7 тыс. экз/ мІ в час) приурочены к самому темному времени суток (2 часа), показатели интенсивности воздушной фракции дрифта (2,7 – 36,5 тыс. экз/ мІ в час) – к двенадцати часам ночи. Минимальные показатели интенсивности водной фракции дрифта (3,9 – 18,0 тыс. экз/ мІ в час) и воздушной фракции дрифта (0,3 – 1,7 тыс. экз/ мІ в час), как правило, наблюдаются в утренние и дневные часы.
В определении суточной динамики водной фракции дрифта наибольшую роль играют личинки Сhironomidae, личинки поденок Ephemeroptera, Trichoptera, водные клещи Hydracarina, воздушной фракции дрифта – имагинальные стадии Сhironomidae, Hymenoptera и Thysanoptera.
Литература
Алексевнина М.С., Буйдов А.С. Фауна хирономид (Diptera, Chironomidae) р. Сылвы (бассейн Камы) // Вестн. Перм. ун-та, 1997. С. 148 – 152.
Аристовская Г.В. О значении сноса донных организмов р. Волги // Труды Общества естествоиспытателей при Казанском ун-те. Казань, 1945. Т.57. Вып. 1 – 2. С. 3 – 10.
Богатов В.В. Донные беспозвоночные и их дрифт