Біологічний контроль збудників хвороб рослин
бур'янів та інших рослин, що знаходяться в цій культурі;
- кількість потенційно інфекційного інокулюму;
- природа та modus vivendi переносника (наприклад, щодо попелиць, то має значення чи це колонії, чи крилаті форми);
- передається вірус за допомогою стилету, є він циркулюючим чи розмножується в переноснику;
- час, коли переносник стає активним, відносно строків вегетації рослин даної культури;
- погодні умови.
Ван Дер Планк ще у 1946 році запропонував метод, за допомогою якого можна визначити, чи розповсюджується вірус в межах ділянки від ураженої рослини, чи він потрапляє зовні. Його засновано на припущенні, що вірус, який потрапляє зовні, буде викликати випадкове ураження рослин, тоді як при його розповсюдженні від хворої рослини до хворої, уражені рослини будуть розташовані групами. Таким чином, оцінюючи кількість пар уражених рослин відносно очікуваної, роблять висновок про походження вірусу.
Для вірусів, що розповсюджуються через грунт швидкість розповсюдження залежить від:
- типу переносника;
- структури, вологості, щільності і т.п. ґрунту;
- густини рослин-господарів;
- кліматичних умов;
- інших факторів.
Однак, відомі і виключення. Так, ВТМ — один з небагатьох вірусів, що в помітних кількостях поширюється через грунт без допомоги переносників.
Окрему групу феноменів складає перенесення вірусів на великі відстані. Більшість з таких явищ спонтанні і здебільшого не підлягають передбаченню. Вони порушують усталену рівновагу в ценозі, і тому довгострокові прогнози можливі лише на відносно стабільних системах, оскільки охоплюють коло тільки відомих характеристик.
На ураженість деякої культури захворюванням вірусної етіології значний вплив мають методи її вирощування та заходи обробки, що застосовують протягом багатьох сезонів. Тому будь-який прогноз має містити рекомендації щодо вдалого сівообігу, засобів обробки, термінів висіву та збору рослин. Вплив різного роду факторів, що мають значення у данному випадку, можна розглянути на таких прикладах.
Якщо поряд із полем озимини знаходиться поле ярої пшениці, ураженої вірусом смугастої мозаїки, то висів озимини до збору ярової пшениці призводить до великого ступеня її ураження ВСМП, який переноситься кліщами.
Тип сівообігу має деякий вплив на розповсюдженість вірусів, що здатні зимувати в бур'янах або у падалиці попередньої культури. В деяких культурах велика кількість спонтанно ростучих рослин, що містять вірус, може вегетувати довгий термін. Донкастер та Грегорі довели, що для того, щоб позбавитись від таких рослин картоплі, необхідно 5-6 років. А у випадку багаторічних культур кількість хворих рослин збільшується із віком культури.
На розповсюдженість та зберігання вірусів в грунті або рослинних залишках можуть мати вплив методи обробки грунту. Нематоди, а також гриби, що є переносниками вірусів, можуть розповсюджуватись при переміщенні грунту під час обробки. На зберігання ВТМ в рослинних залишках впливає ступінь аерації грунту, його вологість. Якщо попередньою культурою була картопля, то обробка грунту у холодну погоду може суттєво знизити виживання невикопаних бульб.
Щільність насадження та розмір рослин впливають на ймовірність їх зараження. Так випадки ураження вірусом жовтяниці буряку, вірусом мозаїки буряку та вірусом мозаїки кольорової капусти відмічались рідше, коли відстань між рядками рослин була менша. Також низькі рослини мають менше шансів бути відвіданими переносником, ніж високі.
Останнім часом все більшу увагу привертають бур'яни та дикоростучі рослини, роль яких в минулому недооцінювалась.
2.3 Розповсюдженість вірусів. Абіотичні фактори
При аналізі даних по захворюваності вірусними хворобами цукрового буряку в Англії було зроблено висновки, що сезонні коливання частоти ураження є наслідком довготривалого впливу погодних умов на популяцію попелиці-переносника протягом більшої частини сезону вегетації. Вони впливають на строки та чисельність попелиць, що мігрують на культуру, на розвиток популяції всередині культури та на її переміщення. Ґрунтові умови можуть різним чином впливати на ступінь ураження вірусними захворюваннями. На високо родючих ґрунтах ймовірність розповсюдження вірусних хвороб збільшується. Так, внесення органічних та деяких неорганічних добрив збільшувало на картопляних полях кількість рослин, що уражені вірусом скручування листків картоплі та УВК. На ступінь ураження, безперечно, впливає живлення рослин, пригнічуючи симптоми або роблячи їх більш чіткими. Як вже обговорювалось, ґрунтові умови відіграють помітну роль, впливаючи на зберігання ВТМ в рослинних залишках. Інактивація вірусу проходить швидше у вологих, добре аерованих ґрунтах, ніж у сухих, щільних або заболочених.
Таким чином, підсумовуючи, можна сказати, що не всім вірусам притаманні всі ті властивості, що сприяють їх виживанню та розповсюдженню, але кожному з них властива така їх комбінація, що дозволяє зберігатись в даних умовах більш-менш ефективно. Вважають, що при довготривалому впливі природного добору на вірус та генотип рослини-господаря і при відсутності втручання людини віруси зможуть так адаптуватися до рослин-господарів та своїх переносчиків, що їх дія буде мінімальною. Але, оскільки найближчим часом такого не передбачається, єдиним шляхом для людства є боротьба з вірусними захворюваннями, і не останнє місце в упередженні епіфітотій посідає їх прогнозування.
2.4 Шляхи передачі вірусів рослин в природних умовах
Термін життя окремої рослини обмежений, тому необхідною умовою виживання вірусу є перехід його від одної рослини до іншої. Джерелом інфекції може бути насіння або пилок, вегетативні частини рослини, бур'яни, комахи (у випадку персистентних вірусів), грунт. Передача вірусів за допомогою насіння представляє собою дуже ефективний спосіб ураження будь-якої культури на ранніх стадіях розвитку, так як на ділянці, де вирощується дана культура, з'являються хаотично розміщені осередки інфекції. Таким чином, якщо на даній ділянці вірус може передаватися від рослини до рослини іншими способами, внесення віруса в культуру за допомогою насіння являє собою важливий економічний фактор. Віруси таких родів, як Hordeivirus та Capillovirus, а також криптовіруси родини Partitiviridae передаються тільки насінням, але за допомогою насіння можуть передаватися і деякі представники Trichovirus, Carlavirus, Badnavirus, Machloraovirus, Sobemovirus, Idaeovirus, Tobamovirus, Closterovirus, Tombusviridae. Трансплантаційна передача вірусів може проходити за допомогою вегетативних частин рослини (пагонів, бульб, цибулин, вусиків), щепленням (привій, підвій) та за допомогою повитиці (Cuscuta spp.). Повитиця, що паразитує на вищих рослинах, належить до родини Convolvulaceae. Вона утворює гаусторії, які проникають у провідну систему росли-ни-господаря, і таким чином, може передавати віруси рослин (85). Трансплантаційна передача характерна для представників багатьох груп вірусів рослин — Trichovirus, Capillovirus, Closteroviridae, Badnavirus, Reoviridae, Tombusviridae. Механічний або контактний спосіб передачі вірусу має особливо важливе практичне значення на ранніх етапах росту польових культур. В природних умовах віруси можуть передаватися при контакті між собою, при застосуванні агротехнічних засобів. В останні роки велика кількість фітопатогенних вірусів, що не переносяться векторами, була виявлена в ґрунтах, ґрунтових водах, ріках, озерах та в морі. Рослинні патогени можуть різними методами попадати в грунт. Найбільш ймовірним є проникнення вірусів з інфікованими рослинами або рослинними залишками, в яких віруси можуть прямим або опосередкованим шляхом попадати в грунт. Прямий шлях полягає в тому, що інфіковані рослинні залишки залишаються в грунті (корінці) або з залишками рослин попадають в грунт (паростки, вегетативні органи). При цьому слід звернути увагу на те, що віруси, які містяться в рослинних залишках частіше довше залишаються іфекційними, ніж віруси, які знаходяться в грунті у вигляді вільних віріонів. Інфіковані вірусом рослини, які вживають люди та тварини, що можуть проходити через шлунок без втрати інфекційності та контамінвати грунт через екскременти, представляють непрямий шлях контамінації грунту. Представники Tombusviridae та Diantovirus передаються без допомоги векторів через грунт, хоча деякі віруси, наприклад, вірус брязкотіння тютюну — tobacco rattle Tobravirus — може переноситися нематодами або грибами (ще один приклад — вірус некрозу тютюну — tobacco necrpsis Necrovirus).
Переносниками вірусів рослин є членистоногі, нематоди та гриби (рис. 2.). Кожен вірус звичайно має своїх переносників, що належать, як правило, до однієї таксономічної групи. Представники двох класів членистоногих — комахи (Insecta) та павукоподібні (Arachnida) можуть переносити віруси рослин. Безумовний інтерес привертає до себе ряд Homoptera, куди відносяться такі важливі переносники вірусів рослин, як цикади, попелиці та білокрилки.
Представники підряду Aphidinea (попелиці) дуже широко представлені в усьому світі. На території України нараховується близько 77 видів попелиць.
Найважливішими представниками попелиць, що являються переносниками багатьох фітовірусів, є Macrosiphum (Sitobion) avenae (велика злакова), Rhopalosiphum padi (черемхова), Rhopalosiphum maidis (соргова або кукурудзяна), Schizaphis graminum (звичайна злакова), Myzus persicae (зелена персикова), Aphis fabae (бурякова), Macrosiphum euphorbiae (велика картопляна), Myzus (Phorodon) humuli (хмелева), Brachycaudus helichrysi (геліхризова) та ін.
Ротовий апарат попелиці чудово пристосований для інокуляції вірусів. В роботах з застосуванням рослин, що були мічені радіоактивними ізотопами, показано, що при живленні Myzus persicae на рослині-господарі протягом першої години комаха поглинає близько 10 мкл соку рослини, після чого інтенсивність поглинання зростає до 40 мкл/год, що може бути наслідком проникнення стилетів попелиць у флоему — тканину, якій вони надають перевагу. Віруси можуть передаватися попелицями неперсистентно, пересистентно та напівперсистентно. Неперсистентні віруси (потівіруси, карлавіруси, кукумовіруси) передаються при звичайній інокуляції соку уражених рослин і, як правило, викликають симптоми мозаїки. В даному випадку взаємовідносини віруса і переносника не є специфічними. Період порогу передачі займає всього 2 хвилини, а тривалість апробацій, протягом яких віруси активно захоплюються переносником і передаються здоровим рослинам, складає всього 10-30 сек., що дозволяє припускати, що віруси набуваються з клітин епідермісу і вводяться також в клітини епідермісу. Напівперсистентно передаються попелицями представники роду Crinivirus (Closteroviridae). Період порога передачі для вірусу жовтухи буряку складає приблизно 30 хв. Він передається більш ефективно, якщо період доступу продовжується декілька годин. Віруси, що переносяться попелицями персистентно, поділяються на дві групи: ті, що не розмножуються в переноснику (вірус жовтої карликовості ячменю, Luteovirus) та віруси, що розмножуються в переноснику (вірус некротичного пожовтіння салата-латука, Rhabdoviridae).
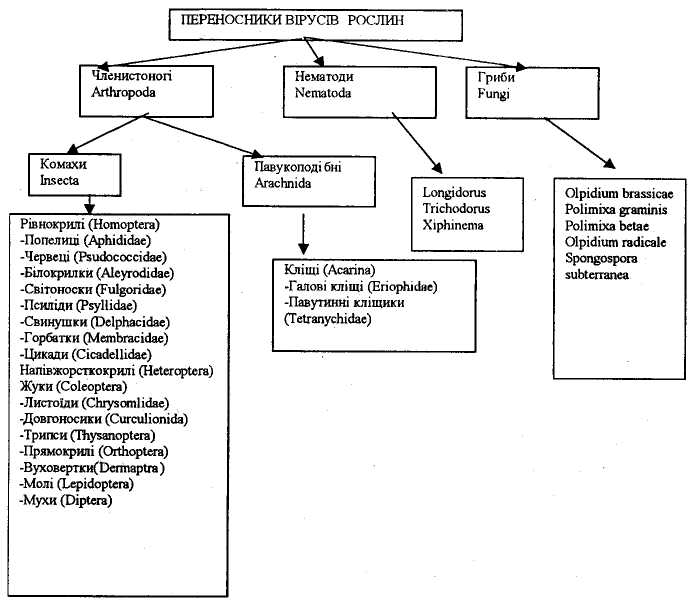
Рис. 2. Переносники вірусів рослин
Близькі види попелиць відрізняються по спроможності передавати вірус. Наприклад, М. persicae, що живиться на хрестоцвітих, уражених одночасно вірусом мозаїки кольорової капусти та вірусом чорної кільцевої плямистості капусти, може передавати обидва віруси, тоді як М. ornatus здатна в цьому випадку передавати лише вірус мозаїки кольорової капусти. На розповсюдження попелиць впливають погодні умови. Розглянемо класичний приклад: у червні 1945 року в Англії була зареєстрована дуже невелика кількість Myzus persicae, але в тей же рік спостерігався великий спалах вірусної інфекції. В червні 1946 року відмічалася найбільша кількість Myzus persicae за останні вісім років, на протязі яких проводилося обстеження, однак рівень ураження в цьому році був низьким. На основі данних, отриманих при роботі з подібними джерелами інфекції, можна припустити, що сезонні коливання частоти ураження такої культури, як цукровий буряк, можливо є наслідком тривалого впливу погодних умов на популяцію попелиці-переносника на протязі більшої частини сезону вегетації. Вони впливають на строки та чисельність попелиць, що мігрують на культуру, на розвиток популяції в середині культури та на її переміщення.
Донедавна білокрилки не відносилися до групи комах, здатних переносити віруси, що можуть викликати епідемії. Говорячи про білокрилок, як правило, припускалося, що ці комахи можуть приводити до економічних збитків в деяких тропічних регіонах та тепличних господарствах, викликаючи пожовтіння листків та призупинення росту рослин. Ще донедавна проблема широкого поширення білокрилок та пов'язаних з ними епіфітотій була актуальною переважно для тропічних та субтропічних регіонів, але вже сьогодні вона постає в агросистемах помірного клімату.
За літературними даними білокрилки можуть переносити представників 4 груп вірусів рослин (родин Geminiviridae, Closteroviridae, Potyviridae та роду Carlavirus).
На сьогодні відомо кілька видів алейродид, здатних переносити віруси культурних рослин. До них належать: білокрилка батата (Bemisia tabaci), білокрилка посрібнених листків (Bemisia argentifolii), оранжерейна білокрилка (Trialeurodes vaporariorum) та облямована білокрилка (Trialeurodes abutilonea).
Фукусі встановив, що вірус карликовості рису передається цикадкою Nepotettix apicalis трансоваріально. Такого роду передача має місце, коли вірус містить самка; коли ж інфекційний тільки самець, передача вірусу неможлива. Фукусі показав також, що цей вірус може також без додаткового інфікування передаватися через яйця на протязі 7 поколінь, що ведуть своє походження від однієї інфікованої самки. На сьогодні є відомості про наявність трансоваріальної передачі у представників Tenuivirus, Reoviridae.
Представники двох родин кліщів класу Arachnida — Tetranychidae та Eriophyidae — можуть переносити віруси рослин. Серед еріофіїд найбільш вивченим клецем-переносником є Aceria tulipae, що здатний передавати вірус смугасатої мозаїки пшениці. Взаємовідносини кліща і віруса вивчені досить детально. Переносник може набувати вірус протягом 15 хв. на хворій рослині і такий же період необхідний для передачі віруса. Після линяння Aceria tulipae не втрачає інфекційності. Передаватися кліщем можуть представники Rhabdo та Potyviridae.
Представники двох основних груп грибів, що уражують корені рослин, виконують роль переносників вірусів рослин — гриб Olpidium spp. серед Chytridiales, та Polymyxa graminis і Spongospora subterranea, що відносяться до Plasmodiophorales. На сьогодні розрізняють два шляхи передачі фітовірусів за допомогою грибів. В першому випадку вірусні частинки, що знаходяться в ґрунтовій воді, прикріплюються на поверхні зооспори гриба. Частинки прикріплюються по всій поверхні зооспори, хоча існує думка, що вірусні частинки, які знаходяться на поверхні джгутиків, втягуються в цитоплазму зооспори, а потім переносяться з протоплазмою в клітину кореня рослини. Таким шляхом передається, наприклад, вірус некрозу тютюну або вірус некрозу огірка грибом Olpidium. Інший шлях передачі спостерігається, наприклад, у віруса моп-топ картоплі та його переносника гриба Spongospora subterranea. Вірус акумулюється грибом, коли він (вірус) розвивається в рослинних клітинах, а не захоплюється з розчинів. Спори у стані спокою залишаються життєздатними і, можливо, зберігають віруси протягом декількох років, а передача вірусів кореням та бульбам здійснюється дводжгутиковими зооспорами.
На сьогодні відомі дві групи вірусів рослин, що можуть передаватися нематодами. Представники групи Tobravirus мають паличкоподібні частки та розповсюджуються нематодами родини Trichodoridae родів Tricodorus та Paratrichodorus. Ізометричні віруси роду Nepovirus, що належить до родини Comoviridae, передаються нематодами родів Xiphinema чи Longidorus родини Longidoridae. У взаємовідносинах переносників з різними вірусами були відмічені лише незначні відмінності. Непо- і тобравіруси нематоди набувають за період від 15 хв. до 1 год і передають їх здоровим рослинам за той же час, при цьому віруси зберігаються в переносниках протягом кількох діб та розповсюджуються як дорослими особинами, так і личинками. Механізм передачі, мабуть, передбачає зворотній зв'язок вірусних частинок зі специфічними поверхнями в шлунковому каналі нематоди. Частки вірусів, що переносяться Longidorus elongatus, зв'язуються з вистилкою стилетної капсули, тоді як віруси, що передаються видами Xiphinema, адсорбуються на стінці стравоходу. Після стадії линяння віруси не зберігаються в переноснику.
Розділ 3. Найбільш поширені вірусні захворювання серед вищих рослин
3.1 Кількісна характеристика та класифікація вірусів рослин
Віруси заражають як вищі, так і нижчі рослини. Відомостей про вірусні хвороби нижчих рослин ще дуже мало. Проте потреба у широких дослідженнях з цього напряму зростає. Дослідження вірусів водоростей і грибів сприятиме розробці біологічних методів боротьби із заростанням (цвітінням) штучних водоймищ, боротьбі з грибними хворобами рослин тощо.
Поки що переважну більшість вірусних хвороб досліджують на вищих рослинах, в основному на зернових, зернобобових та технічних культурах. Це пояснюється великими втратами, які спричинюють вірусні хвороби цим економічно важливим культурам. Вони не менші, ніж від грибних хвороб. Відомо, наприклад, що втрати картоплі від зараження готикою, смугастою та зморшкуватою мозаїкою сягають 50—80 %.
У літературі описано близько 700 вірусних захворювань рослин. Серед збудників цих хвороб добре вивчено понад 150. В Україні зареєстровано понад 115 вірусів рослин. Тривалий час віруси вважались високо специфічними агентами. Тепер уже відомо, що специфічність їх є досить умовною. Наприклад, у літературі наводяться дані про те, що ВТМ уражає не тільки тютюн та деякі інші пасльонові, а й людину, а вірус гепатиту людини — лободу. Ці факти свідчать про відсутність різкої межі між вірусами рослин і тварин за специфічністю. Це має важливе як теоретичне, так і практичне значення, передусім для пізнання властивостей та природи вірусів.
Вірусні хвороби рослин поділяють на дві великі групи — мозаїки і жовтяниці. Мозаїки — хлоротичноплямисті захворювання рослин; концентрація вірусів у їхньому соці досить висока. Віруси мозаїки репродукуються переважно в паренхімних клітинах, передаються механічним способом і комахами. Жовтяниці — вірусні хвороби з характерною великозональною, а інколи загальною некротизацією листків. Концентрація вірусів у соці незначна, локалізація й репродукція вірусів пов'язана з клітинами флоеми.
Найпоширенішим симптомом вірусних хвороб є зміна забарвлення листків та інших зелених органів рослин. На ураженій тканині листка чергуються темно-зелені, світло-зелені або жовті плями. Часто спостерігається хлороз, некротизація і деформація листків та інших органів. Серед мозаїчних хвороб найкраще вивчені звичайна мозаїка тютюну, мозаїки картоплі, буряків, капусти, томатів, злакових і бобових культур.
3.2 Віруси, які вражають певні види рослин
Вірусні хвороби злакових рослин. Великої шкоди завдають вірусні хвороби злаковим культурам. В Україні відомо їх понад 10, а всього в літературі описано близько 60 вірусних хвороб злаків. Найбільшої шкоди зерновому господарству завдають смугаста мозаїка пшениці, мозаїка озимої пшениці, штрихувата мозаїка ячменю, мозаїка кукурудзи тощо. Щороку вони призводять до значних втрат урожаю, а в окремі роки, коли спостерігаються масові епіфітотії, втрачаються тисячі тонн зерна.
Мозаїки картоплі. Велика кількість вірусів зумовлює захворювання цієї цінної культури. До них належать смугаста мозаїка, складчаста мозаїка, крапчаста мозаїка, жовта аукуба-мозаїка, готика картоплі тощо. Подекуди ці хвороби спричиняють виродження високопродуктивних сортів картоплі.
Серед вірусних хвороб, які завдають великих збитків сільському господарству, слід назвати крапчасту мозаїку (її ще називають звичайною мозаїкою) і готику картоплі. Збудником крапчастої мозаїки є Х-вірус картоплі (ХВК) — Solanum virus I (X) Smith. Віріони ХВК ниткоподібні, розмір їх — 500—550 х 10 нм. Часто хвороба проявляється у вигляді ледь помітної світло-зеленої плямистості листків. Збудник легко передається через сік рослин при сумісному зберіганні пророслих уражених і здорових бульб та іншими шляхами. Х-вірус часто бере участь у комплексних захворюваннях картоплі разом з А-, Y-, М- та S-вірусами, посилюючи характерні для них симптоми. В Україні поширена велика кількість штамів ХВК.
Хворобу під назвою веретеноподібність бульб картоплі спричинюють вірусоподібні агенти, названі віріоїдами. За розмірами вони набагато менші відомих нам вірусів і являють собою невеликі молекули РНК; передаються через грунт і з пилком. Про реплікацію цих цікавих вірусоподібних агентів досі ще мало відомо. Є дані про те, що РНК віріоїду веретеноподібності бульб картоплі в заражених клітинах має кільцеву структуру.
Останнім часом поширилась і завдає значної шкоди картоплярству України готика картоплі. Характерною ознакою цієї хвороби є розміщення листків під більш гострим кутом до стебла, що надає рослинам готичного вигляду. Вірус готики передається при різанні бульб ножем, під час щеплень, через бульби, комахами тощо. Найбільш уражується готикою картопля в Сумській, Чернівецькій, Полтавській та південних областях України. Зниження урожайності від цієї хвороби сягає подекуди понад 60 %.
Жовтяниця цукрових буряків. Збудник цієї хвороби (ВЖБЦ) — Beta virus 4 (Roland et Guonjer, Smith) — вперше виявлено в Україні у 1957 р. При ураженні рослин на листках з'являються жовтуваті або жовтогарячі плями невиразних контурів. Пожовтіння починається з верхньої частини листка. На пожовтілому листку утворюються некротичні плями. Пластинка листка потовщується, іноді стає хвилястою. Віріони ВЖЦБ мають ниткоподібну форму. Розміри їх — 250 х х 10 нм. Віруси зимують у коренеплодах маточних буряків. Основним переносником їх є чорна бурякова та зелена персикова попелиці. При ураженні цукрових буряків жовтяницею рослини відстають у розвитку, коренеплоди виростають меншими за масою, значно нижчої цукристості.
3.3 Віруси, які уражують широке коло рослин господарів
Вірус тютюнової мозаїки (ВТМ) Tobacco mosaic virus (TMV)
Вирус тютюнової мозаїки належить до роду Tobamovirus. За морфологією жорсткі палички 300 нм довжиною та 18 нм діаметром. Мають спіральну симетрію з кроком біля 2,3 нм. Геном представлений однією одноланцюговою молекулою +РНК з мол.м. близько 2 х 106 D. Один поліпептид оболонки, мол.м. близько 17 — 18 х103 D. Ефективні імуногени. Більшість членів групи мають помірне коло господарів. Легко передаються механічно, деякі - насінням.
Основним джерелом первинного ураження рослин ВТМ є післяжнивні рослини та їх залишки (стебла, листя, корені). В полі вірус передається соком хворих рослин під час культивації, пасинкування, вершкування, збирання листя та плодів. ВТМ може також переноситись різними комахами з гризучим апаратом гусінню, кониками, слимаками тощо. Нагромаджується і зимує ВТМ в айстрах, капусті, конваліях, подорожнику, маку, хризантемах і багатьох інших багаторічних рослинах, звідки він може переноситись на однорічні рослини.
Крім мозаїки, ВТМ спричиняє на помідорах стрик, внутрішній некроз плодів, нитковидність, папоротевість листя. За деяких екологічних умов (недостатність освітлення, зниження температури, висока вологість) на помідорах з'являються більш тяжкі ураження, які призводять до відмирання ділянок тканин на стеблах та листі. Стрик поширений як в закритому, так і відкритому грунті. Втрати врожаю від хвороби досягають 40-60%. В умовах надмірного азотного живлення стрик проявляється у найбільш шкідливій формі. В останні роки у південних районах країни поширюється внутрішній некроз помідорів, що знижує врожайність до 8-20%. При ранньому ураженні рослини відстають у рості, втрати врожаю перевищують 30-40%. При більш пізньому ураженні мозаїка може бути різко вираженою, але рослини розвиваються, цвітуть і плодоносять. На стиглому листі тютюну ознаки хвороби можуть зникати, хоча рослина буде інфікована вірусом. Втрати врожаю в цих випадках становлять 10-15%. Стійкий сорт тютюну "Імунний- 580.
Рослини - індикатори: N. tabacum (тютюн звичайний), N. sylvestris — системна реакція, Ch. amaranticolor (лобода), N. glutinosa, Phaseolus vulgaris (квасоля звичайна) сорт Пінто, Datura stramonium (дурман звичайний) — локальні некрози.
Циркуляція ВТМ: взимку — зберігання в ґрунті, воді, багаторічних рослинах (подорожник, мак), рослинних залишках, однорічних бур'янах (лобода, дурман), незбираному гарбузинні, коренеплодах буряків, навесні — механічна передача при обробці ґрунту, неспецифічна механічна передача комахами з гризучим апаратом передача між рослинами. Влітку — період найбільшого розмноження, пов'язаний з температурою, вологістю та збільшенням біомаси рослин (картопля, томати, тютюн, перець), співіснування сільськогосподарських рослин та бур'янів, восени — розповсюдження переважно серед бур'янів
Таблиця 1. Рослини, чутливі до ВТМ.
| Beta vulgaris | Буряк |
| Capsicum frutescens | стручковий перець |
| Cucumu sativus | огірок |
| Cucurbitapepo | гарбуз |
| Lycopersicon esculentum | помідор |
| Phaseolus vulgaris | квасоля |
| Solarium tuberosum | картопля |
| Latuca sativa | салат посівний |
| Ch. hybridum | лобода |
| D. stramonium | дурман звичайний |
| Papever rhoeas | мак дикий |
| Physalis floridana | фізаліс |
| Plantago major | подорожник великий |
Безсимптомні рослини:
| Avena sativa | овес посівий |
| Heliantus animus | соняшник |
| Hordeum vulgare | ячмінь звичайний |
| Pisum sativum - | горох посівний |
| Spinacia oleraceae | шпінат городній |
| Triticum aestivum | пшениця м"яка |
| Zea mays | кукурудза звичайна |
| Daucus carota | морква дика |
| Brassica campestris | капуста польова |
| Capsella bursa-pastoris - | грицики звичайні |
| Diantus barbatus | гвоздика бородата |
| Salvia splendens | шавлія блискуча |
| Solarium nigrum | пасльон чорний |
Вірус огіркової мозаїки (ВОМ) Cucumber mosaic virus (CMV)
Вірус огіркової мозаїки належить до родини Bromoviridae, роду Cucumovirus. Віріони ізометричні, можуть бути різних типів, але усі близько 29 нм в діаметрі. Містять 3 геномні і 1 субгеномну (+) РНК.
РНК-1 і РНК-2 містяться в змішаних частках, тоді як РНК-3 і РНК-4 містяться в одній частці. Віріон вміщує 82% білку. Один структурний білок. Молекулярна маса структурного білку 24000D. ТТІ 55 70 °С. Вірус знаходиться у всіх частинах рослини, в цитоплазмі може утворювати ромбоідальні кристали в цитоплазмі.
Природні господарі та симптоми:
Cucumis sativus (огірок посівний) та інпгі представники Cucurbitaсеа — мозаїка, затримка росту; Lycopersicon exculentum (помідор їстівний) — мозаїка, зменшення листової пластинки, затримка росту; Spinacia oleraceae (шпінат городній) — сильні хлорози і затримка росту. Перелік рослин, чутливих до ВОМ, наведено у таблиці 2.
До кола безсимптомних рослин належать: Latuca sativa — салат посівний, Petunia hybrida — петунія гібридна, Spinacia oleracea — шпінат городній, Stellaria media — зірочник середній.
Діагностичні чутливі рослини та симптоми:
Ch. amaranticolor, Ch. quinoa — хлоротичні локальні ураження; Cucumus sativus — системна мозаїка; Vigna unguilata (вігна) — некротичні локальні ушкодження; Lycopersicon sativus — системна реакція (мозаїка, затримка росту).
Таблиця 2.Рослини, чутливі до ВОМ:
| Brassica campestris | капуста |
| Beta vulgaris | буряк звичайний |
| Capsicum annutnn | перець однорічний |
| Coriandrum sativuin | коріанд посівний |
| Cucumus sativus | огірок посівний |
| Cucurbita maxima | гарбуз городній |
| C. pepo | гарбуз звичайний |
| Citrullus lanatus | кавун звичайний |
| Helianthus annuus | соняшник однорічний |
| Lycopersicon esculentum | помідор їстівний |
| N, rustica | махорка |
| N.tabaccum | тютюн |
| Phaseolis vulgaris | квасоля звичайна |
| Pisum sativus | горох посівний |
| Solarium tuberosum | картопля |
| Amaranthus caudatus | щириця хвостата |
| Apium graveolens | селера пахуча |
| Calendula officinalis | календула лікарська |
| Capsela bursa pastoris | грицики звичайні |
| Chenopodium album | лобода біла |
| Ch. hybridum | лобода гібридна |
| Cirsium arvense | осот польовий |
| Datura stramonium | дурман звичайний |
| Gomphrena globosa | гомфрена головчата |
| Lupinus luteus | люпин жовтий |
| L. albus | люпин білий |
| Sonchus oleracea | жовтий осот городній |
| Senacio vulgaris | жовтозілля звичайне |
| Solanum nigrum | пасльон чорний |
| Trifolium repens | конюшина повзуча |
| T. pratense | конюшина лучна |
| Vigna radiata | вігна промениста |
| Medicago sativa | люцерна посівна |
| Lamiun album | кропива глуха |
| Chelidonium majus | чистотіл великий |
| Vicia sativa | горошок посівний |
| Plantago major | подорожник великий |
Для накопичення вірусу використовують рослини Cucumus sativus, N. glutinosa (тютюн клейкий), N. tabacum.
ВОМ передається переносниками неперсистентно, механічною інокуляцією і насінням (з різним ступенем ефективності).
Життєвий цикл Aphids craccivora (люцернова попелиця).
Космополіт. Двудомний вид, мігрує з люцерни на акацію. Засновниці розвиваються з яєць, що зимують на люцерні, дуже рано (на півдні України кінець березня, квітень). Час появи попелиць визначається температурою весняного періоду. Через 8-12 днів попелиці досягають зрілості і починають розмножуватись, в період першого укусу крилаті особини перелітають на інші бобові, акацію, після травня знову мігрує на бобові. Найбільша чисельність відмічається у травні. У червні, в жаркий період літа, попелиць менше, в популяції переважають німфи і крилатки. Комаха веде себе по-різному, в залежності від кліматичних умов
На вторинному господарі в залежності від умов може розвиватися від 2 до 12 поколінь попелиць. Розвиток личинки в залежності від температури складає 5-6 днів при t 24 °С і 21 день при t 10 °С. Оптимальною для розвитку є температура 24 °С .
Максимальна чисельність попелиць на бур'янах та культурних рослинах спостерігається у липні, потім чисельність знижується, і тільки у вересні-жовтні можна спостерігати збільшення розміру колоній.
Житєвий цикл Acyrthosiphon pisum (горохова попелиця).
Попелиця харчується на таких рослинах, як Pisum (горох), Medicago (люцерна), Melilutus (буркун), Vicia (горошок), Faseolus (квасоля), Trifolium (конюшина), іноді — Capsella bursa pastoris (грицики звичайні). Життєвий цикл однодомний. Існує кілька біотипів виду, що віддають перевагу рослинам різних родів. Одна самка дає 150 личинок. За літо розвивається 10 поколінь безкрилих та крилатих незайманок, останні сприяють швидкому заселенні площ. Восени (в залежності від умов) в кінці серпня або вересні — жовтні, з'являється амфогінне покоління, і після запліднення кожна самка відкладає до 10 яєць на