Свободные аминокислоты нервной системы
У человека высокие концентрации цистатионина обнаружены в мозге и гораздо меньшие - в других тканях. Интересно отметить, что мозг человека содержит значительно более высокие концентрации цистатионина, чем мозг животных. Концентрация цистатионина в мозге человека повышается в процессе развития, а в мозге крысы, напротив, снижается. Биологическая роль цистатионина не выяснена. При некоторых психических заболеваниях, а также при действии нейротоксинов содержание цистатионина в мозге резко возрастает. В то же время у некоторых умственно отсталых больных с врожденными нарушениями обмена серусодержащих аминокислот содержание цистатионина в мозге было чрезвычайно низким.
Генетическая потеря цистатионинсинтазы ведет к болезни - гомоцистинурии, которая сопровождается экскрецией гомоцистеина с мочой, повышением содержания гомоцистеина и метионина в крови и дефицитом цистатионина и цистатионинсинтазы в мозге и печени. Гомоцистинурия является второй по распространенности аминоацидурией после фенилкетонурии с ярко выраженным действием на ЦНС. Одной из характеристик болезни является фиброз и утончение кровеносных сосудов. Терапевтическое средство - снижение в диете метионина и доноров метильных групп - таких, как холин. Для таких больных необходимо включение цистина в диету, так как они не могут образовывать его из метионина. Клиническая картина у детей выражается в эпизодических судорожных припадках, тяжелом физическом и умственном отставании.
Таурин образуется в мозге посредством окисления цистеина до цистеинсульфоновой кислоты, которая декарбоксилируется с образованием гипотаурина с последующим окислением его до таурина. Он обнаружен в высоких концентрациях в нервной системе беспозвоночных и позвоночных животных. Высокие концентрации таурина найдены в мозге эмбрионов, а также в ранний период постэмбрионального развития. Так, у мышей в первые дни жизни концентрация таурина выше, чем концентрация аминокислот глутаминовой группы, в 3 раза, а у взрослых это отношение уменьшается.
Региональное распределение таурина неравномерно. Он содержится в нейронах и в глии, причем большая часть его обнаружена в растворимой фракции. В мозге крыс синаптосомальные фракции полосатого тела, коры мозга и мозжечка содержат наиболее высокое количество таурина. Интересно, что таурин - наиболее распространенная аминокислота сетчатки некоторых видов животных.
Подобно другим короткоцепочечным омега-аминокислотам таурин подавляет нейрональную возбудимость, вызывая гиперполяризацию. Таурин - предполагаемый трансмиттер в коре и стволе мозга. По последним сведениям, он может быть нейротрансмиттером в некоторых районах гиппокампа. Инактивация таурина в мозговых синапсах осуществляется с помощью высокоаффинного обратного захвата. Описан также захват таурина глиальными клетками, что указывает на роль глии в модуляции его синаптической функции.
Таурин связан с регуляцией транспорта кальция в нервной ткани. Многие авторы склонны объяснять высокую концентрацию таурина в мозге именно участием его в контроле уровня Са+. Модуляция таурином внутриклеточной концентрации Са+, в свою очередь, регулирует нейрональную возбудимость. Таурин подавляет захват и освобождение Са+ синаптосомами мозга. Более того, он подавляет связывание Са+ микросомами мозга в условиях, стимулирующих деполяризацию. Хотя молекулярный механизм взаимодействия таурина с кальций-регулирующими системами еще не ясен, приведенные данные свидетельствуют о том, что роль таурина в организме не ограничивается только нейромедиаторной функцией.
Интересен факт обнаружения нейропептидов, содержащих таурин, которые оказывают гормоноподобные эффекты.
Таурин является слабым $-адренергическим агонистом, он активирует К+-стимулированное освобождение норадреналина из коры мозга, не влияя на спонтанное освобождение. Интравентрикулярное введение таурина повышает синтез дофамина и норадреналина во всех изученных районах мозга. Влияние его на двигательную активность и регуляцию температуры животного подтверждает медиацию этих эффектов через катехоламинерги-ческую систему. Таурин оказывает антиконвульсивное действие при эпилепсии, блокирует агрессивные реакции у крыс-киллеров. Однако следует иметь в виду, что содержание таурина в мозге трудно корректировать - он плохо проникает через ГЭБ.
Клинически тауриновый дефицит может выражаться в эпилептических припадках, наследственной атаксии Фридрейха, куриной слепоте и др.
9. Ароматические аминокислоты нервной ткани и их метаболизм
Ароматические аминокислоты - триптофан, фенилаланин и тирозин - важны как предшественники 5-гидрокситрилтамина и катехоламинов, играющих чрезвычайно важную роль в нейрональных процессах.
Триптофан является незаменимой аминокислотой и не синтезируется в мозге высших животных. В мозге триптофан может переаминироваться с использованием щавелевоуксусной кислоты в качестве акцептора аминогруппы, а также декарбоксилироваться. Физиологическое значение первой реакции неизвестно. Наиболее интересный нейрональный путь метаболизма триптофана, которой составляет всего 5% от общего метаболизма триптофана в организме - это образование серотонина и мелатонина.
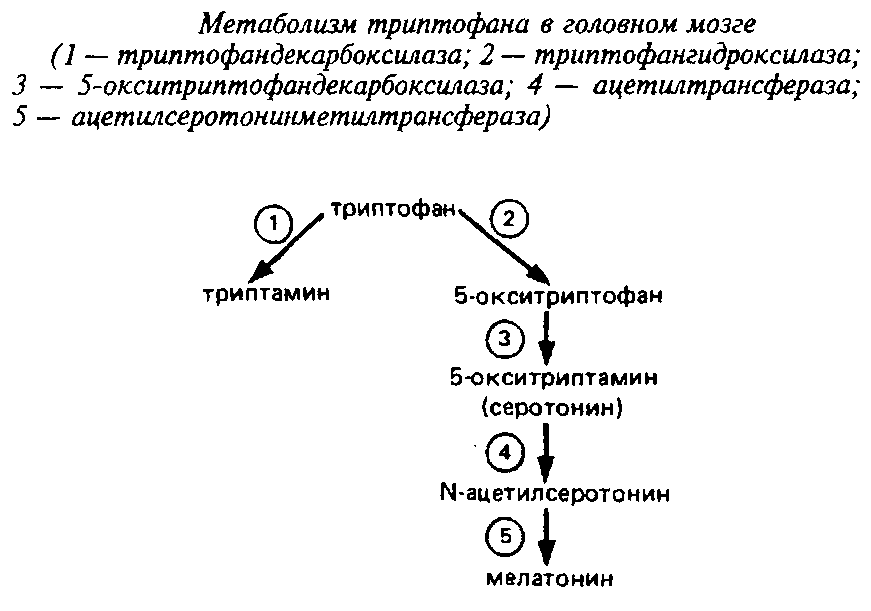
Первая ступень этого процесса - гидроксилирование триптофана в 5-м положении - катализируется триптофан-5-гидро-ксилазой. Энзим требует молекулярного кислорода и тетрагидробиоптерина в качестве кофактора. Этот фермент локализован исключительно в серотонинергических нейронах мозга. Он не полностью насыщен своим субстратом в мозге, Км для триптофангидроксилазы заднего мозга - 50 мкМ, а содержание триптофана там - 30 мкМ. Поэтому даже физиологические вариации уровня триптофана мозга влияют на синтез серотонина, а нагрузки триптофаном изменяют поведенческие реакции животных. Катехоламины являются сильными ингибиторами энзима, что говорит о тесной взаимосвязи между катехольными и индольными путями образования биоаминов.
Вторая ступень катализируется 5-окситриптофандекарбокси-лазой и ведет к образованию серотонина. В эпифизе серотонин при участии специфической ацетилтрансфера-зы ацетилируется с образованием N-ацетилсеротонина; последний подвергается О-метилированию с участием фермента метилтрансферазы, используя в качестве донора метильной группы S аденозилметионин При этом образуется гормон эпифиза мелатонин. Активность двух последних ферментов ответственна за изменение светового - темнового цикла у животных и зависит от циркадного ритма.
На содержание триптофана, а следовательно, и серотонина в мозге оказывает влияние характер используемой пищи; оно возрастает при приеме полноценных белков и богатой углеводами пищи. Углеводы стимулируют освобождение инсулина, который способствует поступлению в мышцы, а следовательно, удалению из циркуляции разветвленных аминокислот - конкурентов ароматических аминокислот за транспортные системы ГЭБ мозга. Таким образом, снижение уровня разветвленных аминокислот в плазме крови приводит к повышению транспорта ароматических аминокислот в мозг. Влияние пищи на поведение людей многие исследователи связывают отчасти с изменением уровня ароматических аминокислот в мозге, а отсюда и уровня биогенных аминов.
Запасы триптофана у животных составляют лишь 2-4% от дневной нормы, поэтому небольшие различия в скорости синтеза и катаболизма белка в зависимости от диеты или гормонального состояния могут вызвать большие изменения в уровне свободного триптофана. В регуляции уровня триптофана, а следовательно, и серотонина в мозге большую роль играет также кинурениновый путь катаболизма триптофана, реализующийся в печени. Этот путь инициируется триптофанпирролазой - печеночным ферментом, который использует главным образом триптофан из пищи и индуцируется как своим субстратом триптофаном, так и глюкокортикоидами. Гормон роста, напротив, предотвращает индукцию триптофанпирролазы триптофаном. Таким образом, триптофанпирролаза печени способствует удалению избытка триптофана из плазмы крови, что, в свою очередь, минимизирует изменение содержания триптофана в мозге.
Фенил аланин также является незаменимой аминокислотой и не синтезируется в мозге высших животных. В мозге происходит трансаминирование и декарбоксилирование фенилаланина. Эти реакции катализируются N-тирозин-2-оксоглутаратаминотранс-феразой и ДОФА-декарбоксилазой.
Главный путь метаболизма фенилаланина в целом организме - его гидроксилирование до тирозина с участием фермента фенилалашш-4-гидроксилазы - не обнаружен в мозге. Другие энзимы, присутствующие в мозге, могут катализировать гидроксилирование лишь небольшой части фенилаланина. Печеночная система гидроксилирования фенилаланина тщательно изучена, так как ее нарушение ведет к самому распространенному и тяжелому заболеванию, связанному с метаболизмом аминокислот, - фенилкетонурии. Система состоит из самой гидроксилазы, неконъюгированного птеридинового кофактора и пиридинсвязанной редуктазы для рециклизирования птеридинового кофактора. Гидроксилаза - сложный железосодержащий белок - является классической монооксигена-зой, требующей молекулярного кислорода в качестве окислителя, и L-эритротетрагидробиоптерина в качестве восстановителя. Второй энзим системы - дегидроптеринредуктаза - катализирует рециклизацию окисленного кофактора, используя НАДФН как источник электронов.
Фенилкетонурия - это следствие генетически обусловленного отсутствия фенилгидроксилазной активности в печени, она проявляется аминоацидурией с нарушениями нервной системы. Уровень фенилаланина в крови таких больных возрастает в несколько сотен раз по сравнению с нормой.
Заболевание сопровождается серьезными неврологическими нарушениями, включая конвульсии, тремор, умственные дефекты, необратимое и глубокое недоразвитие. Большинство больных детей гиперактивны и агрессивны, многие из них являются микроцефалами со слабой пигментацией кожи, волос, глаз. Из биохимических нарушений характерным является генерализованный дефицит миелина, сопровождающийся снижением уровней холестерина, цереброзидов, изменением отношения насыщенных и ненасыщенных жирных кислот.
Стандартная терапия фенилкетонурии - снижение доли фенилаланина в диете.
Тирозин - один из важнейших источников нейромедиаторов - катехоламинов. Превращение тирозина в катехоламины является главным путем метаболизма тирозина в мозге и надпочечниках. Первая ступень, катализируемая тирозин-З-гидроксилазой, лимитирует скорость всего процесса. Энзим является оксидазой со смешанными функциями, требующей кислорода, восстановленного птеридина и Fe+. Под действием фермента тирозин превращается в 3,4-дигидроксифени-лаланин. Активность его подавляется катехоламинами. Естественно, этот энзим служит надежным цитохимическим маркером нейронов, способных синтезировать катехоламины.
Декарбоксилирование ДОФА до дофамина выполняется ДОФА-декарбоксилазой, которая требует в качестве кофактора пиридоксальфосфат. В мозге энзим неспецифичен, действует на широкий спектр ароматических аминокислот, включая 5-гидрокситригттофан.
Дофамин-р-гидроксилаза, необходимая для его превращения в норадреналин, также присутствует в мозге. Показана необходимость молекулярного кислорода и аскорбиновой кислоты для его действия. Энзим содержит ионы меди и стимулируется фумаровой кислотой. Он неспецифичен и катализирует гидроксилирование боковых цепей большого количества р-фенилэтиламинпроизводных; в частности, тирамин является лучшим субстратом для энзима, чем дофамин.
Основной путь деградации тирозина в организме млекопитающих - через р-гидроксифенилпируват, гомогентизиновую кислоту и расщепление кольца - не встречается в головном мозге. В мозге присутствует Ь-тирозин-2-оксоглутаратами-нотрансфераза, которая осуществляет активное переаминирование тирозина в нейрональной ткани. Тирозин мозга является также субстратом для неспецифической декарбокси-лазы ароматических аминокислот.
Хотя известен ряд нарушений во всех путях деградации тирозина, ни один из них не вызывает тяжелых неврологических повреждений.
Гистидин не синтезируется в головном мозге, но он активно транспортируется через гематоэнцефалический барьер. В мозге гистидин может декарбоксилироваться, образуя гистамин - важный нейромедиатор и нейромодулятор. Декарбоксилирование гистидина могут выполнять два энзима. Первый из них - специфическая гистидин-декарбоксилаза, энзим, требующий пиридоксальфосфат в качестве кофактора. Он очень активен в ряде периферических нервов и в симпатических ганглиях. В то же время в головном и спинном мозге активность его мала; К^ для гистидина в нормальных условиях - порядка 410~ М. Фермент индуцируется при стрессе.
Вторым энзимом, который осуществляет декарбоксилирование гистидина, является неспецифическая декарбоксилаза ароматических аминокислот, действующая на ДОФА, 5-гидрокситриптофан, а также на гистидин. Представлено большое количество доказательств, что именно этот энзим является ответственным за декарбоксилирование гистидина в ЦНС.
Разрушение гистамина в целом организме происходит в основном при участии гистаминазы, но этот фермент отсутствует в мозге. Главный путь катаболизма гистамина в мозге - метилирование в 4-м положении с использованием S-аденозилметионина в качестве донора метальной группы при участии специфического энзима гистамин-метилтрансферазы. При подавлении этого энзима уровень гистамина в мозге сильно возрастает. Образованный метилгистамин затем окисляется до соответствующего альдегида и до метилимидазо-луксусной кислоты, которая экскретируется.
Концентрация гистамина в головном и спинном мозге низка, но он присутствует в значительных количествах в некоторых постганглионарных нервах. Его концентрация велика в переднем гипофизе и гипоталамусе. Субклеточно гистамин локализован преимущественно в синаптосомах.
10. Основные аминокислоты
Лизин пока мало исследован в аспекте его значения для нервной системы. Пути деградации лизина в мозге точно не установлены, но они отличаются от локализованных в печени. Лизин в мозге может катаболировать через образование пипеколовой кислоты.
Интересно и важно, что нервная система исключительно чувствительна к нарушению метаболизма лизина в других тканях. Последнее приводит к тяжелым деструктивным и демиелинизационным процессам в ЦНС, сопровождающимся умственной отсталостью.
Аргинин в целом организме ассоциируется прежде всего с процессом синтеза мочевины. Однако в головном мозге не существует полного цикла образования мочевины, хотя некоторые энзимы этого метаболического пути, такие как аргинино-сукцинатсинтетаза, аргининосукдиназа и аргиназа, найдены в этом органе. Центральный фермент цикла - орнитинкарбамоилтрансфераза - не обнаружена в мозге.
Недавно выявлена еще одна важная функция аргинина. Он является источником образования окиси азота - мощного сосудорасширяющего фактора и нейромедиатора. Синтез N0 осуществляется с помощью фермента аргинат-синтазы. Образующийся при этом цитруллин включается в известный цикл образования мочевины.
Генетические дефекты, связанные с метаболизмом аргинина и образованием мочевины вне нервной ткани, сопровождаются неврологическими последствиями. Все эти генетические заболевания, такие как цитруллинемия, аргининосукцинатацидурия, аргининемия, сопровождаются накоплением в плазме крови и в тканях отдельных метаболитов аргинина. Но, вероятно, наиболее серьезным последствием таких метаболических блоков является сопутствующее им повышение концентрации ионов аммония - гипераммониемия, особенно опасная для растущего мозга и часто ведущая к коме. При аргининосукцинатацидурии умственная отсталость может быть очень тяжелой. Это заболевание сопровождается дегенеративными изменениями в белом веществе мозга, дефектами миелинизации и недоразвитием кортикальных слоев.
Метаболизм орнитина - диаминокислоты, являющейся ближайшим родственником аргинина, в нервной ткани открывает еще одну важную функцию аминокислот - они являются предшественниками полиаминов, соединений, которые выполняют пока мало изученный комплекс регуляторных функций.
Выводы
1. Аминокислоты широко используются для синтеза многих белков, пептидов, нейромедиаторов и других биологически важных соединений. Некоторые аминокислоты сами служат нейромедиаторами.
2. Состав пула свободных аминокислот в нормальных физиологических условиях отличается постоянством, отдельные районы мозга имеют свои характерные метаболические пулы.
3. Разнообразные активные транспортные процессы служат для поддержания уровней и распределения метаболитов как в целом органе, так и в отдельных его районах. Многообразие систем транспорта аминокислот ЦНС отражает полифункциональность этих соединений.
4. Пространственная разобщенность отдельных ступеней метаболизма аминокислот создает условия ддя пространственного разобщения энергетического метаболизма и не связанных с энергетикой функций и превращений аминокислот.
5. Головной мозг характеризуется высокой концентрацией аминокислот глутаминовой группы. Глутаминовая кислота, глутамин, ГАМК, аспарагиновая и N-ацетиласпарагиновая кислоты составляют в сумме 75% пула свободных аминокислот мозга.
6. Метаболизм аминокислот глутаминовой группы также чрезвычайно интенсивен. Эти аминокислоты выполняют ряд важных функций в ЦНС: энергетическую, служат для образования и устранения аммиака, выполняют роль нейромедиаторов и нейромодуляторов.
7. Ароматические аминокислоты имеют особое значение как предшественники катехоламинов и серотонина.
8. Нарушения, особенно генетические, в энзиматической системе метаболизма аминокислот часто имеют тяжелые неврологические последствия. Нарушение транспорта аминокислот в других органах часто также сопровождается неврологическими расстройствами.