Механизмы выживания бактерий в окружающей среде
К подщелачиванию среды приводят дезаминирование белков и аминокислот аммонификаторами, разложение мочевины уробактериями, а также фотоассимиляция С02 (так, в часы интенсивного фотосинтеза значение рН воды в фотической зоне водоема может возрастать на 1 — 2 единицы). Стабильное значение рН среды в некоторых местообитаниях связано с ее буферностью. Наибольшие масштабы имеет карбонат/бикарбонатная система, обеспечивающая постоянство рН вод Мирового океана (Заварзин Г.А., 2001).
Все организмы, растущие при экстремальных значениях рН, располагают, механизмами для поддержания внутриклеточного рН на уровне, близком к нормальным физиологическим величинам. Такие кислотолабильные молекулы, как АТР и ДНК, не смогли бы существовать, если бы внутриклеточная концентрация водородных ионов была такой же, как и во внешней среде. Однако по отношению к внутриклеточной среде трудно применить классическую концепцию рН. Согласно этой концепции, рН является применяемым на практике показателем концентрации или активности ионов водорода в водном растворе, между тем как внутриклеточное содержимое представляет собой коллоидный, а не истинный водный раствор. Измерение величины внутриклеточного рН не дает информации относительно недиссоциированных протонов, связанных с донорными молекулами.
Внутриклеточный рН имеет определенную ценность, так как он дает представление об общих условиях, существующих внутри клетки.
В поддержании градиентов рН в клетке важную роль играет как природа клеточной стенки и мембраны, так и клеточный метаболизм.
ЖИЗНЬ МИКРООРГАНИЗМОВ ПРИ ВЫСОКИХ КОНЦЕНТРАЦИЯХ СОЛЕЙ И РАСТВОРЕННЫХ ВЕЩЕСТВ И В УСЛОВИЯХ НЕДОСТАТКА ВОДЫ
В живых клетках вода служит средой, в которой молекулы разных размеров взаимодействуют между собой. Структура воды, в которой находятся растворенные вещества, контролирует все жизненно важные процессы в клетке: действие ферментов и регуляцию их активности, ассоциацию и диссоциацию органелл, структуру мембран и их функционирование. Небольшие изменения в концентрации растворенных веществ и активности воды могут приводить к значительным физиологическим изменениям, поэтому не удивительно, что многоклеточные организмы выработали специальные физиологические механизмы для поддержания постоянного состава не только жидкостей тела, но и внутриклеточной среды. Например, в крови млекопитающих поддерживается равновесие между ионами натрия и калия с помощью сложного гормонального контроля, действующего на уровне почек и основанного на обмене между кровью и тканями.
Однако микробные клетки должны самостоятельно приспосабливаться к внешней водной среде. В качестве «экстремальных условий» можно рассматривать весьма обычные условия, когда клетки растут в растворах, значительно более разбавленных, чем их внутренняя среда, что имеет место у всех пресноводных микроорганизмов. Животные предохраняют от осмотического лизиса клетки своего тела, поддерживая концентрации веществ, растворенных во внеклеточных жидкостях, в соответствии с их концентрациями внутри клеток. Часто их наружный покров совершенно непроницаем для воды. Большинство микроорганизмов покрыто жесткой клеточной стенкой, предотвращающей их лизис в результате высокого осмотического давления, возникающего внутри этих клеток. У простейших, которые имеют более гибкие стенки, проблемы, связанные с высоким осмотическим давлением, решаются другим путем: вода, поступающая в клетки, собирается в сократительные вакуоли, а затем выделяется из них наружу.
Напротив, клетки, растущие при высоких концентрациях растворенных веществ, по-видимому, не способны поддерживать цитоплазму в более разбавленном состоянии. Это было бы возможно только в том случае, если бы клетки были непроницаемы для воды или непрерывно осуществляли активное выделение растворенных веществ. Хотя внутриклеточная среда микроорганизмов по химическому составу сильно отличается от внешней, не известно ни одного вида, который был бы способен поддерживать внутри клеток общую концентрацию растворенных веществ на более низком уровне, чем в окружающей среде (Кашнер Д., 1981).
Известно, что многие внутриклеточные компоненты микроорганизмов нуждаются в высоких концентрациях Na+ и К+. Белки галофилов содержат много аспартата и глутамата, т.е. они более «кислые», в белках устанавливаются новые гидрофобные взаимодействия, приводящие к более плотной упаковке глобул. На поверхности клеток работает механизм «белкового щита» (S-слои), когда наружу экспонируются СООН-группы аминокислот, удерживающие Na+. Эти же группы формируют «гидратированную» оболочку клеток за счет электростатического ориентирования диполей воды. Галофилы осуществляют активный транспорт ионов из клетки, таким образом поддерживая некоторый «осмостаз». Также клетки иногда заменяют Na+ на К+.
Для удержания воды в цитоплазме в условиях высокой солености у галофильных микроорганизмов существуют разнообразные механизмы. Основным механизмом приспособления к осмотическому состоянию среды служит синтез микроорганизмами осмопротекторов (осмолитов, или совместимых растворителей) — низкомолекулярных органических веществ, концентрация которых в цитоплазме уравновешивает внешнее давление (см. табл.1 )
Таблица № 1.
Совместимые растворители (осмолиты)
| Организмы | Совместимый растворитель | Минимальная о„. |
| Бактерии-нефототрофы |
Глицин-бетаин, пролин (у грамположительных), глутамат (у грамотрицательных) |
0,97-0,90 |
| Пресноводные цианобак-терии | Сахароза, трегалоза | 0,98 |
| Цианобактерии соленых озер | Глицин-бетаин | 0,90-0,75 |
| Галофильные аноксиген-ные фотогрофные бактерии Edothiorhodospira | Глицин-бетаин, трегалоза, эктоин | 0,90-0,75 |
| Экстремально-галофильные археи | КС1 (закачивается внутрь с обменом на NaCl) | 0,75 |
Их состав зависит от концентрации NaCl в среде и не одинаков у разных микроорганизмов. К осмопротекторам относятся некоторые аминокислоты и их производные (глутаминовая кислота, пролин), сахара (в частности, трегалоза), гетерогликозиды, полиспирты, глицин-бетаин. При пониженной водной активности организм находится в условиях осмотического стресса, что приводит к уменьшению скорости роста и снижению общего количества образуемой биомассы (Покровский В.И., 1999).
Адаптация к солености у экстремально галофильных архей (порядок Halobacteriales) основана на аккумуляции ионов К+. Внутриклеточная концентрация ионов может быть выше в 1000 раз, чем в окружающей среде, т.е. ферменты галобактерий работают в солевом растворе. Подобная же стратегия обнаружена у некоторых эубактерий — Salinibacter ruber и представителей порядка Haloanaerobiales. Помимо концентрации солей повышенное осмотическое давление и низкая активность воды создаются высоким содержанием органических веществ. Приспособленные к таким условиям организмы называют осмофилами — это спироплазмы, размножающиеся в нектаре цветов, мицелиальные грибы и дрожжи, обитающие в варенье, сиропах, сухофруктах.
Для микроорганизмов, развивающихся на суше, большое значение имеет приспособление к сухости и контакту с воздухом. Условия водного стресса и опасность высыхания создаются на поверхности скал, камней, деревьев, различных сооружений, в почве, особенно почве пустынь. Основными механизмами защиты от высыхания служит образование слизистых капсул или переживающих клеток (спор, конидий, цист). Высокую устойчивость на воздухе обнаруживают многие микобактерии с высоким содержанием липидов в клеточной стенке. Типичными компонентами микроценозов, развивающихся на поверхности камня и в почве, являются микрококки, артробактеры, нокардии, проактиномицеты и актиномицеты. В целом грамположительные бактерии актиномицетной линии рассматривают как континентальную ветвь эволюции прокариот, приспособившуюся к жизни в наземных условиях (Бухарин О.В., 2005).
Жизнеспособность бактерий в условиях недостатка воды определяется многими факторами — температурой, реакцией среды, составом солевого раствора и т. п. Причем бактерии с мелкими клетками устойчивее, чем с крупными; кокки устойчивее палочек; грамположительные бактерии устойчивее к высушиванию, чем грамотрицательные и тем более микоплазмы. Высокой устойчивостью к высушиванию обладают микобактерии, клеточные стенки которых содержат большое количество липидов. Споры не только бактерий, но и других микроорганизмов хорошо переносят высушивание.
В условиях недостатка воды некоторые микроорганизмы обволакиваются гидрофильными слизистыми капсулами, которые активно поглощают влагу. Бактерии, обитающие на корнях пустынных растений, выделяют такие значительные количества гигроскопической слизи, что обеспечивают водой не только самих себя, но и растения.
Существует предположение о том, что при недостатке воды бактерии используют метаболическую воду, образующуюся в клетке в результате окисления органического вещества кислородом воздуха. Так, из 1 кг глюкозы микроорганизм может получить около 600 г воды по уравнению
С6Н1206 + 602 = 6С02 + 6Н20
Устойчивость к обезвоживанию у разных бактерий неодинакова. Например, численность жизнеспособных клеток Pseudomonas, внесенных в воздушно-сухую почву после выдерживания в течение месяца, снижается в 100 раз. В то же время Azotobacter остается жизнеспособным в почве даже через десятки лет ее хранения в воздушно-сухом состоянии Выживаемость азотобактера обусловлена его цистами. Интересны исследования, показавшие, что водный стресс приводит к возрастанию содержания актиномицетов среди других микроорганизмов, обнаруживаемых в почве. Это связано с большей выживаемостью актиномицетов в почве по сравнению с грибами и бактериями. Следовательно, выживаемость микроорганизма в сухой почве существенно возрастает, если он способен формировать те или иные устойчивые формы. Так, вегетативные клетки Pseudomonas довольно чувствительны к водному стрессу, в то время как цисты азотобактера и споры актиномицетов проявляют значительную устойчивость к нему (Покровский В.И., 1999).
Выживаемость актиномицетов. Водный стресс приводит к возрастанию процентного содержания актиномицетов среди всех жизнеспособных микроорганизмов, обнаруживаемых в природных почвенных пробах. Это обусловлено большей выживаемостью актиномицетов в почве по сравнению с грибами и истинными бактериями. Устойчивость актиномицетов к обезвоживанию обусловлена устойчивостью спор.
Таким образом, ясно, что выживаемость бактерий в почве значительно возрастает, если данный организм образует какие-либо устойчивые формы. Вегетативные клетки псевдомонаса обладают чрезвычайно высокой чувствительностью к обезвоживанию, в то время как цисты азотобактера и споры актиномицетов (Streptomyces) значительно более устойчивы.
Arthrobacter не имеет явно выраженной покоящейся или защитной формы в цикле развития. Здесь играет определенную роль переход из палочковидной в шарообразную форму и обратно, который претерпевает Arthrobacter. Шарообразная форма клеток обладает большей устойчивостью к обезвоживанию, чем палочковидная (Кашнер Д., 1981).
РЕАКЦИИ МИКРООРГАНИЗМОВ НА ТЯЖЕЛЫЕ МЕТАЛЛЫ И ТОКСИЧНЫЕ ВЕЩЕСТВА В ОКРУЖАЮЩЕЙ СРЕДЕ
Среди микроорганизмов есть формы, устойчивые к действию общих клеточных и метаболических ядовитых веществ (фенол, окись углерода, сероводород и др.), отдельные виды обладают способностью использовать эти соединения в качестве источников питания. Считают, что устойчивость микроорганизмов к токсичным веществам во многих случаях определяется плазмидами.
В выработке устойчивости бактерий к токсичным веществам участвуют трансмиссивные плазмиды, несущие гены множественной устойчивости — R-факторы (от англ. resistance — устойчивость). R - факторы обусловливают устойчивость микроорганизмов к нескольким (девять и более) группам веществ — солям тяжелых металлов, а также антибиотикам, лекарственным веществам, и др. Гены, которые определяют устойчивость бактерий, могут находиться в транспозонах, способных перемещаться в разные участки хромосомы и на плазмиды. Распространению множественной устойчивости бактерий способствует комбинация трансмиссивной плазмиды с транспозоном.
Влияние на микроорганизмы токсичных веществ в небольших концентрациях, не вызывающих их гибели, рассматривают как один из вариантов стрессовых (от англ. stress — напряжение) воздействий. В таких условиях включаются специальные механизмы клеточного метаболизма, которые обеспечивают выживание бактерий (Бухарин О.В., 2005).
Микроорганизмы по-разному реагируют на тяжелые металлы в зависимости от вида микроорганизма и концентрации тяжелых металлов в среде. Это справедливо также для мышьяка и сурьмы. Всем микробам в качестве компонентов питания необходимы те или иные тяжелые металлы, такие, как Со, Си, Fe, Мп и Zn. Некоторые микроорганизмы нуждаются также в Мо, V и Ni. Все эти металлы участвуют в основном в ферментативном катализе и должны присутствовать в питательной среде лишь в очень низких концентрациях, обычно порядка нескольких микрограммов на один литр. Ряд микроорганизмов способен осуществлять активный транспорт некоторых из этих элементов внутрь клетки. Существуют бактерии и грибы, которые вырабатывают специальные хелатобразующие вещества, облегчающие проникновение железа в клетку при нейтральных значениях рН. Это проникновение происходит в результате активного транспорта хелатного железа и распада хелата после его переноса через плазматическую мембрану. Даже токсичный ион арсената может проникнуть в клетку путем активного транспорта, как в случае Saccharomyces cerevisiae.
Любой из металлов, а также мышьяк или сурьма в достаточно высоких концентрациях становятся токсичными для микроорганизмов. Проявления этой токсичности могут быть различными, например изменение морфологии клеток или клеточного метаболизма, бактериостаз или гибель клеток. В некоторых случаях возникают более толерантные к тяжелому металлу, мышьяку или сурьме резистентные штаммы, т. е. такие, для воздействия на которые необходима более высокая концентрация токсичного вещества, чем для воздействия на родительские штаммы. Обычно эта резистентность обусловлена генетическими модификациями, часто связанными с плазмидами, а иногда — с половым фактором или с хромосомами. Причиной повышенной резистентности может быть уменьшение проницаемости клетки для токсичного вещества или его биохимическое обезвреживание. Показано, что исключительная резистентность Scytalidium к меди (выдерживает концентрацию CuS04 до 1 М) обусловлена кислой реакцией среды (рН от 2,0 до 0,3) и неспособностью ионов меди проникать в клетки при таких значениях рН, поскольку при реакции среды, близкой к нейтральной, гриб становится чувствительным к 4 • 10-5 М CuSO4. Одни микробы обезвреживают тяжелые металлы, мышьяк или сурьму, вырабатывая вещества, реагирующие с указанными элементами внутри клетки (например, при метилировании ртути или мышьяка) или вне ее, т. е. делают их недоступными для ассимиляции микробом (например, осаждение арсената или арсенита ионами железа в процессе окисления арсенопирита при участии Thiobacillus ferrooxidans). Другие микроорганизмы нейтрализуют токсичные соединения, превращая их ферментативным путем в менее вредные (примером может служить восстановление HgCl2 до HgO. Физиологическое состояние организма также определяет его чувствительность к интоксикации тяжелыми металлами, мышьяком или сурьмой.
Механизм токсического действия тяжелых металлов, мышьяка и сурьмы зависит от природы соединения и рассматриваемого организма. Одни элементы, такие, как Си, связываются в основном с клеточной поверхностью, где и локализуются вызываемые ими повреждения. Другие элементы, например Hg, проникают внутрь клетки, где связываются с определенными функциональными группами, в частности с SH-группами, инактивируя таким образом жизненно необходимые молекулы, такие, как молекулы ферментов, или откладываются в металлической форме. Существуют также дополнительные механизмы токсического действия тяжелых металлов, мышьяка и сурьмы, обусловленные тем, что последние могут: 1) играть роль антиметаболитов; 2) образовывать стабильные осадки или хелаты с важными метаболитами или катализировать распад таких метаболитов, в результате чего они становятся недоступными для клетки; 3) замещать структурно или электрохимически важные элементы, что приводит к нарушению ферментативной или клеточной функции.
Одни микробы окисляют восстановленные формы тяжелых металлов и соединений мышьяка или сурьмы, в то время как другие восстанавливают окисленные формы этих элементов в больших масштабах. При окислении восстановленных соединений металлов по крайней мере некоторые микроорганизмы могут извлекать полезную энергию и восстанавливающую способность. При восстановлении окисленных соединений металлов ряд микробов осуществляет процесс, который является, по-видимому, своеобразной формой дыхания, характеризующейся тем, что окисленные соединения металлов, мышьяка или сурьмы служат частично или исключительно в качестве конечных акцепторов электронов. Такие реакции окисления и восстановления могут иметь фундаментальное значение в перераспределении этих элементов в среде.
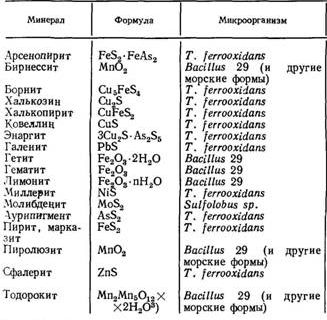
В табл. 2 перечислены минералы, многие из которых ассоциированы с рудами, подвергающиеся воздействию микроорганизмов.
Таблица № 2.
Некоторые природные минералы, содержащие металлы и подвергающиеся воздействию микроорганизмов
Микробы способны концентрировать тяжелые металлы внутри клеток или на их поверхности. Известны следующие соотношения концентраций различных металлов, содержащихся в морской воде и планктоне: кадмий—1:910, кобальт—1:4600, медь—1:7000, железо — 1 : 87 000, свинец — 1:41 000, марганец — 1 : 9400, титан— 1:20 000 и цинк—1:65 000. В общем конечная концентрация металла внутри клетки может быть на несколько порядков выше его концентрации в окружающей среде. В одних случаях накопление соответствующих соединений оказывается летальным, а в других — нет. На поглощение ионов металлов могут оказывать влияние физиологическое состояние клеток и условия окружающей среды.
Более устойчивы к действию химических веществ из неспорообразующих шаровидные формы. Палочковидные и извитые формы микробов при прочих равных условиях быстрее погибают.
Споры почти не содержат свободной воды, имеют плотную двойную оболочку, поэтому отличаются более высокой устойчивостью к действию химических веществ. Таким образом, действие химических веществ зависит от состава, концентрации, экспозиции, температуры и других факторов (Асонов Н.Р., 1997).
Кислые сточные воды шахт представляют собой пример условий окружающей среды с исключительно высокими концентрациями тяжелых металлов, а также, возможно, мышьяка и сурьмы, токсичными для многих микроорганизмов. Тем не менее, в этих сточных водах была обнаружена смешанная микрофлора, состоящая из водорослей, грибов, простейших и бактерий, которая, по-видимому, специфически адаптировалась к таким условиям.
Изложенное выше показывает, что у некоторых микроорганизмов выработались специфические механизмы взаимодействия с тяжелыми металлами, мышьяком и сурьмой, присутствующими в окружающей среде, иногда в концентрациях, которые токсичны для многих других микробов и высших форм жизни. Микроорганизмы могут использовать эти вещества в качестве источников энергии или акцепторов электронов в процессе дыхания. В ряде случаев у микробов выработались способы удаления этих веществ из среды путем их осаждения, адсорбции или улетучивания. Эти реакции вносят вклад в детоксикацию среды, которая становится более пригодной ие только для микробов, катализирующих такие реакции, но и для других организмов, неспособных развиваться без подобной «помощи» (Кашнер Д., 1981).
ЖИЗНЬ МИКРООРГАНИЗМОВ В УСЛОВИЯХ ИНТЕНСИВНОГО ОБЛУЧЕНИЯ
Стимулом для исследования реакции микроорганизмов на облучение послужило стремление решить проблемы, связанные с опасностью радиации для человечества. Хорошо известно, что излучения разных типов обладают потенциальной способностью оказывать на живые организмы разрушительное воздействие.
Однако, если не говорить о высоких дозах, излучения во внешней среде носят такой характер, что для любой клетки существует определенная вероятность избежать повреждения. Исходя из этого, можно было бы предположить, что одноклеточным организмам удается выйти из опасного положения благодаря тому, что они очень быстро размножаются. Тем не менее это, по-видимому, не так, поскольку у них выработались дополнительные средства защиты от летального или повреждающего воздействия облучения. Одноклеточные организмы располагают множеством защитных механизмов, причем многие виды используют не один, а большее число способов борьбы с радиационными повреждениями.
Клеточные механизмы защиты от повреждающего действия радиации настолько широко распространены у микроорганизмов, что трудно оценить опасность, которую представляет для них этот фактор среды. Только тогда, когда защитные механизмы почему-либо не действуют, становятся очевидными реальные размеры опасности, исходящей в основном от коротковолновой части солнечного спектра. Не удивительно поэтому, что начало выяснению природы радиорезистентности было в значительной мере положено обнаружением радиационно-чувствительных мутантов. Такие мутанты не только позволили выявить опасность радиации, но и послужили средствами для исследования механизмов, сдерживающих эту опасность.
Инактивация клеток, вызываемая облучением в относительно низких дозах, обусловлена главным образом повреждением ДНК. Это заключение подтверждается тем, что у прокариот большинство изученных радиационно-чувствительных мутантов дефектны по функциям, имеющим отношение к ДНК. Кроме того, исследование таких мутантов показало, что резистентность обычно достигается не в результате защиты ДНК от индукции повреждении, а скорее благодаря действию механизмов, репарирующих ДНК после того, как повреждения возникли.
Адаптация микроорганизмов к высоким дозам излучений основана на механизмах, участвующих в исправлении повреждений, вызываемых облучением. Известны три независимые системы репарации повреждений ДНК, индуцируемых облучением. Одна из них представляет собой обратную фотохимическую реакцию, происходящую под действием видимого света и фотореактивирующего фермента; вторая — вырезание и замещение поврежденного участка ДНК до ее репликации, а третья — пострепликативную репарацию. Первый из упомянутых механизмов действует только на пиримидиновые димеры, индуцируемые ионизирующим излучением. Многие организмы для защиты от неблагоприятного воздействия радиации используют все три системы. Несмотря на то, что репаративные механизмы имеются у всех исследованных в этом отношении микроорганизмов, последние различаются по своей способности переносить облучение. Самый яркий пример такой вариабельности — исключительно высокая резистентность М. radiodurans и родственных ему видов.
Парадоксально, но одно из последствий облучения — возникновение мутаций — может дать организму преимущество при отборе. Поэтому есть основания предполагать, что с эволюционной точки зрения для организма выгодно установление некоторого равновесия между резистентностью и чувствительностью к радиации; возможно, именно по этой причине защита никогда или почти никогда не бывает полной. Следует ожидать, что соотношение между чувствительностью и резистентностью к облучению неодинаково у разных организмов; и действительно, среди различных видов наблюдается исключительное разнообразие по степени их резистентности к летальному и мутагенному действию облучения. Такое разнообразие создает большие возможности для исследования явлений резистентности и чувствительности организмов к радиации.
Клеточные механизмы, обеспечивающие радиорезистентность, можно разделить на две большие группы. К первой относятся системы, предотвращающие возникновение повреждений в клетке. Вторая включает механизмы, которые восстанавливают (репарируют) повреждения в ДНК, индуцируемые облучением. В настоящем обзоре будут рассмотрены оба аспекта радиорезистентности, но второму из них — репарации — в настоящее время уделяется значительно больше внимания и соответственно он будет обсуждаться здесь более детально. Исследования в этой области были стимулированы одним удивительным открытием: выяснилось, что по крайней мере некоторые из путей репарации более или менее независимы от основных процессов клеточного метаболизма. Поэтому оказалось возможным выделить дефектные штаммы, у которых нарушена система репарации индуцируемых облучением повреждений, но которые тем не менее остаются жизнеспособными. Такие мутанты чувствительны к облучению и в качестве генетических инструментов оказываются исключительно полезными в исследовании клеточных механизмов репарации. Работы в этой области существенно углубили понимание природы радиорезистентности.
Диапазон доз облучения, которому микроорганизмы могут подвергаться эпизодически или постоянно, значительно расширился в последние годы в связи с созданием искусственных источников радиации. В результате этого микроорганизмы стали испытывать воздействие повышенного уровня радиации в окружающей среде. Реакция на такое воздействие представляет как практический, так и научный интерес. Например, при использовании высоких доз облучения для стерилизации пищи возникает проблема, связанная с возможностью индукции или селекции радиорезистентных микроорганизмов, что может иметь неблагоприятные последствия.
Излучение в окружающей среде подразделяется на ионизирующее и неионизирующее. Оба вида опасны для микроорганизмов, но из всех естественных излучений неионизирующая солнечная радиация обладает наибольшим потенциалом биологически вредного воздействия.
Одним из наиболее резистентных к ультрафиолетовому излучению микроорганизмов является Bodo marina, относящийся к морским жгутиковым.
Для инактивации 90% клеток этого организма требуется доза 112 000 эрг-мм-2. Отмечено, что простейшие вообще более резистентны к облучению, чем бактерии (дозы, инактивирующие 90% клеток, колеблются от 5000 до 12 000 эрг-мм-2 для простейших и от 4 до 250 эрг-мм-2 для бактерий). Резистентность разных видов бактерий варьирует в очень широких пределах (Камшилов М.М., 1974).
В отношении резистентности организмов к ионизирующему излучению наблюдается сходная картина. Так, дозы, убивающие 50% клеток в культурах Е. coli, дрожжей, амебы, В. mesentericus и инфузорий возрастают от 5600 до 350 000 Р.
Имеется корреляция между резистентностью организма и уровнем радиации в среде его обитания. Так, микроорганизмы, выделенные из радиоактивных минеральных источников, в 3— 10 раз более резистентны к радиации, чем организмы тех же видов, выделенные из нерадиоактивной воды.
Обнаружен вид Pseadomonas, обитающий в ядерных реакторах, где средняя доза излучения, по-видимому, превышает 106 ФЭР (физический эквивалент рентгена).
В связи с такими случаями явной адаптации микроорганизмов к радиоактивному излучению был поднят вопрос о том, насколько вероятно появление радиорезистентных организмов при использовании облучения для стерилизации. Действительно, Micrococcus radiodurans, обладающий наиболее высокой радиорезистентностью из всех изученных бактерий, был первоначально обнаружен в консервированном мясе, которое подвергалось Y-облучению в дозе несколько мрад. Этот организм может переносить дозы облучения до 500 крад без какой-либо заметной инактивации (Кашнер Д., 1981).
Более устойчивы к излучению грамположительные микробы и менее устойчивы грамотрицательные. Повышенная устойчивость к излучениям отмечена у клостридий ботулизма: они погибают только после воздействия на них дозами в 25—40 кГр. Для достижения стерильности в некоторых случаях необходимо излучение в 50 кГр. Устойчивы к излучению и риккетсии; их устойчивость примерно такая же, как и у спор бацилл.
Некоторые микробы (возбудитель сибирской язвы, кишечная палочка и др.) приобретают устойчивость к излучениям. После нескольких облучений она у них повышается в два или более раза (Асонов Н.Р., 1997).
6.1 Защитные механизмы
Одним из универсальных механизмов адаптации к световому излучению высокой интенсивности и защиты от токсичных форм фотосенсибилизированного кислорода является синтез каротиноидных пигментов. Характерным примером может служить яркая окраска микроорганизмов, живущих в условиях высокой освещенности (в воздухе, на поверхности скал, обнажений горных пород, в высокогорье и т.д.) (Заварзин Г.А., 2001).
Ранние исследования радиационной резистентности были направлены в первую очередь на поиски внутриклеточных веществ, защищающих организм от повреждений. В настоящее время внимание исследователей концентрируется в основном на механизмах, тем или иным способом исправляющих повреждения в ДНК, индуцируемые облучением. Эти механизмы имеют важное значение. Тем не менее представляется вероятным, что определенную вспомогательную роль играют и защитные механизмы.
Для радиорезистентных организмов обычно характерна усиленная пигментация, что чаще всего является причиной резистентности. Пигменты действуют как «энергетические ловушки», препятствующие радиации или ее продуктам достигать ДНК или любых других жизненно важных мишеней.
Резистентность может быть обусловлена также присутствием определенных продуктов метаболизма (внутриклеточных радиопротекторов). Так, Е. coli более резистентна при облучении в присутствии экстрактов из М. radiodurans, чем при облучении в буферном растворе. Защитное действие экстрактов из М. rаdiodurans связано с уменьшением выхода радикалов при участии механизма, аналогичного тому, который действует в отношении известных химических веществ-протекторов.
Своеобразный метаболизм серосодержащих аминокислот у М. radiodurans позволяет думать, что эти аминокислоты выполняют роль сульфгидрильных веществ-протекторов. Зависимость радиорезистентности от концентрации экстракта имеет двухкомпонентный характер: в низких концентрациях он оказывает на тест-организм сенсибилизирующее действие, а в высоких концентрациях — защитное.
Радиорезистентность может определяться уровнем каталазной активности в. клетке. Было показано, что для некоторых бактерий с повышенной радиорезистентностью характерно высокое содержание каталазы.
С возрастанием радиорезистентности увеличивается длина клеток: значительная часть клеток наиболее резистентных штаммов была в 30—40 раз длиннее нормальных. У клеток этих штаммов наблюдалось также своеобразное явление почкования. У резистентных штаммов, упомянутых выше, удлинение клеток было устойчивым признаком, наблюдавшимся в течение трех лет.
К важным факторам, от которых зависит реакция той или иной клеточной системы на любой физический или химический агент, относится состав клеточной стенки. В случае химических мутагенов структура клеточной стенки может определять ее проницаемость, влияя, таким образом, на чувствительность клетки к данному агенту. Хотя структура клеточной стенки не оказывает влияния на проникающую способность ионизирующего излучения, она тем не менее может иметь значение для радиорезистентности микроба. Например, вполне вероятно, что какой-либо связанный с мембраной ферментный комплекс, освобождающийся или активируемый под действием радиации, играет определенную роль в системе (системах) репарации или обусловливает конечную инактивацию клетки. Ионизирующее излучение вызывает освобождение связанной с клеточной поверхностью экзонуклеазы у М. radiodurans. При облучении в дозе 400 крад, сублетальной для этого организма, в клетках остается только 10% фермента, причем степень освобождения фермента зависит от дозы облучения.
Микробы-сапрофиты более устойчивы у световому излучению в сравнении с патогенными. Это объясняется тем, что они чаще подвергаются действию прямых солнечных лучей, поэтому являются более адаптированными (Радчук Н.А., Дунаев Г.В., 1991).
Увеличение содержания ДНК в клетке служит одним из факторов ее радиорезистентности. Это может быть обусловлено либо увеличением числа нуклеоидов в клетке, либо ее полиплоидностью. Нитевидная форма резистентных клеток Е. coli позволяет предполагать, что в них реализуется первый механизм. Но содержание ДНК в клетках этих штаммов практически не отличается от такового в клетках дикого типа.
Определение содержания GC-nap в ДНК восьми видов бактерий показало, что существует обратная зависимость между GC-содержанием и резистентностью клеток к рентгеновским лучам. В то же время между GC-содержанием и резистентностью к УФ-облучению наблюдается прямая зависимость. Такая корреляция утрачивает какой бы то ни было смысл в случае М. radiodurans, резистентного к обоим типам излучения; однако она может иметь некоторое значение при отсутствии у бактерий эффективных систем репарации. Действительно, ДНК М. radiodurans характеризуется тем же нуклеотидным составом, что и ДНК штаммов Pseudomonas, исключительно чувствительных к ионизирующей радиации (Покровский В.И., 1999).
6.1.1 Механизмы репарации ДНК
В основе радиорезистентности бактерий лежат разнообразные внутриклеточные процессы, участвующие в репарации поврежденной ДНК. Большую ценность для исследования этих процессов представляет наличие хорошо охарактеризованных мутантных штаммов, радиационная чувствительность которых варьирует в чрезвычайно широких пределах.
При помощи генетических скрещиваний были получены двойные и тройные мутанты дрожжей, у которых репаративная активность полностью отсутствует. Сравнительное исследование штамма дикого типа и сверхчувствительных двойных и тройных мутантов S. сеrevisiae показало, что если нормальный штамм довольно легко переносит образование в ДНК почти 16 000 димеров (37% выживания), то двойные и тройные мутанты остаются резистентными в присутствии не более 50 и 1 димера соответственно. Пониженная резистентность таких двойных и тройных мутантов служит убедительным свидетельством в пользу существования различных путей репарации радиационных повреждений.
В зависимости от того, участвует ли видимый свет в модификации повреждений ДНК, репарацию можно подразделить на световую и темновую. Конкретно под световой репарацией понимается феномен фотореактивации, впервые описанный у актиномицетов. Механизм фотореактивации действует только на пиримидиновые димеры. В этом процессе участвует фермент фотореактивации, который связывается с димерами. Образующийся фермент-субстратный комплекс активируется видимым светом, что приводит к мономеризации димеров in situ. Таким образом, летальный эффект УФ-облучения существенно снижается, если облученные клетки подвергаются затем воздействию видимого света с длинами волн от 360 до 420 нм (см. рис. 6.1).

Рис. 6.1 Световая репарация ДНК
Фотореактивация служит мощным инструментом исследования летальных и мутационных повреждений, так как их репарация под влиянием света может быть использована в качестве критерия для решения вопроса о том, обусловлена ли инактивация ДНК образованием пиримидиновых димеров.
К другому типу реактивации клеток видимым светом относится его защитное действие. В этом случае увеличение выживаемости клеток наблюдается при освещении их видимым светом перед УФ-облучением. Этот феномен объясняют тем, что видимый свет индуцирует задержку клеточного деления.