Изучение токсического влияния кадмия на активность аминотрансфераз у потомства белых крыс
Таким образом, реакции переаминирования являются обратимыми и универсальными для всех живых организмов. Пиридоксальфосфат в этих реакциях выполняет роль переносчика аминогруппы и в конечной стадии освобождается и может вновь вступить в ферментативный процесс.
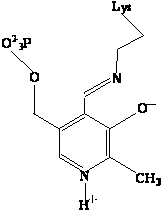
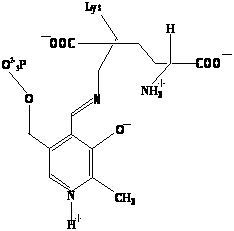
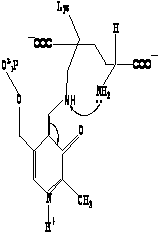
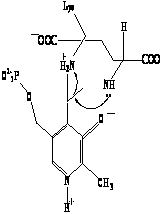
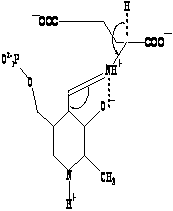
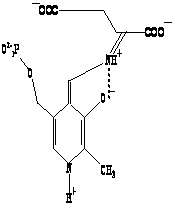
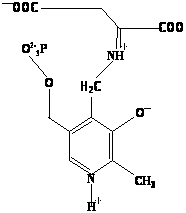
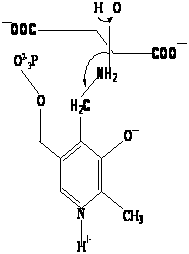
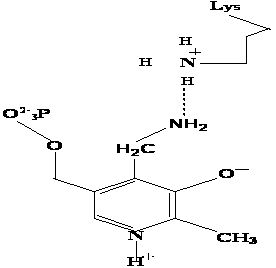
Рисунок 2 - Основные интермедиаты, образующиеся в ходе реакции переаминирования.
а – внутренний альдимин;
б – нековалентный комплекс Михаэлиса;
в – то же, что σ, но атом иминного азота протонирован;
г– геминальный диамин;
д– внешний альдимии;
е - хинолоид;
ж – кетимин;
з – карбиноламин;
и- пиридоксаминфосфат.





1.2.4 Биологическая роль трансаминаз
Аминокислоты, не использованные для синтеза белков и других производных, не накапливаются в организме в больших количествах. Они подвергаются различным ферментативным превращениям и, в конечном счете, распаду /32/. Важную роль в азотистом обмене играют процессы перехода одних аминокислот на другие, в результате ферментативных реакций переаминирования. При этом происходит обратимый перенос NH2 – группы от L – аминокислоты на L – кетокислоту без промежуточного образования аммиака. Таким образом, в реакции переаминирования участвуют L – аминокислота как донор и L – кетокислота как акцептор аминогруппы. Эти реакции катализируются особыми ферментами трансаминазами. Коферментом трансаминаз является пиридоксаль – 5׳ – фосфат, который и является промежуточным переносчиком аминогруппы от аминокислоты на кетокислоту/27/.
Широкое распространение трансаминаз в животных тканях, у микроорганизмов и растений, их высокая резистентность к физическим, химическим и биологическим факторам, абсолютная стереохимическая специфичность по отношению к L - и Д – аминокислотам, высокая каталитическая активность в процессах переаминирования послужили предметом детального исследования роли этих ферментов в обмене аминокислот/33/. Тип катализируемой химической реакции в сочетании с названием субстрата служит основой для систематического наименования ферментов. Согласно Международной классификации трансаминазы относят к 2 классу трансфераз, 4 подклассу – аминотрансферазы; наименование их составляется по форме «донор – транспортируемая группа – трансфераза» /34/. А. Е. Браунштейн выдвинул гипотезу о возможности существования в живых тканях не прямого пути дезаминирования аминокислот через реакции переаминирования, названного им трансдезаминированием. Основой для этой гипотезы послужили данные о том, что из всех природных аминокислот в животных тканях с высокой скоростью дезаминируются только L – глутаминовая кислота. Согласно этой теории большинство природных аминокислот сначала реагируют с L – кетоглутаровой кислотой в реакции переаминирования с образованием глутаминовой кислоты к соответствующей кетокислоте/30/. Образовавшаяся глутаминовая кислота подвергается окислительному дезаминированию под действием глутаматдегидрогеназы. Механизм трансдезаминирования можно представить в виде следующей схемы /13/:
 R1-
CH
(NH2)-COOH
L-кетоглутарат
НАДН2
+ NH3
 R1-
CO-
COOH
L-глутамат
НАД + Н2О
трансаминаза глутаматдегидрогеназа
Обе реакции (переаминирование и дезаминирование глутаминовой кислоты) являются обратимыми, создаются условия для синтеза любой аминокислоты, если в организме имеются соответствующие L – кетокислоты. Организм животных и человека не обладает способностью синтеза углеводородного скелета (L - кетокислот) так называемых незаменимых аминокислот, этой способностью обладают только растения и многие микроорганизмы.
В живых организмах осуществляется синтез природных аминокислот из L – кетокислот и аммиака, этот процесс был назван А. Е. Браунштейном трансреаминированием. Сущность его сводится к восстановительному аминированию L – кетоглутаровой кислоты, с образованием глутаминовой кислоты, и к последующему переаминированию глутамата с любой L – кетокислотой. В результате образуется L – аминокислота, соответствующая исходной кетокислоте, и вновь освобождается L – кетоглутаровая кислота, которая может акцептировать новую молекулу аммиака/35/.Схематически роль трансаминаз в дезаминировании в биосинтезе аминокислот можно представить в следующем виде/28/:
 L-Аминокислота
Пиридоксальфосфат
L-Глутамат
НАД


 R1-CH(NH2)-COOH
O=CH-ПФ
HOOC-(CH2)2-CH(NH2)-COOH
НАДФ


 Трансаминаза
НАДФН2
R1-C-COOH
H2N-CH2-ПФ
HOOC-(CH2)2-C(NH)-COOH
НАДН2
L-кетокислота Иминоглутарат
 Пиридоксаминфосфат
Н2О
HOOC-(CH2)-C-COOH
L-кетоглутарат
NH3
Схема показывает, что трансаминаза катализирует опосредованно через глутаматдегидрогеназу как дезаминирование природных аминокислот (стрелки вниз), так и биосинтез аминокислот (стрелки вверх).
Путем переаминирования большинство аминокислот может превращаться одна в другую или заменяться соответствующей кетокислотой. Поэтому реакции переаминирования - один из важнейших процессов при биосинтезе заменимых аминокислот. Особенно легко переаминируются глутаминовая и аспарагиновая кислоты, так как соответствующие им трансаминазы имеют очень высокую активность. Кетокислоты, получаемые из этих аминокислот (L – кетоглутаровая и щавелевоуксусная кислоты), осуществляют связь углеродного и белкового обмена /36/.
Таким образом, трансаминазы играют важную роль в азотистом обмене, участвуют в биосинтезе аминокислот. Биологический смысл реакций переаминирования аминокислот состоит в том, чтобы объединить аминогруппы распадающихся аминокислот в составе молекул одного типа аминокислоты, а именно глутаминовой /31/.
Трансаминазы относятся к универсально-распространенным ферментам. В тканях различных органов содержится значительное количество трансаминаз, в сотни и тысячи раз превышающее уровень активности их в сыворотке крови. При электрофорезе они мигрируют с L - и γ - глобулинами. Особенно высокой активностью АСТ (КФ.2.6.1.1.) отличаются сердце, печень, мышечная ткань, почки, поджелудочная железа (перечень представлен в порядке убывания активности АСТ). АЛТ (КФ.2.6.1.2.) в наибольших количествах обнаруживается в печени, в связи с этим ее называют печеночной трансаминазой, затем в поджелудочной железе, сердце, скелетных мышцах.
Значительные различия в активности трансаминаз в отдельных органах и в сыворотке крови определяют его важное клиническое диагностическое значение, так как при поражении ткани возникает резкий скачок уровня активности трансаминаз в крови. Наибольшее значение представляет повышение активности АСТ при инфаркте миокарда. Степень повышения отражает массовость поражения сердечной мышцы и тяжесть инфаркта. Характерна динамика активности АСТ при инфаркте миокарда: начало подъема - через несколько часов после возникновения заболевания, максимальный подъем – к концу первых суток, нормализация возможна в течение первой недели болезни. При других заболеваниях сердца повышение активности АСТ либо не происходит, либо носит умеренный характер. Однако активность АСТ повышается и при поражении других органов и тканей. Многие авторы склонны рассматривать определение АСТ как ценный тест при проведении дифференциальной диагностики между инфарктами сердца и легких. Основанием к этому служит значительно более высокая (в 50 раз) активность фермента в мышце сердца, в сравнении с тканью легкого. Активность трансаминаз в сыворотке крови является одной из наиболее ценных и самым распространенным в клинической практике показателем поражения печени, характеризующие протекающие в ней цитолитические процессы /37/.
Повышение активности аминотрансфераз, и, прежде всего АЛТ, выявляется уже в ранний, инкубационный, преджелтушный период вирусного гепатита, что имеет принципиальное эпидемиологическое значение для выявления больного еще до появления желтухи. В результате значительного повышения активности АЛТ у больных вирусным гепатитом снижается коэффициент Де Ритиса (АСТ: АЛТ) ниже 1 при норме 1 – 3, а при остром инфаркте миокарда, напротив, резкое возрастание этого коэффициента /38/.
При хронических гепатитах и циррозах печени соотношение трансаминаз меняется, и коэффициент повышается выше нормы. Важно иметь в виду, что механические желтухи (непроходимость желчных протоков в связи с желчекаменой болезнью или опухолью) не сопровождаются выраженным повышением трансаминазной активности. Возможно повышение активности трансаминаз при воспалительных заболеваниях различных органов и тканей, при мышечных дистрофиях и т. д. /37,38/.
Таким образом, в настоящее время установлено, что переаминирование является весьма важным и распространенным процессом биологического распада и синтеза аминокислот; он протекает в различных тканях животных, растений и в микроорганизмах. Поэтому исследование этого процесса имеет большое фундаментальное и прикладное значение.
2. Материалы и методы
2.1 Экспериментальная часть
2.1.1 Экспериментальные животные
Эксперимент проводился на самках белых беспородных крыс средней массы 250-300 г. Животные подвергались токсическому действию азотнокислого кадмия (Cd(NO3)2) во время лактации. Введение нитрата кадмия производилось самкам per os в течение 10 дней (с 1 по 10 день после рождения потомства) в дозах 0,5 мг/кг и 2 мг/кг /39/. По достижении потомством экспериментальных животных четырехмесячного возраста их декапитировали и производили отбор органов и тканей для определения активности АСТ и АЛТ.
В качестве контроля использовали животных, которым в период лактации вводили в соответствующем объеме физиологический раствор.
2.1.2 Подготовка биологического материала
2.1.2.1 Подготовка сыворотки крови
После декапитации животных кровь собирали в гепаринизированные пробирки и для получения сыворотки подвергают центрифугированию, при 3000 об/мин, в течение 15 минут. После центрифугирования получали сыворотку, не содержащую форменных элементов крови. Затем отбирали сыворотку в пробирки, и производили определение активности АСТ и АЛТ методом Райтмана – Френкеля/40/ с помощью стандартных наборов реактивов.
2.1.2.2 Подготовка гомогенатов тканей и органов
Извлеченные органы (печень, головной мозг, сердце, почки) отмывали от крови физиологическим раствором, взвешивали 1-2 грамма ткани, измельчали ножницами и растирали в ступке. Все операции производили на холоду. Затем добавляли среду выделения (0,005 N Tris, 0,1 N KСl, pH7,4) в отношении 1: 50 для головного мозга, сердца и почек, и 1:100 – для печени. Полученные гомогенаты переносили в центрифужные пробирки и центрифугировали при 4500 об/мин 10 минут. После центрифугирования супернатант переносили в другие пробирки, а осадок выбрасывали. Далее в супернатанте производили определение активности АСТ и АЛТ методом Райтмана – Френкеля /40/ при помощи стандартных наборов реактивов.
2.2. Определение активности аминотрансфераз методом Райтмана – Френкеля
АСТ в присутствии L - кетоглутарата катализирует реакцию переаминирования L - -аспартата с образованием оксалоацетата, который декарбоксилируется до пирувата /41/:
L – кетоглутарат + L - аспартат → L – глутамат + оксалоацетат → ПВК
АЛТ в присутствии L – кетоглутарата катализирует реакцию переаминирования L – аланина с образованием пирувата /41/:
L – кетоглутарат + L - аланин → L – глутамат + ПВК
Пируват с 2,4 – динитрофенилгидразином (2,4 - ДНФГ) в щелочной среде образует окрашенный гидразон, интенсивность окраски которого прямо пропорциональна активности АСТ и АЛТ.
2.2.1 Определение активности аспартатаминотрансферазы и аланинаминотрансферазы в сыворотке крови
В обычные пробирки наливали 0,5 мл субстрата (L – аспартат (L - аланин) 0,1 моль/л, L –