Исследование соотношения в мышцах С- и Х-белков в норме и при патологии
За скоростью амилоидогенеза наблюдают с помощью классического амилоидного красителя тиофлавина Т, который специфически взаимодействует с амилоидными фибриллами (Krebs et al., 2005). При взаимодействии тиофлавина Т с амилоидными фибриллами происходит увеличение интенсивности флуоресценции красителя при спектрофлуорометрических измерениях и наблюдается желто-зеленая флуоресценция при флуоресцентно-микроскопических исследованиях. Молекула красителя состоит из бензтиазольного и аминобензольного колец свободно вращающихся вокруг общей С–С связи. Кребс и соавторы показали, что молекула тиофлавина Т связывается с амилоидными фибриллами специфически (Krebs et al., 2005). Они предположили, что связывание происходит в "каналах", которые тянутся вдоль β-слоев (рис. 7). Более того, тиофлавин Т связывается с амилоидными фибриллами так, что их молекулы параллельны друг другу и расположены вдоль длинной оси фибриллы (Krebs et. al., 2005). Было показано, что причиной возрастания интенсивности флуоресценции тиофлавина Т при его связывании с амилоидными фибриллами является жесткость окружения, препятствующая повороту бензтиазольного и аминобензольного колец молекулы друг относительно друга в возбужденном состоянии (Воропай и др., 2003).
Другой амилоидный краситель Конго красный также специфически взаимодействует с амилоидными фибриллами (Klunk et al., 1989). Конго красный – сульфонированый азокраситель с гидрофобной центральной частью, состоящей из бифенильной группы, расположенной между отрицательно заряженными концами молекулы красителя (рис. 8). При связывании Конго красного с амилоидными фибриллами наблюдается зеленое двойное лучепреломление в поляризационном микроскопе, и это свойство делает Конго красный наиболее используемым красителем для диагностики амилоидов. В спектральных исследованиях регистрируется сдвиг спектра поглощения Конго красного в состоянии, связанном с амилоидными фибриллами, в длинноволновую область спектра, а именно от ~490 нм к ~500 нм.
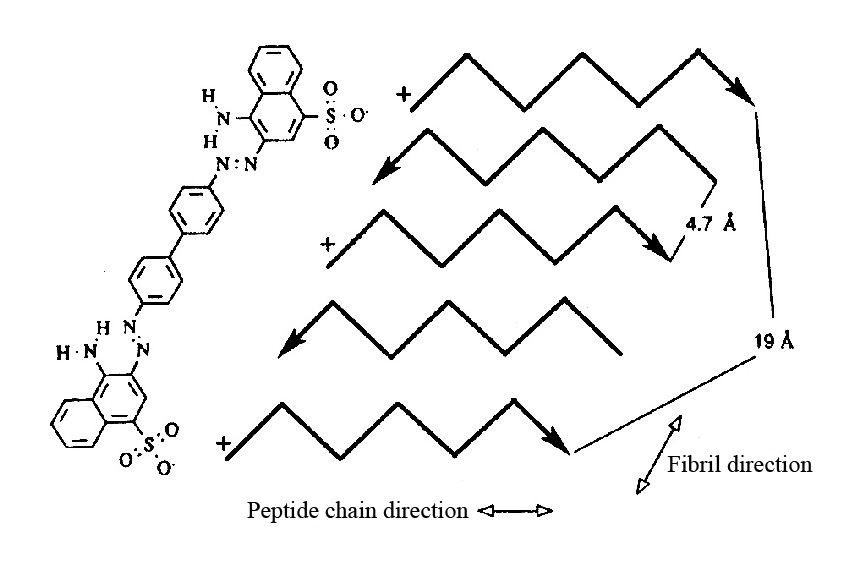
Рис. 8. Модель связывания Конго красного с амилоидными фибриллами. Показан антипараллельный слой, где каждая пятая цепочка белка имеет одинаковое N–C направление. Поэтому, молекула Конго красного может связываться с таким же типом аминокислоты в обеих полипептидных цепях (первой и пятой, как указано на рисунке). Следующая молекула красителя сможет связаться с третьей и седьмой цепочкой и т.д. (Klunk et al., 1989).
Связывание амилоидных фибрилл с Конго красным зависит от структуры амилоидных фибрилл, а именно от наличия β-складчатой структуры с отдельными β-слоями. Кланк и соавторы предложили модель связывания амилоидных фибрилл с Конго красным посредством связей между двумя отрицательно заряженными сульфоновыми группами Конго красного и двумя положительно заряженными аминокислотными остатками двух отдельных белковых молекул, которые определенным образом ориентированы в β-складчатой структуре фибрилл, образованной посредством бок о бок расположенных отдельных молекул (Klunk et al., 1989). Это означает, что белковые цепочки расположены на расстоянии 4.7 Е. Более того, каждая пятая цепочка расположена от первой на расстоянии 19 Е. Это, приблизительно, соответствует расстоянию между сульфоновыми группами КК (рис. 8). Данная модель показывает специфичность взаимодействия Конго красного с амилоидными фибриллами.
2.5. Патологические проявления амилоидозов
К настоящему времени выделяют следующие формы амилоидозов (Мягкова, 2000):
первичный (идиопатический) амилоидоз – развивается вследствие невыясненных причин;
вторичный (приобретенный) амилоидоз – развивается как осложнение после хронических заболеваний, при которых происходит распад тканей (туберкулез, бронхоэктатическая болезнь, хронический остеомиелит и др.);
наследственный (генетический, семейный) амилоидоз – врожденное нарушение белкового обмена;
старческий амилоидоз.
С другой стороны, амилоидоз разделяют на системный и локальный. Однако классификация системного амилоидоза основана на специфичности основного амилоидного белка.
Внешний вид органов при амилоидозе зависит от степени развития процесса. Если амилоидные отложения небольшие, внешний вид органа изменяется мало и амилоидоз обнаруживается лишь при гистологическом исследовании. При выраженном амилоидозе орган увеличивается в объеме, становиться очень плотным и ломким, а на срезе имеет своеобразный восковидный или сальный вид.
До сих пор остается нерешенным вопрос, касающийся механизма действия амилоидных фибрилл на органы и ткани. Исследования последних лет показали, что амилоидные агрегаты разных белков и пептидов вызывают нарушение жизнедеятельности клеток и их гибель. Как оказалось, цитотоксические свойства проявляют все амилоидные белки (Hashimoto et al., 2003; Qahwash et al., 2003; Sirangelo et al., 2004; Lee et al., 2006), однако неизвестно, чем обусловлена цитотоксичность этих агрегатов – механическим повреждением клеток, связанным с накоплением амилоидных отложений или особым молекулярным механизмом их взаимодействий внутри клетки.
цель исследования
Выяснение способности саркомерных белков семейства тайтина формировать амилоидные фибриллы in vitro.
задачи исследования
Изучить агрегационные свойства саркомерных белков семейства тайтина (тайтин, Х-, С- и Н-белки) in vitro.
Изучить агрегационные свойства Аβ(25-35)-пептида в сравнении с агрегацией молекул Х-белка.
Проверить амилоидную природу агрегатов, образуемых исследуемыми белками, поляризационной, флуоресцентной микроскопией и спектральными методами.
Изучить скорость образования амилоидных фибрилл.
Глава 3. Материалы и методы исследования
3.1. Экспериментальный и клинический материал
Экспериментальный материал: скелетные мышцы и миокард кролика.
Клинический материал: образцы миокарда пациента при ДКМП, взятые при проведении операции по пересадке сердца. Образцы миокарда человека были предоставлены ФГУ НИИ трансплантологии и искусственных органов Росздрава (г. Москва).
3.2. Выделение и очистка белковых препаратов
3.2.1. Очистка С-белка, Х-белка и Н-белка
Х-белок, С-белок и Н-белок очищали по методу (Offer et al., 1973). Фракции Х-, С- и Н-белков, полученные при хроматографической очистке миозина скелетных мышц на колонке с носителем DEAE-Sephadex А-50, концентрировали сульфатом аммония до степени насыщения 2.08 М и осаждали центрифугированием в течение 1 часа при 3000 g. Осадок растворяли в буфере, содержащем 0.3 M KCl, 4.8 мM K2HPO4, 5.2 мM KH2PO4, 0.1 мM ДТТ, 0.1 мM NaN3, pH 7.0, и диализовали против этого буфера до полного удаления сульфата аммония. Разделение белков проводили на колонке с гидроксиапатитом, уравновешенным в этом же буфере, для снятия белков с колонки использовали фосфатный градиент. Такая же процедура очистки применялась и для С-белка миокарда кролика и человека.
3.2.2. Выделение тайтина из скелетных мышц
Тайтин из скелетных мышц кролика выделяли по методу (Soteriou et al., 1993) с модификациями. Мышцы гомогенизировали в 3-х кратном (по отношению к массе мышц) объеме раствора, содержащего 50 мМ KCl, 5 мM ЭГТА, 1 мM NaHCO3,, 1 мM ДТТ, 0.1 мM NaN3, pH 7.0. Для уменьшения деградации тайтина в процессе выделения в раствор добавляли набор ингибиторов протеаз: 1 мM PMSF, 20 мкг/мл ингибитора трипсина, 10 мкг/мл леупептина.
Полученный мышечный гомогенат центрифугировали в течение 5–10 минут при 2500 g. Супернатант отбрасывали, а процедуру промывки повторяли 5–6 раз. К промытому осадку добавляли 2-х кратный объем экстрагирующего раствора, содержащего 0.9 М KCl, 2 мM MgCl2, 2 мM ЭГТА, 0.5 мM ДТТ, 0.1 мM NaN3, 1 мM PMSF, 10 мM имидазола-HCl, pH 7.0. Раствор также содержал 40 мкг/мл соевого ингибитора трипсина и 20 мкг/мл леупептина.
Экстракция проводилась на льду при 4˚С в течение 10–15 минут при непрерывном перемешивании. Экстракт осветляли в течение 40 минут при 14000 g и супернатант разбавляли в 3 раза охлажденной бидистиллированной водой, содержащей 0.1 мM ДТТ и 0.1 мM NaN3, для преципитации актомиозина (конечная ионная сила ~0.2). Через 1 час супернатант осветляли в течение 60 минут при 20000g. Для осаждения тайтина супернатант разбавляли в 5 раз (конечная ионная сила ~0.05) охлажденной бидистиллированной водой, содержащей 0.1 мM ДТТ и 0.1 мM NaN3. Через 40–60 минут осадок, содержащий преимущественно тайтин, собирали центрифугированием в течение 30 минут при 15000 g. Осадок растворяли в минимальном объеме буфера, содержащего 0.6 М KCl, 30 мM KH2PO4, 1 мM ЭГТА, 0.1 мM ДТТ, 0.1 мM NaN3, pH 7.0, и осветляли в течение 60 минут при 20000 g. Тайтин очищали методом гель-фильтрации на колонке с носителем Sepharose–CL2B, уравновешенным в этом же буфере.
3.3. Определение концентрации белковых препаратов
Концентрацию белков определяли спектрофотометрически с помощью спектрофотометра SPECOD UV VIS, используя следующие значения коэффициентов экстинции (Е2801 мг/мл): 0.543 для доколоночного миозина (Kielley & Harrington, 1960); 0.52 для колоночного миозина (Godfrey & Harrington, 1970); 1.08 для актина (Rees & Young, 1967); 1.37 для тайтина (Trinick et al., 1984); 1.09 для Х-белка, С-белка и Н-белка (Starr & Offer, 1982).
3.4. Проверка чистоты белковых препаратов
Чистоту выделенных препаратов миозина и актина скелетных мышц кролика проверяли с помощью ДСН-гель-электрофореза в 13% полиакриламидном геле по методу (Laemmli, 1970).
Чистоту тайтина, Х-белка, С-белка и Н-белка проверяли с помощью ДСН-гель-электрофореза по методу (Fritz et al., 1989) с модификациями. Согласно нашей методике, разделяющий гель содержал 7% полиакриламида вместо 15%, а также 0.75 М трис-HCl буфер, pH 8.8, 0.1% ДСН, 10% глицерина, 0.05% тетраметилэтилендиамина и 0.05% персульфата аммония. Кроме этого, вместо концентрирующего геля с содержанием полиакриламида 5% согласно (Fritz et al., 1989) применялся концентрирующий гель по методу (Laemmli et al., 1970), содержащий 2.6–2.8% полиакриламида (соотношение акриламида к бис-акриламиду 36.5:1). Эти модификации способствовали лучшему фокусированию белковых полос в геле. Концентрирующий гель также содержал 0.125 М трис-HCl буфер, pH 6.8, 0.1% ДСН, 0.05% тетраметилэтилендиамина и 0.05% персульфата аммония. Модифицированный нами метод ДСН-гель-электрофореза позволил проводить электрофоретическое разделение белков с молекулярным весом от 3 МДа до 100 кДа, что дало возможность исследовать совместное поведение тайтина, Х-белка, С-белка и Н-белка.
Электродный буфер при проведении электрофореза содержал 0.192 М глицина, 0.025 М трис и 0.1% ДСН, рН 8.3. Электрофорез проводили при токе 3–5 мА первые 30–60 минут, после этого поднимали напряжение до 12–15 мА. По окончании электрофореза гели фиксировали в растворе, содержащем 10% этанола и 10% уксусной кислоты, в течение 20–30 минут. Затем гели окрашивали в течение 30–40 минут в растворе, содержащем 0.1% кумасси G-250 и R-250 (смешанных в пропорции 1:1), 45% этанола и 10% уксусной кислоты. Отмывка окрашенных гелей проводилась в 7% уксусной кислоте при постоянном перемешивании на качалке в течение 40–50 мин.
3.5. Условия формирования амилоидных фибрилл
Амилоиды формировали диализом растворов белков в течение 20 часов при 4-37°С против растворов, содержащих: 30 мМ KCl, 10 мМ имидазола, рН 7.0; 0.15 М глицин-КОН, рН 7.0; 0.15 М глицин-KOH, рН 7.5; 25 мМ NaCI, 10 мМ Hepes, pH 7.0; 50 мM NaCl, 10 мM Hepes, pH 7.0; 30 мМ MgCI2, 10 мМ имидазола, pH 7.0; 50 мM MgCl2, 10 мM имидазола, pH 7.0.
Для исследования скорости амилоидообразования раствор Х-белка диализовали против буфера, содержащего 30 мМ KCl, 10 мМ имидазола, рН 7.0 при температуре 4˚С. Через определенные промежутки времени отбирали пробы для электронно-микроскопических и спектральных исследований. Для экспериментов по исследованию цитотоксичности амилоидных образований Х-белок также инкубировали в растворе, содержащем 30 мМ KCl, 10 мМ имидазола, рН 7.0 при температуре 4˚С.
3.6. Микроскопические исследования
3.6.1 Электронная микроскопия
Для приготовления электронно-микроскопических образцов использовали препараты белков с концентрациями 0.1 мг/мл. Каплю раствора или суспензии белка наносили на медные сетки, покрытые коллодиевой пленкой (2% коллодий в амилацетате фирмы SPI-CHEM, USA), укрепленной углеродом. После удаления избытка суспензии полоской фильтровальной бумаги образцы окрашивали 2% водным раствором уранилацетата.
Электронно-микроскопические исследования проводили на микроскопе JEM-100В при ускоряющем напряжении 80 кВ и увеличении 30000х. Увеличение микроскопа было тестировано по паракристаллам парамиозина с периодичностью 14.5 нм.
3.6.2. Поляризационная и флуоресцентная микроскопия
Исследуемые образцы, наносились на предметные стекла и высушивались на воздухе. Образовавшиеся белковые пленки окрашивались 1% водным раствором Конго красного (фирма SIGMA, USA) и затем исследовались на поляризационном микроскопе МКУ-1. Образцы также окрашивались 1% водным раствором тиофлавина Т (фирма SIGMA, USA) и исследовались с помощью люминесцентного микроскопа ЛЮМАМ-И 3.
3.7. Спектральные методы
3.7.1. Метод кругового дихроизма
Исследование вторичной структуры белка проводили методом кругового дихроизма. Спектры кругового дихроизма исследуемых белков, до и после образования ими фибрилл, регистрировали на спектрополяриметре Jasco J-600, используя кварцевые кюветы с оптической длиной 0.1 см. Спектры КД были измерены в области 200–250 нм. Обсчет спектров КД в далекой ультрафиолетовой области производился с использованием программы CONTINLL (lamar.colostate.edu/~sreeram/CDPro/).
3.7.2. Метод флуоресцентного анализа
Исследование амилоидной природы фибрилл, а также исследование скорости амилоидообразования было проведено с использованием классического флуоресцентного красителя амилоидных структур тиофлавина Т (ТТ). Измерения флуоресценции проводили в растворе красителя (250 мкл) и суспензии фибрилл (250 мкл) в соответствующем буфере (буфер указан в подписях под рисунками в изложении результатов). Молярное соотношение белка к красителю составляло 2:1. Интенсивность флуоресценции раствора регистрировали с помощью спектрофлуориметра PERKIN-ELMER - 44B при длине волны 488 нм и при длине волны возбуждения 420 нм. Ширина щели при возбуждении 5 нм, а при регистрации 10 нм. Из полученных значений интенсивности флуоресценции тиофлавина Т в буфере в присутствии белка вычитали значения интенсивности флуоресценции ТТ в буфере в отсутствие белка, получая интенсивность флуоресценции ТТ, связанного с белком.
3.7.3. Спектрофотометрический метод
Для подтверждения амилоидной природы фибрилл был также использован специфический краситель Конго красный (КК). Суспензию фибрилл (250 мкл) добавляли к раствору КК (250 мкл) в соответствующем буфере (буфер указан в подписях под рисунками в изложении результатов). Молярное соотношение белка к красителю составляло 2:1. Спектры поглощения КК в отсутствие и в присутствии белка регистрировали при 450–650 нм с помощью спектрофотометра SPECORD M 40.
III. Результаты и обсуждение
Глава 4. образование амилоидных фибрилл белками семейства тайтина
4.1. Электронно-микроскопическое изучение агрегационных свойств молекул тайтина, Х-белка, С-белка и Н-белка скелетных мышц кролика
Изучение амилоидогенеза разных белков in vitro проводят в условиях, которые часто не совместимы с условиями in vivo. Для образования амилоидных фибрилл белками семейства тайтина мы использовали условия, близкие к физиологическим. С помощью электронной микроскопии было показано, что исследуемые белки способны формировать разные амилоидные агрегаты, как и другие известные амилоидогенные белки (Chiti et al., 1999; Goldsbury et al., 2000; O'Nuallain et al., 2004; Uversky & Fink, 2004; см. рис. 5, 6).
Результаты электронно-микроскопических исследований представлены на рис. 9–14. Мы показали, что в растворе, содержащем 30 мМ KCl, 10 мМ имидазола, рН 7.0 Х-белок образует спирально скрученные ленточные фибриллы с осевой периодичностью ~60–70 нм, шириной ~40 нм и длиной более 1 мкм (рис. 9 А). Мы обнаружили, что такие же структуры Х-белок образует и в растворе, содержащем 0.15 М глицин-КОН, рН 7.5 (рис. 9 Б). Кроме этого Х-белок, а также С-белок и Н-белок образуют аморфные агрегаты, протофибриллы, линейные фибриллы и пучки линейных фибрилл в растворах: 50 мM NaCl, 10 мM Hepes, pH 7.0; 25 мМ NaCI, 10 мМ Hepes, pH 7.0; 50 мM MgCl2, 10 мM имидазола, pH 7.0; 30 мМ MgCI2, 10 мМ имидазола, pH 7.0; 0.15 М глицин-KOH, рН 7.5 (рис. 10–13).
На рис. 14 представлены электронные микрофотографии пучка линейных фибрилл тайтина скелетных мышц кролика в растворе 0.15 М глицин-KOH, рН 7.5. В этих условиях тайтин образует плотные пучки линейных фибрилл длиной ~3 мкм, шириной до 500 нм и аморфные агрегаты. Мы наблюдали, что аморфные агрегаты, протофибриллы длиной 100–200 нм и диаметром ~3 нм, линейные фибриллы диаметром ~7 нм и пучки линейных фибрилл длиной более 3 мкм и шириной до 500 нм могут присутствовать в одном и том же образце. Это, по-видимому, отражает разные стадии фибриллогенеза, характерные для формирования амилоидов (Kelly, 1998; Chiti et al., 1999; Goldsbury et al., 2000).
Для подтверждения амилоидной природы фибрилл тайтина, Х-белка, С-белка и Н-белка наши дальнейшие исследования были направлены на сравнение агрегатов, образуемых белками семейства тайтина, с агрегатами известных амилоидогенных белков и, в частности, Аβ-пептида, играющего важную роль в патогенезе болезни Альцгеймера.
4.2. Электронно-микроскопическое изучение агрегационных свойств Аβ(25-35)-пептида в сравнении с агрегацией молекул Х-белка
Для сравнения спирально скрученных фибрилл Х-белка с другими амилоидными фибриллами мы изучили агрегационные свойства Аβ(25-35)-пептида. Мы показали, что Аβ(25-35)-пептид, инкубированный в течение 24 ч при 37˚С образует подобно Х-белку (рис. 15 А) спирально скрученные ленты несколько микрон длиной и диаметром 25–27 нм с вариабельным осевым периодом 170–250 нм (рис. 15 Б, В).
Ленты построены из нескольких длинных и узких фибрилл диаметром 3–5 нм. На микрофотографиях они лучше видны, если смотреть вдоль ленты. Обнаруживаются также листовые агрегаты (рис. 15 Г), сформированные за счет боковой агрегации более коротких узких фибрилл. Такие агрегаты достигают в ширину ~50 нм. Таким образом, с помощью электронной микроскопии нами было установлено морфологическое сходство фибрилл Х-белка с амилоидами Aβ-пептида, найденными в мозге при болезни Альцгеймера.
4.3. Подтверждение амилоидной природы агрегатов, образуемых белками семейства тайтина (тайтина, Х-белка, С-белка и Н-белка) при их взаимодействии со специфическими красителями на амилоиды
Конго красным и тиофлавином Т
Основным методом выявления амилоидной природы фибрилл, образуемых разными белками, является их способность взаимодействовать со специфическими красителями Конго красным и тиофлавином Т (Klunk et al., 1989; LeVine, 1993, 1995; Krebs et al., 2005). Именно эти красители используют в клинической практике для определения амилоидных отложений in vivo и для исследования амилоидогенеза in vitro разными белками.
При окрашивании Конго красным фибриллярных структур, формируемых исследуемыми белками, мы наблюдали двойное лучепреломление в поляризационном микроскопе, а при окрашивании их тиофлавином Т – желто-зеленую флуоресценцию в люминесцентном микроскопе. На рис. 16 представлены данные связывания Х-фибрилл, сформированных в растворе, содержащем 30 мМ KCl, 10 мМ имидазола, рН 7.0, с красителями Конго красным и тиофлавином Т.
При спектральных исследованиях интенсивность флуоресценции тиофлавина Т в присутствии фибрилл Х-, Н- и С-белков и тайтина возрастала в ~10, ~9, ~7 и ~5 раз соответственно по сравнению с интенсивностью флуоресценции красителя в присутствии этих белков в молекулярной форме (рис. 17). Незначительное увеличение интенсивности флуоресценции тиофлавина Т наблюдается и в присутствии молекулярных форм тайтина, Х-, С- и Н-белков, что согласуется с литературными данными для белков, содержащих β-складчатую структуру (LeVine, 1993; 1995).
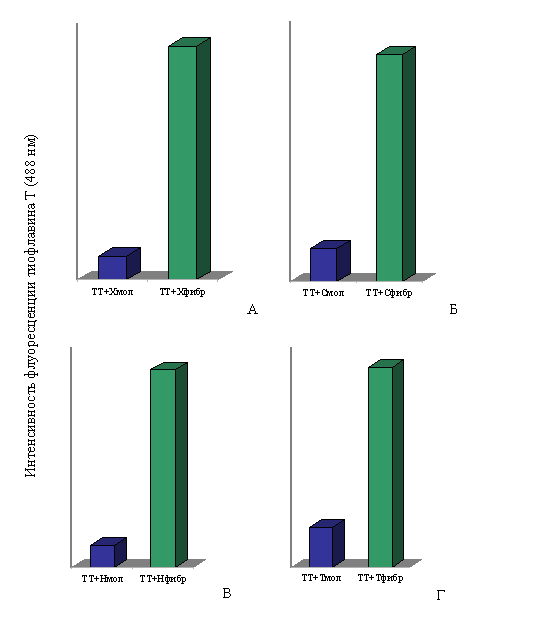
Рис. 17. Интенсивность флуоресценции тиофлавина Т (TT): А – в присутствии молекулярного X-белка (в растворе, содержащем 0.3 M KCl, 10 мМ К-фосфат, рН 7.0) и в присутствии фибрилл X-белка (0.15 М глицин-KOH, рН 7.5); Б – в присутствии молекулярного С-белка (0.3 M KCl, 10 мМ К-фосфат, рН 7.0) и в присутствии фибрилл С-белка (0.15 М глицин-KOH, рН 7.5); В – в присутствии молекулярного Н-белка (0.3 M KCl, 10 мМ К-фосфат, рН 7.0) и в присутствии фибрилл Н-белка (0.15 М глицин-KOH, рН 7.5); Г – в присутствии молекулярного тайтина (0.6 М KCl, 30 мМ KH2PO4, рН 7,0) и в присутствии фибрилл тайтина (0.15 М глицин-KOH, рН 7.5). Молярное соотношение красителя и белка 1:2.
При измерении спектральных характеристик раствора Конго красного в присутствии фибрилл тайтина, Х-, С- и Н-белков наблюдался сдвиг спектра поглощения красителя в длинноволновую область от ~490 нм к ~500 нм (рис. 18), что также является характерной чертой при связывании амилоидных фибрилл с Конго красным (Klunk et al., 1989).
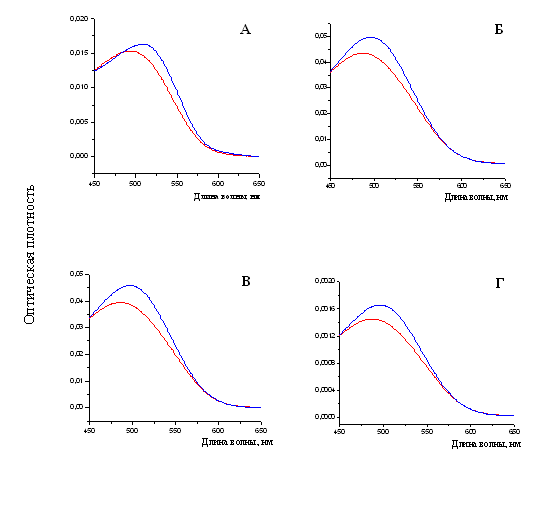
Рис. 18. Спектры поглощения свободного красителя показаны линиями красного цвета. Спектры поглощения красителя Конго красного (линия синего цвета): А – в присутствии фибрилл X-белка (в растворе, содержащем 0.15 М глицин-KOH, рН 7.5); Б – в присутствии фибрилл С-белка (0.15 М глицин-KOH, рН 7.5); В – в присутствии фибрилл Н-белка (0.15 М глицин-KOH, рН 7.5); Г – в присутствии фибрилл тайтина (0.15 М глицин-KOH, рН 7.5). Молярное соотношение красителя и белка 1:2.
Проведенные исследования указывают на специфичность связывания красителей с фибриллярными агрегатами, образуемыми белками семейства тайтина, подтверждая их амилоидную природу.
4.4. Изучение вторичной структуры тайтина и белков его семейства до и после образования амилоидных фибрилл
В работах по изучению образования амилоидных фибрилл белками in vitro используется длительная икубация и условия, несовместимые с условиями in vivo (денатурирующие вещества, низкие значения рН, высокие температуры, добавление ряда веществ, не присутствующих в клетке и т.п.) (Stine et al., 2003). Как известно, эти условия приводят к трансформации структуры молекулы белка с образованием β-складчатости, характерной для амилоидных фибрилл. (Juzczyk et al., 2005). Согласно литературным данным (Labeit & Kolmerer, 1995; Weber et al., 1993; Vaughan et al., 1993), молекулы белков семейства тайтина уже содержат β-складчатую структуру. Нами были проведены исследования вторичной структуры белков до и после образования ими амилоидных фибрилл. Как показано на рис. 20 молекулярные и фибриллярные формы Х-, С- и Н-белков характеризуются сходными спектрами кругового дихроизма (КД). Форма спектров фибрилл свидетельствует в пользу того, что в их составе практически отсутствуют α-спиральные участки, а преобладающими элементами являются β-складки. Молекулярная форма тайтина содержит ~10% α-спирали. После образования амилоидных фибрилл молекула тайтина содержит только β-структуру (рис. 19).
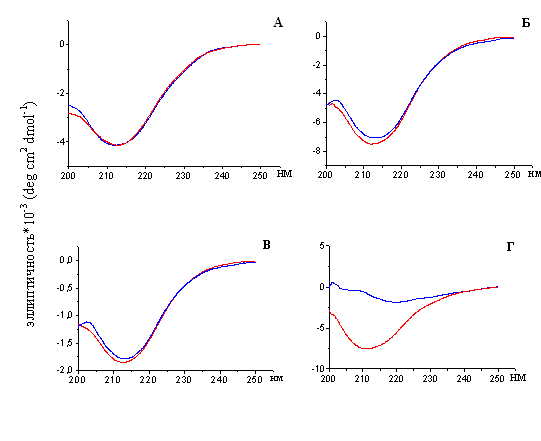
Рис. 19. Спектры кругового дихроизма (КД) в дальней Уф-области: А – Х-белка;
Б – С-белка; В – Н-белка; Г – тайтина. Спектры КД молекулярных форм Х-, С-, Н-белков (в растворе, содержащем 0.3 M KCl, 10 мМ К-фосфат, рН 7.0) и молекулярной формы тайтина (0.6 М KCl, 30 мМ KH2PO4, рН 7.0) показаны линией красного цвета. Спектры КД фибрилл Х-, С-, Н-белков и тайтина (0.15 М глицин-KOH, рН 7.5) показаны линией синего цвета.
Понятно, что при наличии у этих белков β-складчатой структуры, необходимой для образования амилоидных фибрилл, облегчается процесс формирования ими амилоидов in vitro и увеличивается опасность их быстрого роста в клетке.
4.5. Скорость образования амилоидных фибрилл Х-белка
Процессы формирования амилоидных фибрилл разными белками in vitro характеризуются разной скоростью (Kim et al., 2002; Stine et al., 2003; Hwang et al., 2004). Скорость фибриллообразования может зависеть от многих факторов: состава растворов, температуры, рН, и др. Но наибольшее влияние оказывает, скорее всего, тип вторичной структуры белка. Если белок содержит высокий процент α-спирали, то требуется трансформация типа "α-спираль – β-складчатость" (рис. 4). Так как белки семейства тайтина уже содержат β-складчатую структуру, то нет необходимости в изменении вторичной структуры. Скорость образования амилоидных структур белками семейства тайтина была продемонстрирована на примере Х-белка, так как он образует наиболее упорядоченные амилоидные структуры и методом электронной микроскопии можно визуально оценить, как происходит процесс фибриллообразования. Параллельно скорость образования амилоидных фибрилл Х-белком оценивалась по их связыванию с флуоресцентным красителем тиофлавином Т, который широко используется в качестве маркера амилоидов (LeVine, 1993).
В образцах белка происходило накопление их амилоидных структур, о чем свидетельствует возрастание флуоресцентного сигнала тиофлавина Т. Результаты представлены на рис. 20. Не происходит значительного увеличения интенсивности флуоресценции тиофлавина Т при связывании с Х-белком в первые часы инкубации (1–4 часа), так как фибриллы еще не сформированы, а присутствуют аморфные агрегаты (рис. 20 А). При дальнейшей инкубации интенсивность флуоресценции тиофлавина Т возрастала (рис. 20 Г), что соответствовало образованию амилоидных фибрилл, среди которых наблюдаются и аморфные агрегаты (рис. 20 Б). После 22 часов диализа интенсивность флуоресценции красителя при связывании с фибриллами достигала плато флуоресцентной кривой, что согласуется с данными электронной микроскопии: отмечается присутствие хорошо сформированных спирально скрученных ленточных фибрилл Х-белка (рис. 20 В). Они наблюдаются и после 26 часов диализа.
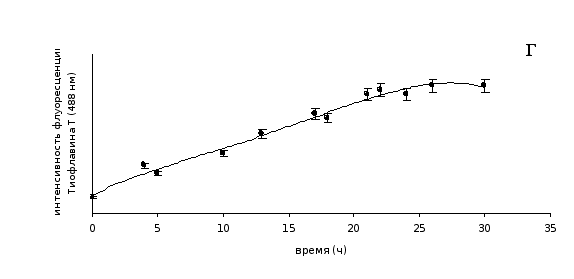
Рис. 20. А – аморфные агрегаты Х-белка (4 часа диализа), Б – линейные фибриллы и аморфные агрегаты Х-белка (17 часов диализа), В – спирально скрученные ленточные фибриллы Х-белка (22 часа диализа), сформированные в растворе, содержащем 30 мМ KCl, 10 мМ имидазола, рН 7.0. Негативное окрашивание 2% раствором уранилацетата. Шкала 100 нм. Г – скорость образования амилоидных фибрилл Х-белка.
Для многих амилоидогенных белков также характерна временная зависимость образования амилоидных фибрилл. Например, мышечная ацилфосфатаза способна формировать аморфные агрегаты после первых часов инкубации в присутствии трифлуороэтанола при рН 5.5 и температуре 25˚С, и только через 45 дней появляются пучки фибрилл (Chiti et al., 1999). Аβ(1-40)-пептид при рН 7.2, температуре 37˚С в присутствии 0.1% уксусной кислоты после 4 часов инкубации образует аморфные агрегаты и только после 48 часов – длинные фибриллы (Qahwash et al., 2003). Эксперименты со многими белками показали, что перед образованием амилоидов in vitro структура их молекул должна претерпевать трансформацию типа "α-спираль – β-складчатость", что, как правило, требует длительной инкубации и жестких условий, не совместимых с условиями in vivo (низкие значения рН, высокие температуры, добавление ряда веществ, не присутствующих в клетке и т.п.). Согласно результатам нашего исследования, образование амилоидных фибрилл Х-белком происходит в мягких условиях (рН 7.0, температура 3–5°С, ионная сила, близкая к физиологической) и быстрее, чем в случае мышечной ацилфосфатазы человека и Аβ(1-40)-пептида. Следует также отметить, что в отличие от других белков, наличие 90% β-складчатой структуры у Х-белка способствует его быстрой агрегации в амилоидные фибриллы in vitro, что указывает на возможность быстрого роста его амилоидных депозитов in vivo.
4.6. Образование амилоидных фибрилл С-белком миокарда человека при ДКМП и С-белком миокарда кролика
Амилоидные депозиты нередко обнаруживаются в сердце и кровеносных сосудах при кардиомиопатиях и миокардитах. Особо следует отметить амилоидоз сердца (кардиопатический амилоидоз или амилоидная кардиомиопатия), который, как утверждают медицинские специалисты (Сторожаков и др., 2000), к сожалению, не включается в схему дифференциального диагноза даже при резистентной к