Исследование роста микромицетов на различных субстратах
Было проведено исследование О. В. Сычуговой с соавторами (2003) с целью изучения возможности роста и развития видов микромицетов на композиции пленочного сополимера этилена и винилацетата с термопластичным крахмалом.
В процессе данного исследования было установлено, что они способны утилизировать данный источник углеродного питания. Однако динамика роста видов на разных средах при одинаковых условиях инкубации, при одной и той же навеске крахмала не одинакова, что особенно четко проявляется на 4 – 10-е сутки. Выявляется и некоторая разница в темпе роста видов грибов на нативном и растворимом крахмале разного происхождения, а также на средах Чапека и Гетченсона, взятых в качестве контроля (Сычугова, 2003).
Изменения морфологических признаков и образования новых структур у тест – культур на модифицированных средах при замене сахарозы на крахмал и росте на полимере не отмечаются, и они сопоставимы с параметрами, приведенными в определителях (Пидопличко, 1953; Ellis, 1971; Watanabe, 2000). Отличия выявлены у них только в темпах формирования морфологических структур. Хотя в литературе и приведены данные о влиянии субстрата на появление новых морфологических структур у грибов (Богомолова, 2001), однако, вероятнее всего, онтогенез и темпы развития определяются геномом вида, реализация программы которого зависит от влияния различных факторов (Шевцова, 1987; Долгова, 1997).
На поверхности пленки, содержащей термопластичный крахмал фиксируются сформированные пучки конидиеносцев Aspergillus niger, Paecilomyces variotii, Penicillium funiculosum, Chaetomium globosum, Trichoderma viride. Другие виды из взятого набора тест-культур не растут на данном субстрате или формируют слабое спороношение и в более поздние сроки.
Рост мицелия и формирование спороношения на композиции пленочного сополимера дает основание предполагать участие некоторых видов грибов в биодеструкции полимера из сополимеров этилена и винилацетата (СЭВА) с добавлением термопластичного крахмала (ТПК). Это дает возможность при последующих пересевах на смесях СЭВА и ТПК отобрать наиболее активные виды и их штаммы для разработки биотехнологии по его утилизации (Сычугова, 2003).
Таким образом, микроскопические грибы могут использовать в качестве источников углерода разнообразные органические вещества, тем самым являясь важными деструкторами различных природных материалов: целлюлозы, крахмала, лигнина, гемицеллюлозы, жиров, углеводородов, а также синтетических материалов, таких как пластики, пленки, упаковки пищевых продуктов. Поэтому предполагаемое исследование актуально и своевременно.
ГЛАВА 2. ОБЪЕКТЫ И МЕТОДЫ ИССЛЕДОВАНИЙ
2.1 Объекты исследований
В качестве объектов исследования были выбраны коллекционные штаммы микромицетов рода Aspergillus: A. niger, A. ustus, A. terreus, A. flavus, A. fumigatus, а также штаммы родов Alternaria sp., Penicillium sp., Cladosporium sp., Trichoderma sp., Verticillium sp. Культуры были взяты из коллекции культур микроорганизмов кафедры «Прикладная биология и микробиология» АГТУ. Данные виды микромицетов были выделены из основных типов почв Астраханской области и из растительных субстратов: Aspergillus flavus и A. fumigatus из бурой полупустынной почвы Орловского смешанного леса, Alternaria sp. и Cladosporium sp. – из листьев клубники, Penicillium sp. – из каштановой почвы Дубового леса, Trichoderma sp., Verticillium sp. – из каштановой почвы Ясеневого леса.
В качестве источников углерода использовали модельные: сахара (лактоза, ксилоза, арабиноза, галактоза, мальтоза), многоатомные спирты (глицерин, сорбит), крахмал, целлюлоза; природные материалы (растительный опад, камыш, опилки, кора, сено).
2.2 Отбор и подготовка почвенного образца
Образцы почв для микробиологических исследований отбирают в стерильные пергаментные пакеты, полиэтиленовые пакеты или стеклянную посуду.
При отсутствии возможности анализировать образцы непосредственно после сбора, их в течение нескольких часов высушивают на воздухе, предохраняя от прямых солнечных лучей.
При подготовке почв к микробиологическому анализу необходимо провести следующие операции: очистить от камней, трав; разрушить почвенные агрегаты, используя метод растирания почвы в стерильной фарфоровой чашке пестиком (Градова, 2001).
2.3 Методы выделения плесневых грибов
При выявлении и учете микромицетов производят посев из разведения почвенной суспензии на плотные питательные среды. Наиболее часто используют подкисленные молочной кислотой, сусло - агар и синтетические среды с простыми углеводами (например, среда Чапека). Подкисление производят для того, чтобы убить бактерии.
При выявлении грибов, которые не развиваются на кислых средах, используют красители: бенгальский розовый, кристаллический фиолетовый, малахитовый зеленый. Применяют также комбинации из красителей и антибиотиков.
Грибы, которые не выдерживают конкуренцию за моносахара, выделяют на «голодные среды» – водный агар, агар с почвенной вытяжкой, агар с разведенным в 8-10 раз суслом. На этих средах микромицеты развиваются значительно медленней и образуют мелкие колонии. При выделении микромицетов, разлагающих целлюлозу, лигнин, гумусовые вещества, источник углерода добавляют к синтетической минеральной среде (Бабьева, 1989).
2.4 Методы идентификации плесневых грибов
Культуральные признаки грибов описывают на плотных питательных средах в чашках Петри. При описании культуральных признаков грибов отмечают внешний вид колоний, текстуру колоний (бархатистая, шерстистая, шероховатая, войлочная), окраску колоний, диффузию пигмента в агар, складчатость колонии, наличие экссудата.
Для характеристики морфологических признаков сначала рассматривают чашки при малом увеличении, а затем готовят микроскопический препарат – раздавленная капля (Бабьева, 1989).
Идентификация мицелиальных грибов основана главным образом на сопоставлении макроскопических и микроскопических признаков исследуемой культуры с ранее описанными признаками известных грибов. Для каждой идентифицируемой культуры необходимо определить цвет поверхности (у некоторых организмов и обратной стороны) и фактуру колоний, а также скорость роста по диаметру колоний (макроскопические признаки). Дальнейшая работа по идентификации связана с приготовлением препаратов репродуктивных органов: необходимо отмечать характер септирования гиф, тип конидиогенных клеток и вид их репродуктивных пропагул. Принадлежность грибов устанавливают по наличию разнообразных конидиальных спороношений как открытых, так и внутри специальных вместилищ – пикнид и отсутствии каких-либо половых спороношений. Применяемая на практике идентификация основана в основном на морфологических признаках конидиального спороношения, которые чрезвычайно разнообразны. Принадлежность к классу и роду устанавливают по определителям (Егоров, 1986; Билай, 1987; Саттон, 2001; Еремеева, 2007; Booth, 1971; Pitt, 1991; Klich, 1992).
2.5 Принципы составления питательных сред для грибов. Основные принципы композиции сред
При составлении питательных сред для грибов обычно пользуются результатами предварительных исследований по выяснению значения для роста и развития изучаемого объекта концентрации отдельных компонентов (источников углерода, азота, зольных веществ и витаминов).
Основными правилами, которых придерживаются при составлении сред, способствующих росту грибов, являются следующие:
целесообразно применять отдельные источники углерода и азота;
концентрация вещества, служащего источником азотного питания, должна сильно уступать концентрации вещества – источника углерода (примерно в 10 – 15 раз).
Хотя среды натурального происхождения более благоприятны для роста большинства грибов, однако при физиологических экспериментах по изучению развития и обмена у грибов использовать их нежелательно, так как их состав непостоянен. Для этих экспериментов обычно используются синтетические среды. Одной из первых синтетических сред для грибов (культур видов аспергиллов и пенициллов) была среда Роллена следующего состава (г/л):
сахароза – 72 (около 5 %);
винная кислота – 4,0 (для подкисления среды);
фосфорнокислый аммоний – 4,0;
углекислый калий – 0,6;
сернокислый аммоний – 0,25;
сернокислый цинк – 0,07;
сернокислое железо – 0,07;
кремнекислый калий – 0,07;
дистиллированная вода – 1,5 л.
Более простой состав имеет среда Чапека (г/л):
сахароза – 30,0;
NaNO3 – 2,0;
MgSO4 – 0,5;
FeSO4 – 0,01;
KH2PO4 – 1,0;
KCl – 0,5;
дистиллированная вода – 1,0 л.
Для многих грибов указанные здесь среды являются неполноценными. Некоторые грибы (особенно витаминозависимые) растут на них плохо или совсем не растут. В таких случаях, если потребность данного организма в витаминах не изучена, необходимо добавлять в среду экстракты растительных или животных тканей, выбирая их исходя из экологии данного гриба. Например, в среды для выращивания грибов – дереворазрушителей добавляют опилки из древесины той породы дерева, которую они поражают в природе, для выращивания грибов – паразитов растений – ткани растения – хозяина; выращивание грибов – копрофилов производится на средах с навозным экстрактом (Беккер, 1983).
2.6 Приготовление питательных сред
Посуда для приготовления сред не должна содержать посторонних веществ, например щелочей, выделяемых некоторыми сортами стекла. Перед употреблением посуду тщательно мыли, полоскали и высушивали. Среды варили в стеклянных колбах объемом 250 мл. Каждой среды готовили объемом по 150 мл, рассчитанной на 10 культур исследуемых штаммов. После варки среды стерилизовали в автоклаве при 0,5 атм и 120 ○С в течение 20 минут. После стерилизации и добавления соответствующих источников углеродного питания среды разливали в стерильные чашки Петри по 20 мл. Предварительно в чашки вносят по 1 капле молочной кислоты для подкисления среды, которое необходимо, чтобы убить бактерии.
2.7 Определение способности плесневых грибов использовать различные источники углерода
2.7.1 Определение радиальной скорости роста на твердой среде
Микромицеты характеризуются неодинаковой способностью использовать различные соединения углерода для конструктивного и энергетического метаболизма. Чтобы выяснить возможность роста гриба за счет тех или иных углеродсодержащих веществ, их высевают на синтетические среды, содержащие в качестве единственного источника углерода различные моно-, ди- и полисахариды, многоатомные спирты, органические кислоты, углеводороды.
В качестве единственного источника углерода использовали сахара (лактоза, ксилоза, арабиноза, галактоза, мальтоза), многоатомные спирты (глицерин, сорбит), крахмал, целлюлоза, природные целлюлозные материалы (растительный опад, камыш, опилки, кора, сено). Источники углерода добавляли в среду в мелко нарезанном виде. Все источники углерода добавлялись в среды количеством 45 г/л.
В данной работе определение особенностей роста грибов на различных источниках углеродного питания проводилось путем поверхностного посева исследуемых штаммов на среду Чапека без сахарозы с различными источниками углерода. Посев культур осуществляли уколом в центр чашки Петри. Время культивирования составляло 14 суток, температура культивирования – 24 ○С. Параллельно производят посев на среду Чапека с сахарозой (контроль 1) и без сахарозы (контроль 2). Значение применяемых питательных сред для процессов роста грибов оценивалось методом измерения радиальной скорости роста путем периодического замера диаметра колоний грибов (через каждые 48 часов), растущих на чашках Петри.
Определение радиальной скорости роста грибов проводили на плотной питательной среде за определенный промежуток времени. После 48 часов инкубации при 24 ○С измеряли диаметр выросших на чашках колоний при помощи линейки. Эту операцию повторяют через каждые двое суток в течение двух недель.
За диаметр отдельной колонии в данный момент времени принимают среднее арифметическое измерение. Вычисление радиальной скорости проводят по формуле:
Kr = (r – ro) / (t – to),
где k – радиальная скорость роста;
ro – радиус колоний в начальной момент времени to;
r – радиус колоний в момент времени t (Паников, 1991).
2.7.2 Изучение прорастания спор в капле субстрата
На основании метода проращивания грибных зачатков во влажной камере, можно определять способность грибов к ассимиляции различных субстратов. На предметные стекла с лункой наносятся споровая суспензия в гидролизате (камыша, опилок, сена, растительного опада, коры), сверху накрывали покровными стеклами, и помещали во влажную камеру. Предварительно гидролизаты готовили: мелко измельченные растительные материалы заливали дистиллированной водой количеством 10 г на 1 л, кипятили в течение 15 минут для наибольшего выхода воднорастворимых органических веществ из растительных субстратов, затем подвергали стерилизации при 120 ○С в автоклаве. Споровую суспензию готовили следующим образом: микроскопические грибы 10 дней выращивали на среде Чапека в пробирках (скошенный агар), после производили смыв 10 мл гидролизата. Для удаления обрывков мицелия суспензию фильтровали через 2-слойную стерильную марлю. Чистоту и плотность суспензии проверяют при микроскопировании в камере Горяева. Для основных опытов плотность споровой суспензии составляет 106 спор в мл. Прорастание спор начинают учитывать через 24 часа. Прорастание спор рассчитывается как отношение числа проросших спор к общему числу просмотренных. Наблюдение проводят на 1, 2, 3, 7, 15-е сутки. Стекла микроскопировали, учитывая прорастание спор (%), длину проростков (в мкм) (Кураков, 2001).
ГЛАВА 3. ИССЛЕДОВАНИЕ РОСТА МИКРОМИЦЕТОВ НА РАЗЛИЧНЫХ СУБСТРАТАХ
Объектами исследования явились 10 штаммов коллекционных микроскоскопических грибов родов Aspergillus: A. niger, A. ustus, A. terreus, A. flavus, A. fumigatus, а также штаммы родов Alternaria sp., Penicillium sp., Cladosporium sp., Trichoderma sp., Verticillium sp. В качестве источников углерода использовали сахара (лактоза, ксилоза, арабиноза, галактоза, мальтоза), многоатомные спирты (глицерин, сорбит), крахмал, целлюлоза, природные целлюлозные материалы (листья, камыш, опилки, кора, сено).
В результате посева исследуемых микроскопических грибов на среду Чапека с различными источниками углерода было установлено, что изменение трофических условий оказывает существенное влияние на развитие микромицетов. Оценка возможности потребления различных источников углерода показала, что они способны утилизировать многие источники углеродного питания, но большинство из исследуемых видов не использовали опилки в качестве единственного источника углерода. Динамика роста видов на разных средах при одинаковых условиях инкубации, не одинакова.
3.1 Радиальная скорость грибов на модельных субстратах
В таблице приложения и на рисунках 1–2 приведены зависимости радиальной скорости роста от времени у изученных грибов на модельных источниках углерода.
|
лактоза |
|
|
ксилоза |
арабиноза |
|
галактоза |
мальтоза |
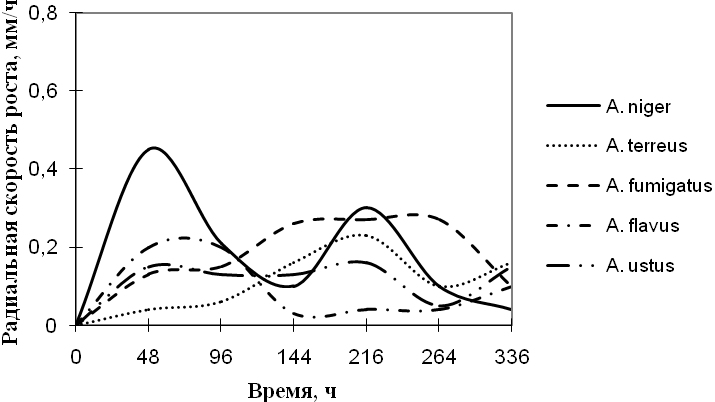
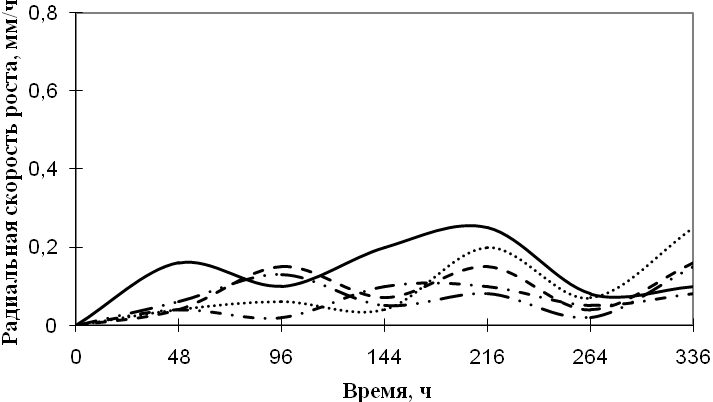
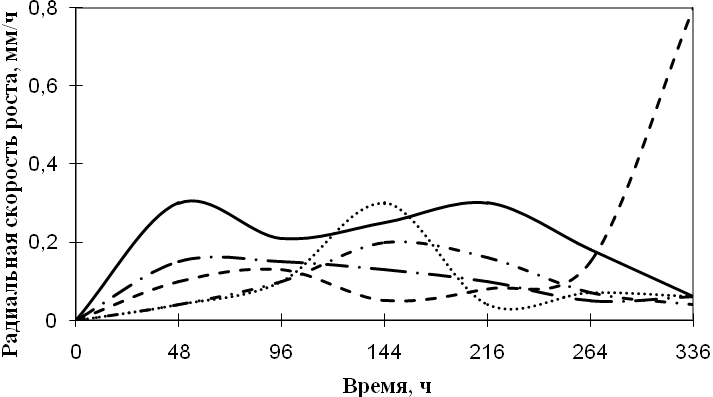
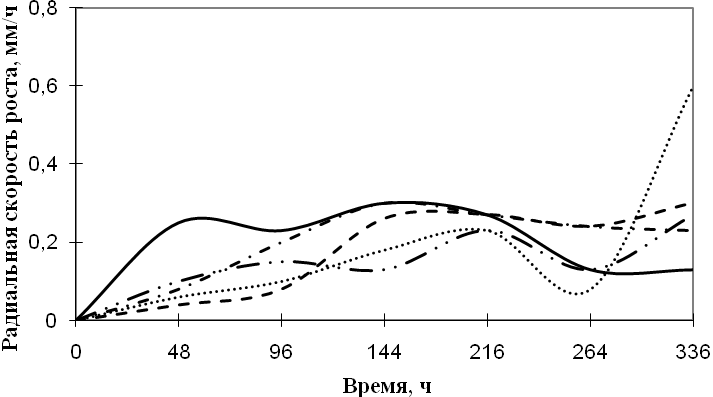
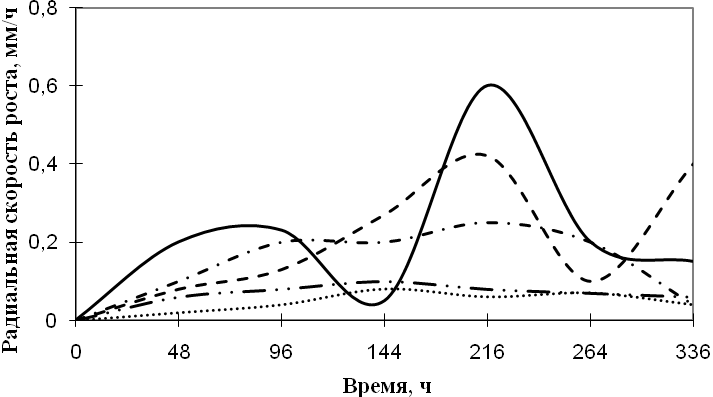
Рис. 1. Радиальная скорость роста микромицетов рода Aspergillus на сахарах
Уже на первые сутки культивирования A. niger хорошо развивается во всех средах, кроме среды с ксилозой. На среде с мальтозой с 144 ч экспозиции наблюдается стадия логарифмического роста, после 216 ч – фаза отмирания культуры. К концу времени инкубации скорость роста колоний уменьшается и становится почти одинаковой на всех средах.
В первые дни культивирования наибольшая скорость роста A. terreus наблюдается на средах с арабинозой и галактозой. В промежутке 96 – 144 ч экспозиции на среде с арабинозой длится логарифмическая фаза роста, затем скорость радиального роста колонии идет к убыванию. На 14-е сутки культивирования наблюдается резкий скачок в росте на среде с галактозой.
Наибольший рост A. fumigatus наблюдается на среде с мальтозой. До 96 ч культивирования радиальная скорость роста на всех средах была примерно одинаковой. Затем на среде с мальтозой наблюдается фаза логарифмического роста (144 – 216 ч), затем радиальная скорость роста уменьшается. После 264 ч экспозиции происходит резкий скачок радиальной скорости на среде с арабинозой. На остальных источниках углерода культура растет со средней скоростью роста.
A. flavus хорошо растет на среде с галактозой в течение всего времени экспозиции. На среде с лактозой до 72 ч наблюдается логарифмическая фаза интенсивного роста, затем происходит уменьшение радиальной скорости роста.
Скорости радиального роста A. ustus на всех источниках углеродного питания сильно не различаются. Небольшой скачок в росте наблюдается на среде с галактозой в промежутке 144 – 216 ч.
Таким образом, сахара легко усваиваются всеми исследуемыми штаммами. В среднем скорость радиального роста не превышает 0,4 мм/ч у всех исследуемых штаммов.
|
крахмал |
целлюлоза |
|
|
глицерин |
сорбит |
|
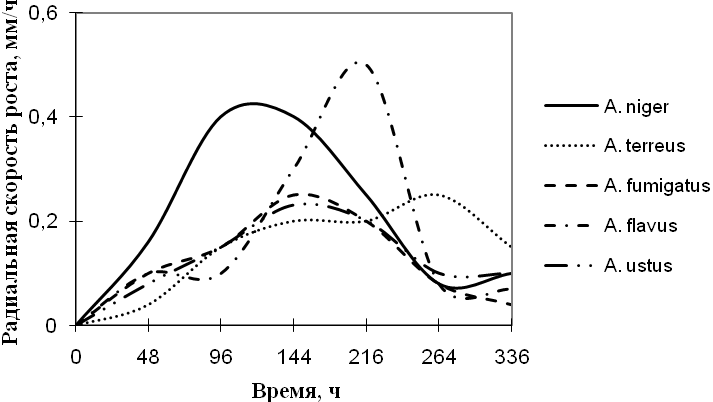
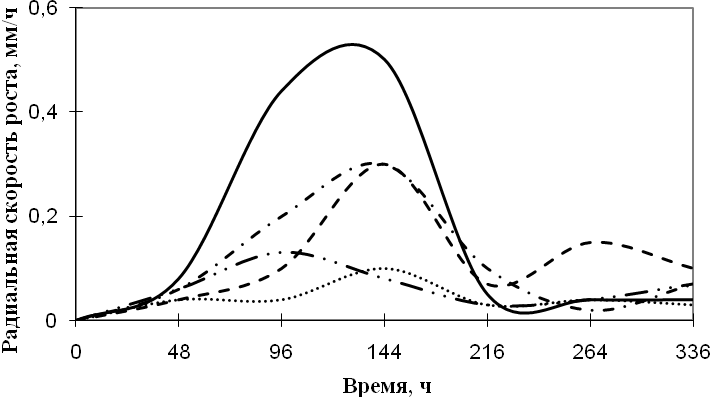
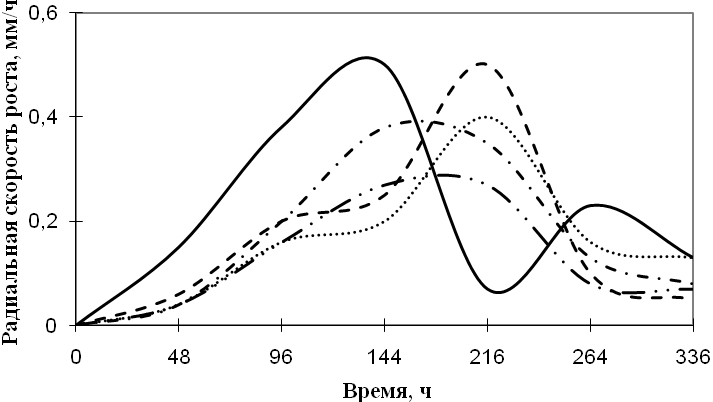
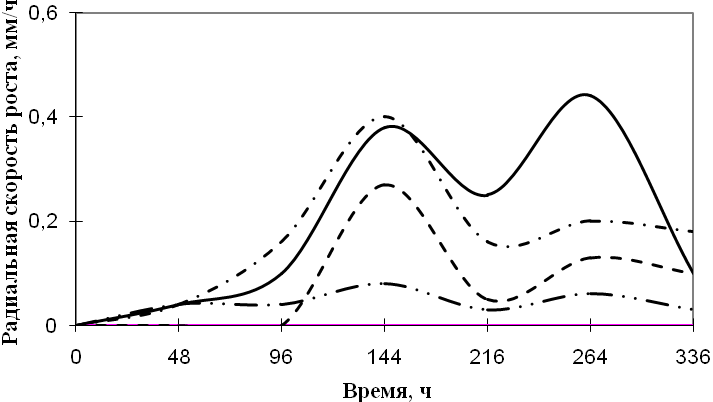
Рис. 2. Радиальная скорость роста микромицетов рода Aspergillus на других углеродсодержащих субстратах.
Наибольшая скорость роста A. niger наблюдается вначале культивирования на средах с целлюлозой и глицерином. На этих средах логарифмическая фаза роста приходится на 48 – 140 ч экспозиции, стационарная фаза отсутствует. Затем скорость роста на целлюлозе резко падает и становится минимальной на этой среде. На других источниках углерода также наблюдаются скачки роста, которые к концу инкубации заметно уменьшаются. На среде с крахмалом наблюдается логарифмическая фаза (48 – 96 ч), затем наступает стационарная фаза роста, после 144 ч радиальная скорость роста колонии уменьшается. На средах с целлюлозой, глицерином и сорбитом вид растет с 2-суточной периодичностью.
Рост A. terreus наблюдается на всех легкоусвояемых источниках углерода, кроме среды с сорбитом. Вначале и в конце культивирования радиальная скорость роста примерно одинаковая. На среде с целлюлозой наблюдается очень низкая скорость радиального роста. На глицерине с 144 ч по 216 ч времени культивирования длится фаза логарифмического роста, затем радиальная скорость роста колонии идет к падению.
По данным рисунка 2 видно, что рост A. fumigatus имеет большие скачкообразные изменения, особенно проявляющиеся на среде с глицерином. Наибольшая скорость роста проявляется на среде с глицерином. Рост на среде с сорбитом до 96 ч времени культивирования не наблюдается. В промежутке 96 – 144 ч на этой среде происходит фаза усиленного логарифмического роста, затем скорость роста уменьшается. На сорбите и целлюлозе культура развивается с 2-суточной периодичностью.
Радиальная скорость роста A. flavus вначале и в конце культивирования примерно одинаковая. В середине инкубации наблюдаются скачки роста, особенно на среде с крахмалом. Высокая скорость роста наблюдается на 144-264 ч. инкубации. На среде с сорбитом, целлюлозой и глицерине с 96 ч экспозиции наблюдается логарифмическая фаза роста, затем на глицерине наступает стационарная фаза (144 – 200 ч), после происходит уменьшение скорости радиального роста.
Наибольшая скорость роста A. ustus наблюдается на среде с глицерином. Скорость роста на среде с сорбитом и целлюлозой наименьшая и в течение всего времени культивирования значительно не изменяется.
В целом, рост микромицетов на многоатомных спиртах, целлюлозе и крахмале характеризуется высокими биологическими ритмами, приходящимися на середину времени культивирования – 144-264 ч.
Таким образом, при определении способности штаммов использовать различные модельные источники углерода, было выяснено, что на сахарах наибольшая скорость роста A. niger наблюдается на среде с мальтозой, A. terreus, A. fumigatus и A. ustus проявляют наибольшую скорость роста на средах с галактозой, а A. flavus – на среде с ксилозой. На крахмале, целлюлозе и многоатомных спиртах все исследуемые штаммы проявляли высокую скорость роста, за исключением A. terreus, рост которого на среде с сорбитом вообще не наблюдался.
В среднем скорость радиального роста на других модельных субстратах составляет 0,2 мм/ч. В целом все культуры растут по классической схеме: лаг-фаза (очень маленькая 2-3 ч) – экспоненциальная фаза – стационарная фаза (не на всех средах) – стадия отмирания.
3.2 Радиальная скорость роста грибов на естественных субстратах
На рисунке 3 приведены зависимости радиальной скорости роста от времени у исследуемых грибов на различных природных целлюлозных материалах.
|
листья |
|
|
камыш |
кора |
|
опилки |
сено |
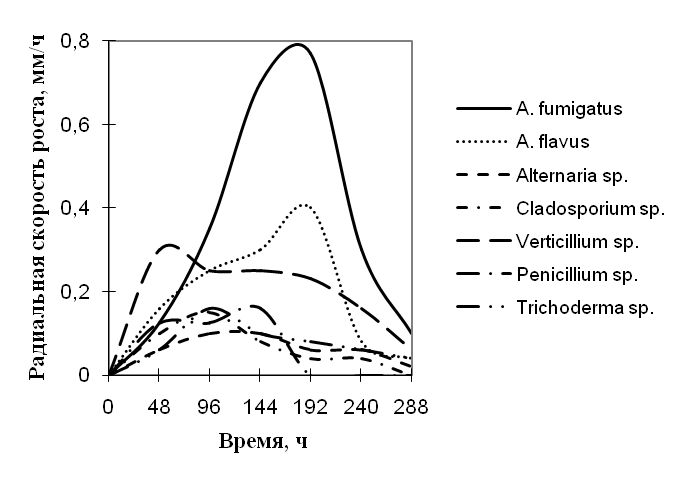
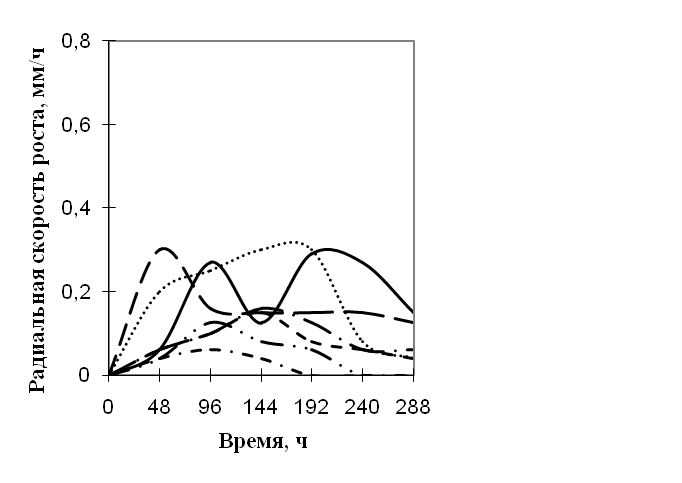
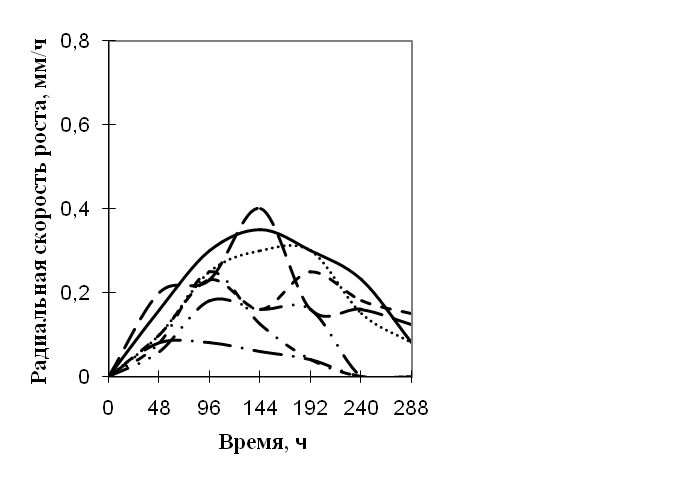
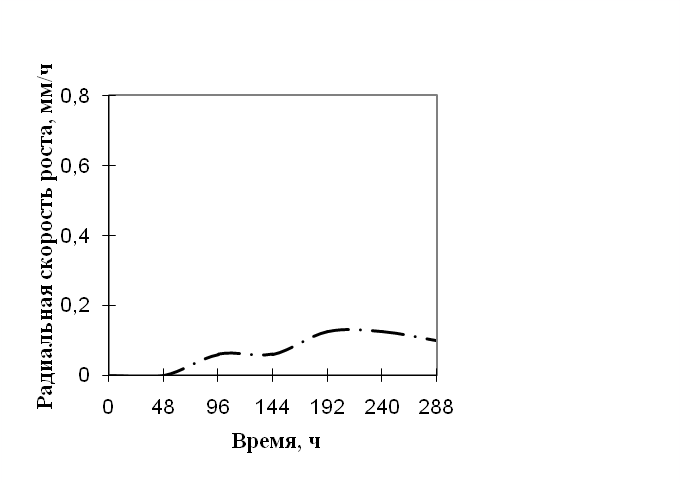
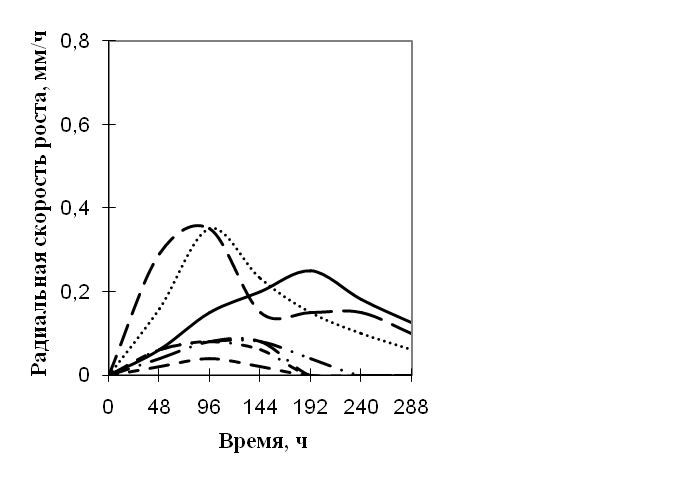
Рис. 3. Радиальная скорость роста микромицетов на природных субстратах
A. fumigatus развивается на всех источниках углерода с высокой скоростью роста, за исключением среды с опилками, на которой не проявляет признаков роста. До 96 ч экспозиции радиальная скорость роста на всех средах была примерно одинакова, затем на среде с листьями наблюдается логарифмического фаза инкубационного роста (в 4 раза по сравнению с другими средами) в интервале 144 – 192 ч. На остальных средах A. fumigatus растет примерно с одинаковой скоростью, но различались ритмичностью биоритмов. На среде с камышом имеет четкие 2-суточные ритмы. В промежутке 48 – 96 ч наблюдается логарифмическая фаза роста. Стационарная фаза роста отсутствует. С 96 ч на среде с камышом радиальный рост A. fumigatus уменьшается, происходит задержка роста и с 144 ч цикл повторяется. Биоритмы большей продолжительности (4-суточные) отмечены на средах с корой и сеном. Однако на среде с корой A. fumigatus обладает несколько большей скоростью роста. На этих средах происходит замедленная логарифмическая фаза роста, затем в промежутке 96 – 192 ч культура находится в стационарной фазе, и после 192 ч экспозиции скорость роста уменьшается. К 288 ч культивирования скорость радиального роста становится примерно одинаковой на всех средах. На контрольных средах A. fumigatus растет с меньшей скоростью роста, чем на средах, содержащих в качестве единственного источника углерода природные растительные материалы.
Радиальная скорость роста A. flavus на различных источниках углеродного питания значительно не изменялась. Фаза логарифмического роста на среде с сеном приходится на 48 – 96 ч времени экспозиции, затем скорость радиального роста уменьшается. На средах с листьями, камышом и корой наблюдается замедленная лог–фаза, пик которой приходится на 192 ч времени культивирования. Также, как и A. fumigatus, A. flavus не использует опилки в качестве единственного источника углерода. На средах с листьями и сеном вид растет с 2-суточной периодичностью. Биоритмы большей продолжительности (3,5 – 4-х суток) отмечены на средах с камышом и корой. До 96 ч культивирования A. flavus на контрольных средах растет с наименьшей скоростью радиального роста, затем в промежутке 96 – 144 ч происходит интенсивная лог–фаза, и после 144 ч – радиальный рост колонии уменьшается. На контрольных средах рост A. flavus максимальный в середине экспозиции.
По данным рисунка 3 видно, что Alternaria на среде, где в качестве единственного источника углерода присутствует кора, проявляет наибольшую скорость роста с биоритмами 2-ое суток. На этой среде интенсивная лог – фаза приходится на 48 – 96 ч, затем скорость роста уменьшается, и с 144 ч – цикл повторяется. На среде с сеном Alternaria развивается с очень низкой скоростью и уже к 192 ч экспозиции прекращает рост. На средах с листьями и камышом растет с одинаковой радиальной скоростью роста до 96 ч культивирования, после на среде с листьями наступает стационарная фаза. На среде с камышом происходит скачок роста примерно в 1,5 раза. С 144 ч радиальный рост колоний на средах с листьями и камышом уменьшается. На этих средах Alternaria проявляет замедленную ритмичность (более 2-х суток). На контрольных средах культура до 96 ч растет с низкой скоростью роста, на промежутке 96 – 144 ч наблюдается фаза логарифмического роста, затем радиальный рост штамма уменьшается.
Cladosporium sp. растет на среде с корой с наибольшей скоростью роста и с периодичностью 2-ое суток. С 48 ч наступает фаза интенсивного роста, после 96 ч экспозиции скорость роста убывает, и к 10-ти суткам культивирования рост на этой среде прекращается. На среде с листьями микромицет растет с меньшей ритмичностью (более 2-суточные биоритмы). До 96 ч происходит замедленная лог- фаза, стационарная фаза отсутствует, затем радиальный рост колонии на этой среде уменьшается. С наименьшей радиальной скоростью роста Cladosporium развивается на средах с камышом и сеном с биоритмами четверо суток и к 192 ч экспозиции наступает фаза отмирания культуры. На всех средах, за исключением контрольных рост штамма прекращается еще до 14 дней культивирования. На контролях 1 и 2 рост примерно одинаковый со средней скоростью роста.
Verticillium sp. на средах с листьями и камышом в начале культивирования растет с одинаковой скоростью роста с 2-суточными биоритмами. До 48 ч наблюдается фаза инкубационного роста, затем рост культуры идет к убыванию. С 96 ч до 192 ч экспозиции на этих средах происходит фаза стационарного роста, после рост колонии снова уменьшается. На среде с корой микромицет растет с наибольшей скоростью роста с периодичностью в 2-ое суток. На этой среде до 48 ч наблюдается лог – фаза, затем наступает стационарная фаза роста. После рост снова увеличивается в промежутке 96 – 144 ч, затем скорость роста падает. Примерно с такой же радиальной скоростью роста Verticillium растет на среде с сеном, но с замедленной ритмичностью (более 2-х суток). На контролях 1 и 2 рост Verticillium примерно одинаковый со средней скоростью роста. С 48 ч до 96 ч культивирования длится фаза интенсивного логарифмического роста, затем радиальный рост идет к уменьшению на среде контроль 2. С 96 ч на контроле 1, а с 144 ч на контроле 2 наступает стационарная фаза. После рост на этих средах увеличивается, и с 240 ч культивирования скорость роста идет к падению.
Penicillium sp. – единственный из исследуемых штаммов, использующий опилки в качестве единственного источника углерода. Рост начинается с 48 суток культивирования, и развивается на этой среде с более 2-суточной периодичностью. На средах с листьями и камышом микромицет растет с наибольшей радиальной скоростью роста и с 2-суточными биоритмами. К 192 ч экспозиции на среде с листьями рост прекращается, наступает фаза отмирания культуры, также как и на среде с сеном. Penicillium с наименьшей скоростью роста растет на средах с корой и сеном с ритмичностью в 2-ое суток. На контрольных средах рост максимальный, особенно на среде с сахарозой. На контроле 1 с 144 ч наблюдается фаза логарифмического роста, после 192 ч рост культуры заметно падает. На контрольной среде 2 штамм до 144 ч растет с низкой скоростью роста, затем наступает стационарная фаза, после 192 ч экспозиции радиальный рост колонии уменьшается.
Уже на первые сутки культивирования Trichoderma хорошо развивается на всех средах, кроме среды с опилками, на которой роста колонии не обнаружено. На средах с листьями, корой и камышом микромицет растет с 2-суточной периодичностью. На