тип хордовые. Общая характеристика и жизнедеятельность
Тазовый пояс состоит из трех типичных для наземных позвоночных парных костей: подвздошных, седалищных и лобковых. У многих видов эти кости срастаются в одну безымянную кость.
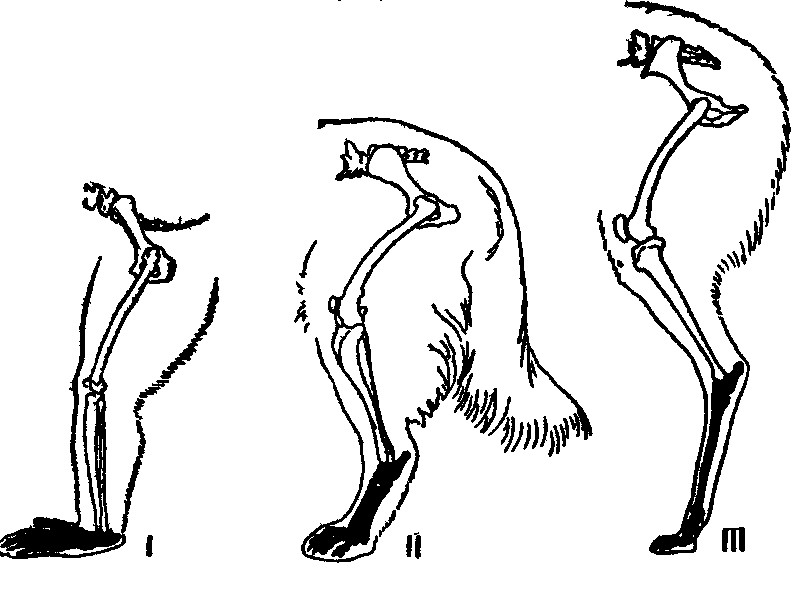
Рис.7. Задние конечности пальце- и стопоходящих млекопитающих.
Элементы стопы зачернены.
I – обезьяна павиан, II – собака, III – лама.
Скелет парных конечностей сохраняет все основные черты строения типичной пятипалой конечности. Однако в связи с разнообразием условий существования и характером использования конечностей детали их строения весьма различны (рис.7) У наземных форм значительно удлинены проксимальные отделы. У водных зверей, наоборот, эти отделы укорочены, а дистальные отделы — пясть, плюсна и особенно фаланги пальцев — сильно удлинены. Конечности в этом случае приращены в ласты, перемещающиеся относительно тела в основном как единое целое. Перемещение же отделов конечностей относительно друг друга развито сравнительно слабо. У летучих мышей только первый палец передних конечностей развит нормально, остальные пальцы очень сильно удлинены; между ними расположена кожистая перепонка, образующая основную часть поверхности крыла. У быстро бегающих зверей предплюсна, плюсна, запястье и пясть располагаются более или менее отвесно, и животные эти опираются только на пальцы. Таковы, например, собаки. У наиболее совершенных бегунов – копытных – сокращается число пальцев. Первый палец атрофируется, и животные ступают либо на одинаково развитые третий и четвертый пальцы, между которыми проходит ось конечности (парнокопытные), либо преимущественное развитие получает один третий палец, через который и проходит ось конечностей (непарнокопытные).
Укажем в этой связи максимальную скорость передвижения некоторых млекопитающих (в км/ч): короткохвостая землеройка – 4, красная полевка – 7, лесная мышь – 10, красная белка – 15, дикий кролик – 32-40, заяц – 55-72, красная лисица – 72, лев – 50, гепард – 105-112, верблюд – 15-16, африканский слон – 24-40, газель Гранта – 40-50.
Органы пищеварения характеризуются большой сложностью, которая выражается в общем удлинении пищеварительного тракта, в большей, чем у других позвоночных, его дифференцировке и в большей развитости пищеварительных желез.
Пищеварительный тракт начинается предротовой полостью или преддверием рта, расположенным между свойственными только млекопитающим мясистыми губами, щеками и челюстями. У ряда видов преддверие, расширяясь, образует большие защечные мешки. Так бывает у хомяков, бурундуков, обезьян. Мясистые губы служат для схватывания пищи, а преддверие рта – для временного ее резервирования. Так, хомяки и бурундуки переносят в защечных мешках запасы пищи в свои норы. Мясистых губ нет у однопроходных и китообразных.
За челюстями лежит ротовая полость, в которой пища подвергается механическому измельчению и химическому воздействию. У зверей имеются четыре пары слюнных желез, секрет которых содержит фермент птиалин, превращающий крахмал в декстрин и мальтозу. Развитость слюнных желез находится в известной зависимости от характера питания. У китообразных они практически не развиты; у жвачных, наоборот, они получили исключительно сильное развитие. Так, корова в сутки выделяет около 56 л слюны, которая имеет огромное значение для смачивания грубой пищи и для наполнения жидкой средой полостей желудка, где происходит бактериальное расщепление клетчатки пищевой массы.
Секрет щечных желез летучих мышей, наносимый на летательные перепонки, сохраняет их эластичность и предохраняет от высыхания. Слюна вампиров, питающихся кровью, обладает антикоагулирующими свойствами, т.е. предохраняет кровь от свертывания. Слюна некоторых землероек ядовита, секрет их подчелюстной железы вызывает смерть мыши менее через 1 мин после инъекции. Токсичность слюнных желез примитивных млекопитающих рассматривается как отражение их филогенетической связи с рептилиями.
Млекопитающие гетеродонтны, т.е. их зубы дифференцированы на резцы, клыки, предкоренные, или ложные коренные, и коренные. Число зубов, их форма и функция существенно различаются у разных групп зверей. Так, например мало специализированные насекомоядные обладают большим числом сравнительно слабо дифференцированных зубов. Для грызунов и зайцеобразных характерно сильное развитие одной пары резцов, отсутствие клыков и плоская жевательная поверхность коренных зубов. Такое строение зубной системы связано с характером питания: резцами они сгрызают или обгрызают растительность, а коренными зубами перетирают пищу, как жерновами. Хищные характеризуются сильно развитыми клыками, служащими для схватывания, а часто и для умерщвления добычи. Коренные зубы хищных имеют режущие вершины и плоские жевательные выступы. Задний ложнокоренной зуб верхней челюсти и первый истиннокоренной нижней челюсти у хищных обычно выделяются своей величиной; они носят название хищных зубов.
Общее число зубов и их распределение по группам для видов зверей вполне определено и постоянно и служит важным систематическим признаком.
Зубы сидят в ячейках челюстных костей, т.е. они текодонтные, и у большинства видов зверей меняются один раз в жизни (зубная система дифиодонтна).
Между ветвями нижней челюсти помещается мускулистый язык, служащий отчасти для схватывания пищи (бычьи, муравьеды, ящеры) и для лакания воды, отчасти для переворачивания пищи в полости рта во время ее пережевывания.
Позади ротовой области располагается глотка, в верхнюю часть которой открываются внутренние ноздри и евстахиевы трубы. На нижней поверхности глотки расположена щель, ведущая в гортань.
Пищевод хорошо выражен. Мускулатура его чаще гладкая, но у некоторых, например у жвачных, сюда проникает из глоточной области поперечнополосатая мускулатура. Эта особенность обеспечивает произвольное сокращение пищевода при отрыгивании пищи.
Желудок явственно обособлен от других отделов пищеварительного тракта и снабжен многочисленными железами. Объем желудка и его внутреннее строение различны у разных видов, что связано с характером пищи. Наиболее просто устроен желудок у однопроходных, у которых он имеет вид простого мешка. У большинства желудок разлен на большее или меньшее число отделов.
Усложнение желудка связано со специализацией питания, например поглощением огромной массы грубых кормов (жвачные), или недоразвитостью ротового пережевывания пищи (некоторые виды, питающиеся насекомыми). У некоторых южноамериканских муравьедов в выходной части желудка дифференцируется отдел с настолько твердыми складками, что они выполняют функцию зубов, перетирающих пищу.
Весьма сложно устроен желудок у жвачных копытных, например у коровы. Он состоит из четырех отделов: 1) рубца, внутренняя поверхность которого несет твердые вздутия; 2) сетки, стенки которой разделены на ячейки; 3) книжки со стенками, несущими продольные складки; 4) сычуга, или железистого желудка. Попавшие в рубец кормовые массы под влиянием слюны и деятельности бактерий подвергаются брожению. Из рубца пища благодаря перистальтическим движениям поступает в сетку, откуда путем отрыгивания она попадает снова в рот. Здесь пища размельчается зубами и обильно смачивается слюной. Получившаяся таким образом полужидкая масса заглатывается и по узкому желобку, соединяющему пищевод с книжкой, поступает в эту последнюю и далее сычуг.
Описанное приспособление имеет большое значение, так как пищей жвачных является трудноперевариваемая растительная масса, а в желудке у них живет огромное количество бродильных бактерий, деятельность которых существенно способствует перевариванию пищи.
Собственно кишечник подразделяется на тонкий, толстый и прямой отделы. У видов, питающихся грубым растительным кормом (например, у грызунов), на границе тонкого и толстого отделов отходит длинная и широкая слепая кишка, заканчивающаяся у некоторых зверей (например, зайцы, полуобезьяны) червеобразным отростком. Слепая кишка выполняет роль «бродильного чана» и развита тем сильнее, чем больше растительной клетчатки поглощает животное. У мышей, питающихся семенами и отчасти вегетативными частями растений, слепая кишка составляет 7-10% от общей длины всех отделов кишечника, а у полевок, кормящихся в большей мере вегетативными частями растений, - 18-27%. У плотоядных видов слепая кишка развита слабо или отсутствует.
В той же связи варьирует и длина толстого отдела кишечника. У грызунов он составляет 29-53%, общей длины кишечного тракта, у насекомоядных и рукокрылых – 26-30%, у хищных – 13-22. Общая длина кишечника варьирует очень сильно. Как правило, у растительноядных видов кишечник относительно более длинный, чем у всеядных и плотоядных. Так, у некоторых летучих мышей кишечник длиннее тела в 2,5 раза, у насекомоядных – в 2,5 – 4,2, у хищных – в 2,5 (ласка), в 6,3 (собака), у грызунов – в 5,0 (полуденная песчанка), в 11,5 (морская свинка), у лошади – в 12,0 у овцы – в 29 раз.
Характеризуя строение и функционирование пищеварительного тракта, коснемся вкратце проблемы обеспечения организма млекопитающих водой.
Многие виды хищников и копытных регулярно посещают водопой. Другие доволствуются водой, получаемой с сочной пищей. Однако, есть и такие, которые никогда не пьют и кормятся очень сухими кормами, например, многие пустынные грызуны. В этом случае основным источником водообеспечения служит вода, возникающая при обмене веществ, - так называемая метаболическая вода.
Метаболическая вода – один из обязательных продуктов обмена всех органических веществ в организме. Однако при метаболизме разных веществ образуется разное количество воды. Первое место занимают жиры. При использовании за сутки 1 кг жира образуется около 1 л воды, 1 кг крахмала – 0,5 л, 1 кг протеинов – 0,4 л (Шмидт-Нильсен).
Печень расположена под диафрагмой. Желтый проток впадает в первую петлю тонких кишок. В этот же отдел кишечника впадает проток и поджелудочной железы, которая расположена в складке брюшины.
Органы дыхания. Как и у птиц, посуществу единственным органом дыхания млекопитающих являются легкие. Роль кожи в газообмене незначительна: только около 1% кислорода поступает через кожные кровеносные сосуды. Сказанное понятно, если учесть, во-первых, ороговение эпидермиса и, во-вторых, ничтожную общую поверхность кожи сравнительно с суммарной дыхательной поверхностью легких, которая в 50-100 раз больше, чем поверхность кожи.
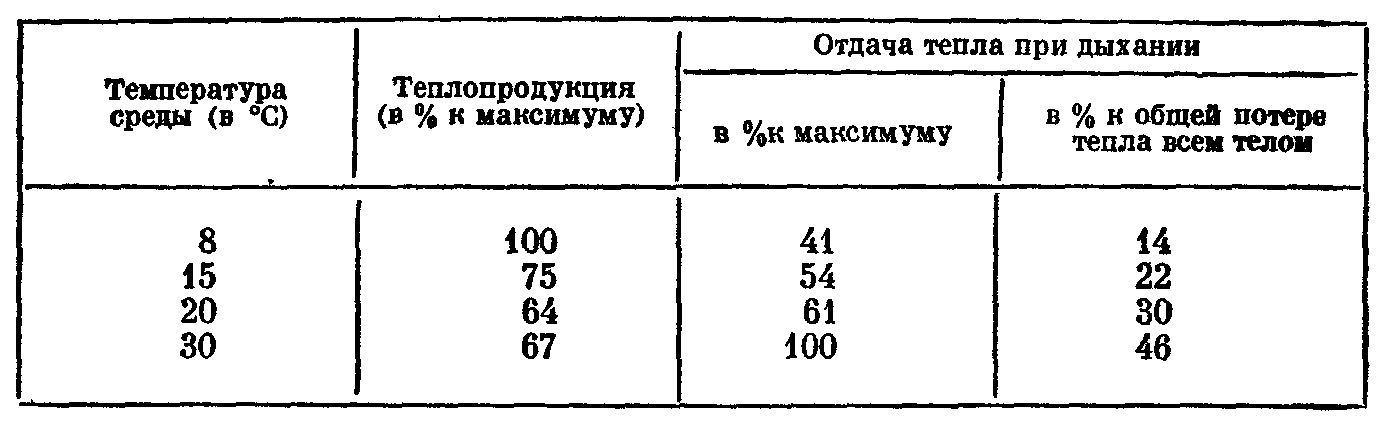
Характерно усложнение верхней гортани (рис.8). В основании ее лежит кольцеобразный перстневидный хрящ; передняя и боковые стенки гортани образованы свойственным только млекопитающим щитовидным хрящом. Над перстневидным хрящом по бокам спинной стороны гортани находятся парные черпаловидные хрящи. К переднему краю щитовидного хряща примыкает тонкий лепесткообразный надгортанник. Между перстневидным и щитовидным хрящами расположены небольшие мешковидные полости – желудочки гортани. Голосовые связки в виде парных складок слизистой оболочки гортани лежат между щитовидными и черпаловидными хрящами. Трахея и бронхи хорошо развиты. В области легких бронхи делятся на большое число мелких веточек. Самые мелкие веточки – бронхиолы – заканчиваются пузырьками – альвеолами, имеющими ячеистое строение (рис.9). Здесь ветвятся кровеносные сосуды. Число альвеол огромно: у хищных их 300-500 млн., у малоподвижных ленивцев – около 6 млн. В связи с возникновением альвеол образуется огромная поверхность для газообмена. Так, например, общая поверхность альвеол у человека равна 90 м2. При расчете на единицу дыхательной поверхности (в см2) приходится у ленивца 6 альвеол, у кошки домашней – 28, у домовой мыши – 54, у летучей мыши – 100.
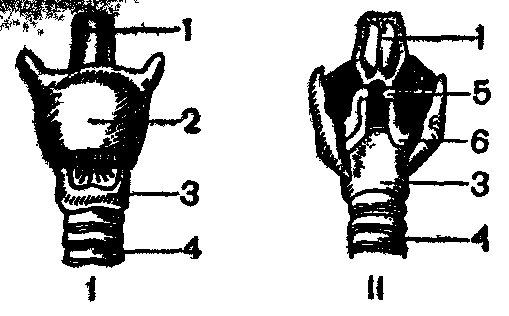
Рис.8. Гортань кролика
Обмен воздуха в легких обусловлен изменением объема грудной клетки, возникающим в результате движения ребер и особой, куполообразно вдающейся в грудную полость мышцы – диафрагмы. Число дыхательных движений зависит от величины животного, что связано с различием в интенсивности обмена веществ.
Вентиляция легких не только обуславливает газообмен, но и имеет существенное значение для теплорегуляции. Особенно это характерно для видов со слаборазвитыми потовыми железами. У них охлаждение тела при его перегревании в значительной мере достигается повышением испарения воды, пары которой выводятся вместе с выдыхаемым из легких воздухом (так называемое полипное).
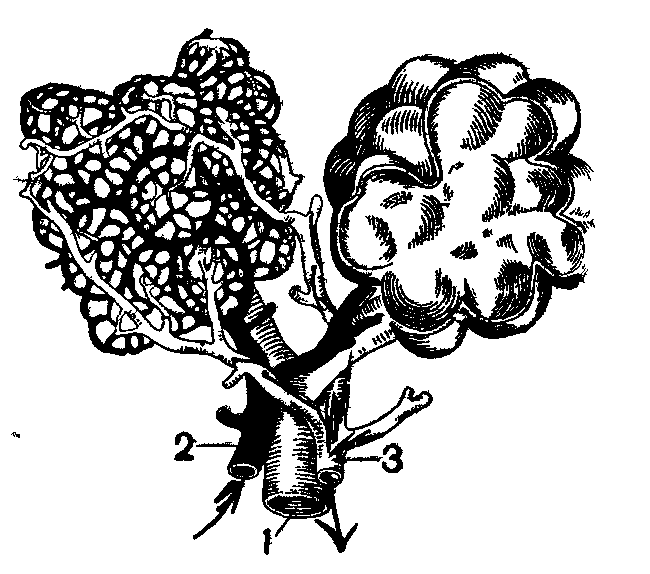
Рис.9. Схема строения легочных пузырьков млекопитающего
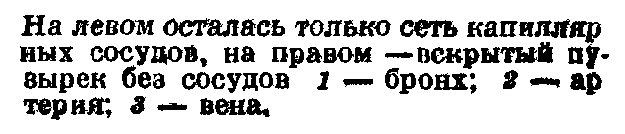
Таблица 1. Потребление кислорода млекопитающими разных размеров
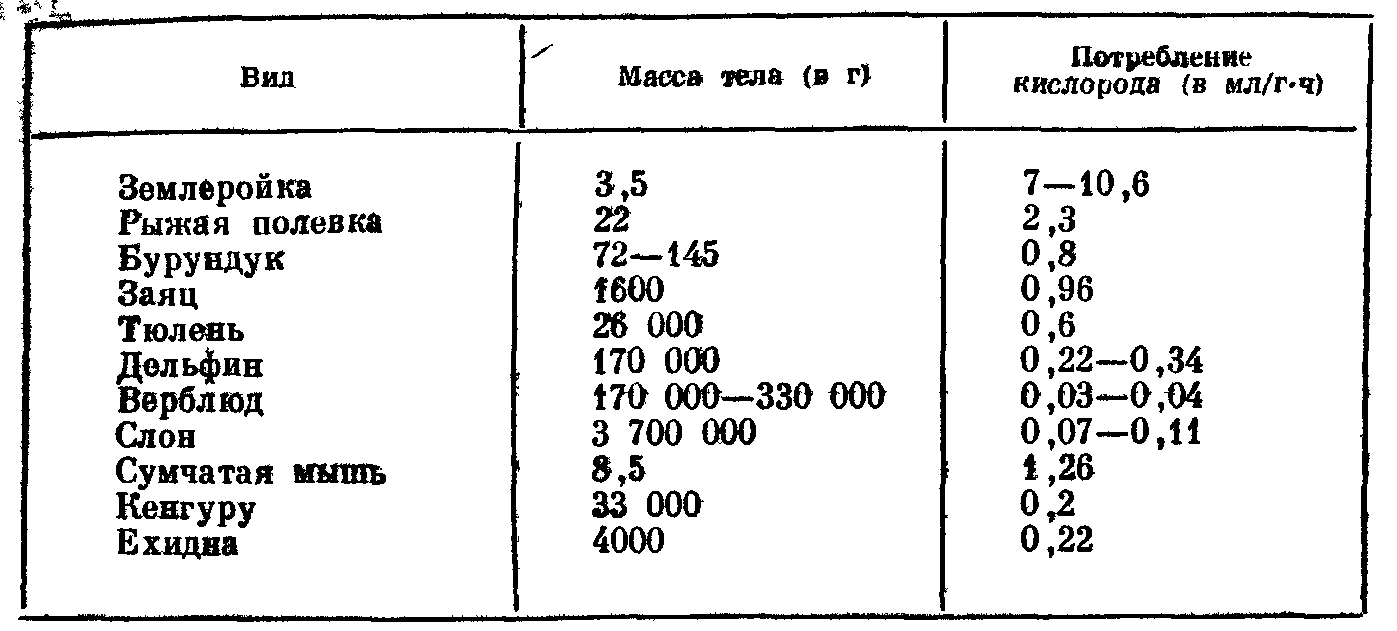
Таблица 2. Частота дыхания в 1 мин у млекопитающих в зависимости от
температуры среды
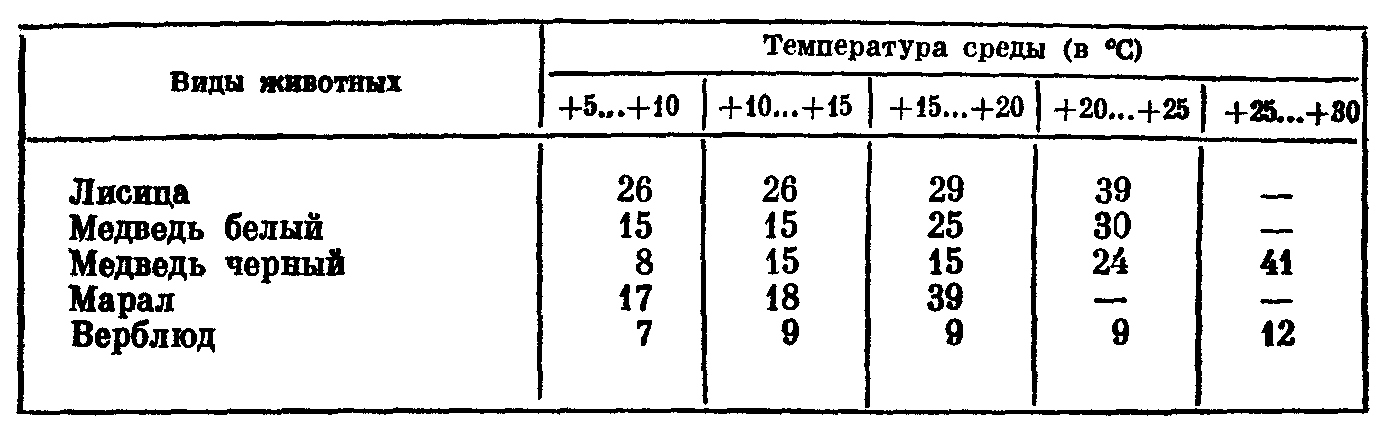
Таблица 3. Значение полипное для теплоотдачи у собаки
Кровеносная система (рис.10). Как и у птиц, имеется только одна, но не правая, а левая дуга аорты, отходящая от толстостенного левого желудочка. Главные артериальные сосуды отходят от аорты различно. Обычно от аорты отходит короткая безымянная артерия, которая делится на правую и подключичную артерию, правую и левую сонные артерии, левая же подключичная артерия отходит самостоятельно от дуги аорты. В других случаях левая сонная артерия отходит не от безымянной артерии, а самостоятельно от дуги аорты. Спинная аорта, как и у всех позвоночных, лежит под позвоночным столбом и отдает ряд ветвей к мускулатуре и внутренним органам.
Для венозной системы характерно отсутствие воротного кровообращения в почках. Левая передняя полая вена лишь у немногих видов впадает в сердце самостоятельно; чаще она сливается с правой передней полой веной, которая и изливает всю кровь от переднего отдела тела в правое предсердие. Весьма характерно наличие остатков кардицальных вен – так называемых непарных вен. У большинства видов такая правая непарная вена самостоятельно впадает в переднюю полую вену, а левая непарная вена утрачивает связь с полой веной и через поперечную вену впадает в правую непарную вену (Рис.10).
Относительные размеры сердца различны у видов с разным образом жизни и в конечном счете с различной интенсивностью обмена веществ.
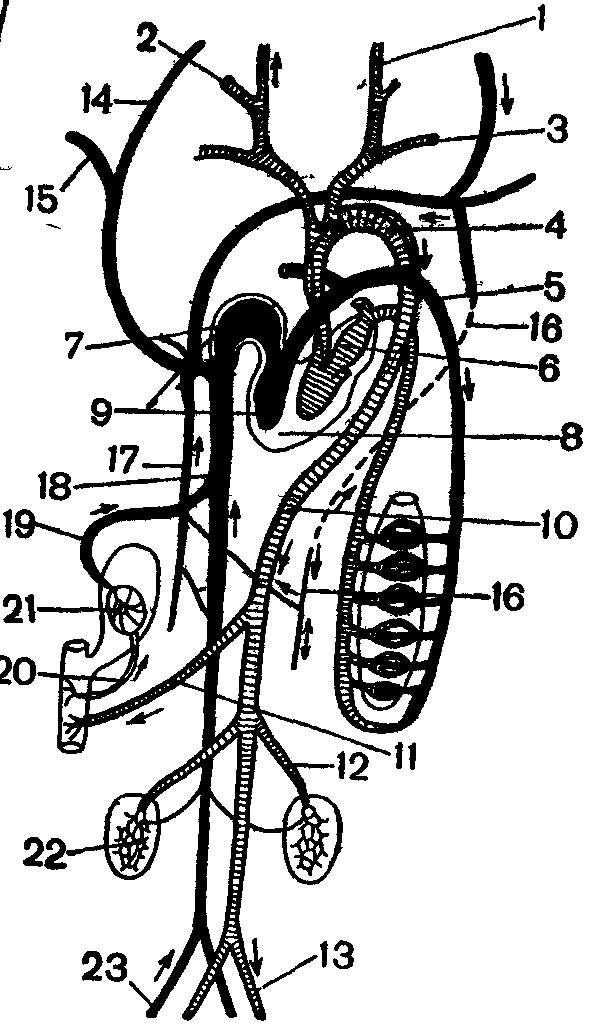
Рис.10. Схема строения кровеносной системы млекопитающих
Общее количество крови у млекопитающих больше, чем у позвоночных нижестоящих групп. Выгодно отличается кровь млекопитающих и по ряду ее биохимических свойств, отчасти связанных с безъядерностью эритроцитов.
Млекопитающие обладают не только относительно большим количеством крови, но, что еще важнее всего, большей ее кислородной емкостью. В свою очередь это связано с большим числом эритроцитов и большим количеством гемоглобина.
Своеобразные приспособления возникают при водном образе жизни, когда возможность атмосферного дыхания периодически прерывается. Это выражается, с одной стороны, в резком увеличении количества связывающего кислород глобина в мышцах (миоглобина) – около 50 50 всего глобина организма. Кроме того, у надолго погружающихся в воду зверей отключается периферическое кровообращение и на одном и том же уровне остается кровообращение мозга и сердца.
Нервная система. Головной мозг (рис. 11) характеризуется относительно очень крупными размерами, что обуславливается увеличением объема полушарий переднего мозга и мозжечка.
Развитие переднего мозга выражается в основном в разрастании его крыши – мозгового свода, а не полосатых тел, как у птиц. Крыша переднего мозга формируется путем разрастания нервного вещества стенок боковых желудочков. Образующийся мозговой свод носит название вторичного свода или неопаллиума; он состоит из нервных клеток и безмякотных нервных волокон. В связи с развитием коры мозга серое мозговое вещество у млекопитающих расположено поверх белого вещества. В коре мозга расположены центры высшей нервной деятельности. Сложное поведение млекопитающих, сложные реакции их на различные внешние раздражения прямым образом связаны с прогрессивным развитием коры полушарий переднего мозга. Кора обоих полушарий связана комиссурой из белых нервных волокон, так называемым мозолистым телом.
Отношение массы полушарий переднего мозга к массе всего головного мозга различно у млекопитающих разных систематических групп. У ежей оно равно 48, у белок – 53, у волков – 70, у дельфинов – 75%.
Кора переднего мозга у большинства видов не гладкая, а покрыта многочисленными бороздами, увеличивающими площадь коры. В простейшем случае имеется одна сильвиева борозда, отделяющая лобную долю коры от височной доли. Далее появляется поперечно идущая роландовая борозда, отделяющая сверху лобную долю от затылочной. У высших представителей класса число борозд велико. Промежуточный мозг сверху не виден. Эпифиз и гипофиз невелики.
Для среднего мозга характерно подразделение его двумя взаимно перпендикулярными бороздами на четыре бугра. Мозжечок велик и дифференцирован на несколько отделов, что связано с очень сложным характером движений у зверей.
Органы чувств. Обонятельные органы развиты у млекопитающих очень сильно и играют в их жизни огромную роль. При помощи этих органов млекопитающие опознают врагов, отыскивают пищу, а также и друг друга. Многие виды чувствуют запахи за несколько сот метров и способны обнаруживать пищевые объекты, находящиеся под землей. Только у полностью водных зверей (китов) обоняние редуцировано. Тюлени же обладают очень острым обонянием.
Прогрессивное развитие описываемых органов выражается в основном в увеличении объема обонятельной капсулы и в ее усложнении путем образования системы обонятельных раковин. У некоторых групп зверей (сумчатые, грызуны, копытные) имеется обособленный отдел обонятельной капсулы, открывающийся самостоятельно в небно-носовой канал, так называемый якобсонов орган, который уже был описан в главе о рептилиях.
Орган слуха в подавляющем большинстве случаев развит очень сильно. В состав его, кроме внутреннего и среднего уха, имеющихся и у нижестоящих классов, входят еще два новых отдела: наружный слуховой проход и ушная раковина. Последняя отсутствует только у водных и подземных зверей (киты, большинство ластоногих, слепыши и некоторые другие). Ушная раковина существенно усиливает тонкость слуха. Особенно сильно она развита у ночных зверей (летучие мыши) и у лесных копытных, пустынных собачьих и некоторых других.
Внутренний конец слухового прохода затянут барабанной перепонкой, за которой лежит полость среднего уха. В последней у млекопитающих находится не одна слуховая косточка, как у амфибий, рептилий и птиц, а три. Молоточек (гомолог сочленовной кости) упирается в барабарную перепонку, к нему подвижно прикреплена наковальня (гомолог квадратной кости), которая в свою очередь сочленена со стремечком (гомолог гиомандидуляре), а это последнее упирается в овальное окно перепончатого лабиринта внутреннего уха. Описанная система обеспечивает значительно более совершенную передачу звуковой волны, уловленной ушной раковиной и прошедшей по слуховому проходу к внутреннему уху. В строении последнего обращает внимание сильное развитие улитки и наличие кортиева органа – тончайших волокон, которые в числе нескольких тысяч натянуты в канале улитки. При восприятии звука эти волокна резонируют, чем обеспечивается более тонкий слух зверей.
У ряда животных обнаружена способность к звуковой локации (эхолокации).
Органы зрения в жизни млекопитающих имеют значительно меньшее значение, чем у птиц. Но неподвижные предметы они обычно не обращают внимания, и к стоящему человеку могут вплотную подойти даже такие осторожные звери, как лисицы, зайцы, лоси. Острота зрения и развитие глаз, естественно, различны и связаны с условиями существования. Особенно большие глаза имеют ночные звери и животные открытых ландшафтов (например, антилопы). У лесных зверей зренее менее острое, а у подземных глаза редуцированы и иногда затянуты кожистой перепонкой (слепыш, слепой крот).
Аккомодация у млекопитающих происходит только путем изменения формы хрусталика под действием ресничной мышцы. У мелких грызунов (полевки, мыши) способности к аккомодации практически нет, что связано с преимущественно ночной активностью и незначительностью обзора.
Цветное зрение у млекопитающих развито сравнительно с птицами слабо. Почти весь спектр способны различать лишь высшие обезьяны восточного полушария. Европейская рыжая полевка различает только красный и желтый цвета. У опоссума, лесного хоря и ряда других видов цветное зрение вообще не обнаружено.
Характерной особенностью органов осязания млекопитающих является наличие осязательных волос, или вибрисс.
Выделительная система. Почки у млекопитающих тазовые. Туловищные почки у млекопитающих являются эмбриональным органом и в последующем редуцируются. Метанефрические почки млекопитающих представляют компактные, обычно бобовидной формы органы. Поверхность их чаще гладкая, иногда бугорчатая (жвачные, кошки), и только у некоторых (например, у китообразных) почки разделены перехватами на доли.
Основной конечный продукт белкового обмена у млекопитающих (как и у рыб и амфибий), в отличие от рептилий и птиц, не мочевая кислота, а мочевина.
Такой тип белкового обмена у млекопитающих несомненно возник в связи с наличием плаценты, через которую развивающийся эмбрион может получать в неограниченном количестве воду из крови матери. С другой стороны, через посредство плаценты (точнее, системы ее кровеносных сосудов) из развивающегося эмбриона могут также неограниченно выводиться токсические продукты белкового обмена.
В мозговом слое находятся прямые собирательные канальцы, которые концентрируются в группу и открываются на конце сосочков, выдающихся в почечную лоханку. От почечной лоханки отходит мочеточник, впадающий у огромного большинства видов в мочевой пузырь. У однопроходных мочеточник впадает в мочеполовой синус, из которого он попадает в мочевой пузырь. Из мочевого пузыря моча выводится по самостоятельному мочеиспускательному каналу.
Выделительную систему частично выполняют и потовые железы, через которые выводятся растворы солей и мочевины. Этим путем выводится не более 3% азотистых продуктов белкового обмена.
Органы воспроизведения (рис.11). Половые железы самца – семенники – имеют характерную овальную форму. У однопроходных, некоторых насекомоядных и неполнозубых, у слонов и китообразных они в течение всей жизни находятся в полости тела. У большинства других зверей семенники первоначально располагаются в полости тела, но по мере полового созревания они опускаются вниз и попадают в особый расположенный снаружи мешочек – мошонку, сообщающуюся с полостью тела паховым каналом. К семеннику прилегает вытянутое по его оси зернистое тело – придаток семенника, морфологически представляющий клубок сильно извитых семявыводящих каналов семенника и гомологичный переднему отделу туловищной почки. От придатка отходит гомологичный вольфову каналу парный семяпровод, которые впадает у корня полового члена в мочеполовой канал, образуют парные компактные тела с ребристой поверхностью – семенные пузыри. У млекопитающих они представляют железу, секрет которой принимает участие в образовании жидкой части спермы; кроме того, он обладает клейкой консистенцией и благодаря этому служит, видимо, для предотвращения вытекания спермы из половых путей самки.
У основания полового члена лежит вторая парная железа – предстательная, протоки которой впадают также в начальную часть мочеполового канала. Секрет предстательной железы представляет основную часть жидкости, в которой плавают выделенные семенниками сперматозоиды. В итоге сперма, или эйякулят, представляет комбинацию жидкости, выделенной предстательной железой и семенными пузырями (и некоторыми другими железами), и самих сперматозоидов.
На нижней стороне совокупительного члена располагается упомянутый уже мочеполовой канал. Вверх и по бокам от этого канала лежат пещеристые тела, внутренние полости которых во время полового возбуждения наполняются кровью, в результате чего половой член становится упругим и увеличивается в размерах. У многих млекопитающих прочность полового члена обуславливается еще особой длинной костью, расположенной между пещеристыми телами. Таковы хищные, ластоногие, многие грызуны, некоторые летучие мыши и др.

Рис.11. Мочеполовые органы крысы (I – самца, II – самки)
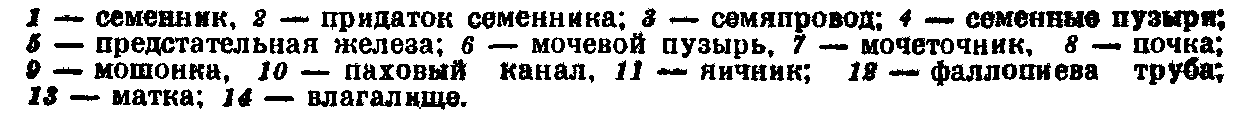
Парные яичники всегда лежат в полости тела и прикреплены к спинной стороне брюшной полости брыжейками. Парные яйцеводы, гомологичные мюллеровым каналам, открываются передними совими концами в полость тела в непосредственной близости от яичников. Здесь яйцеводы образуют широкие воронки. Верхний извитой отдел яйцеводов представляет фаллопиевы трубы. Далее идут расширенные отделы – матки, которые открываются в непарный у большинства зверей отдел – влагалище. Последнее переходит в короткий мочеполовой канал, в который, кроме влагалища, открывается мочеиспускательный канал. На брюшной стороне мочеполового канала располагается небольшой вырост – клитор, обладающий пещеристыми телами и соответствующий пенису самца. Любопытно, что у некоторых видов в клиторе имеется кость.
Строение женских половых путей существенно различается у разных групп млекопитающих. Так, у однопроходных яйцеводы на всем протяжении парные и дифференцированы только на фаллопиевы трубы и матки, которые самостоятельными отверстиями открываются в мочеполовой синус. У сумчатых обособляется влагалище, но часто оно остается парным. У плацентарных влагалище всегда непарное, а более верхние отделы яйцеводов в той или иной степени сохраняют парный характер. в простейшем случае матка парная и левый и правый ее отделы открываются во влагалище самостоятельными отверстиями. Такая матка называется двойной; она свойственна многим грызунам, некоторым неполнозубым. Матки могут быть соединены только в нижнем отделе – двураздельная матка некоторых грызунов, летучих мышей, хищников. Слияние значительной части левой и правой маток приходит к образованию двурогой матки хищных, китообразных, копытных. Наконец, у приматов, полуобезьян и некоторых летучих мышей матка непарная – простая, и парными остаются только верхние отделы яйцеводов – фаллопиевы трубы.
Плацента. Во время развития эмбриона в матке млекопитающих формируется крайне характерное для них образование, известное под названием детского места или плаценты (рис.12). Только у однопроходных плацента отсутствует. У сумчатых есть зачатки плаченты. Плачента возникает путем срастания наружной стенки аллантоиса с серозой, в результате чего формируется губчатое образование – хорион. Хорион образует выросты – ворсинки, которые соединяются или срастаются с разрыхленным участком эпителия матки. В этих местах кровеносные сосуды детского и материнского организмов сплетаются (но не сливаются), и таким образом устанавливается связь между кровяными руслами эмбриона и самки. В результате этого обеспечивается газообмен в теле зародыша, его питание и удаление продуктов распада.
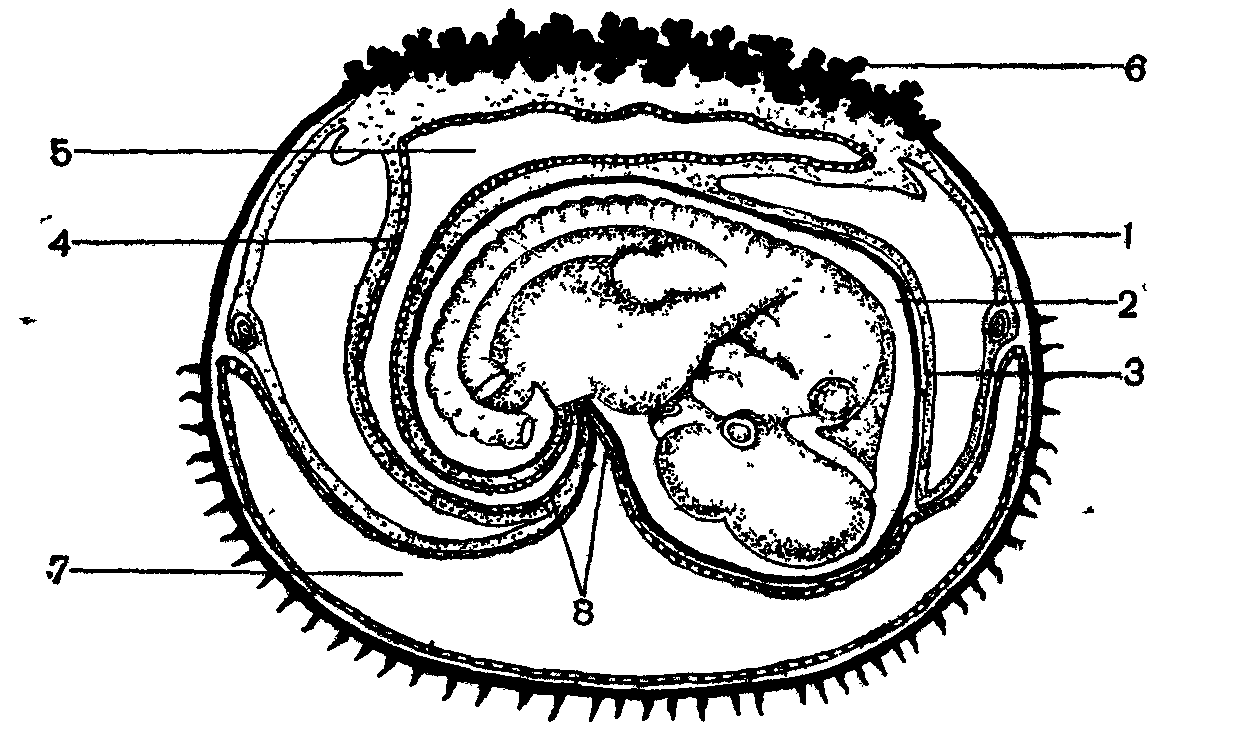
Рис.12. Зародыш кролика в конце двенадцатого дня

Плацента свойственная уже сумчатым млекопитающим, хотя у них она еще примитивная; ворсинок в хорионе не образуется, и имеется, как у яйцеживородящих низших позвоночных, связь между кровеносными сосудами матки и желточного мешка (так называемая «желточная плацента»). У высших плацентарных зверей хорион всегда образует выросты – ворсинки, соединяющиеся со