Липиды центральной нервной системы и структура клеточных мембран
Катионный основной белок миелина с Мг ~1б~18кД является исключительно белком миелина и локализован в зоне главного периода. Он содержит 170 а.о., из них 30% заряженных и 52% гидрофобных. КБМ характеризуется несколькими необычными особенностями.
КБМ – антиген, индуцирующий при введении со стимуляторами иммунитета экспериментальный аллергический энцефаломиелит, заболевание, сходное с рассеянным склерозом и сопровождающееся демиелинизацией. Установлено, что трип-тофансодержащий декапептид КБМ–Phe-Ala-Ser-Trp-Gly-Ala-Glu-Gly-Glu-Arg близок по энцефалитогенной активности целому КБМ человека. Описаны и некоторые другие олигопептидные участки КБМ, обладающие несколько меньшим, но четким энцефалитогенным действием. По-видимому, внемозговые системы иммуногенеза воспринимают КБМ или его фрагменты как чужеродный белок. В норме КБМ с ними не взаимодействует в силу иммуноавтономности ЦНС. Какие-то, пока неясные повреждения, нарушая эту автономию, открывают путь этим взаимодействиям и обусловливают «агрессию» иммунной системы организма в отношении собственного миелина.
КБМ может гликолизироваться по треонину-981Ч-ацетил-галактозаминилтрансферазой и в отличие от других белков миелина может фосфорилироваться по некоторым остаткам серина, треонина, аргинина и гистидина. Фосфорилирование основного белка рассматривается как инициация миелиниза-ции.
Основной белок, связывая кластеры кислых липидов через полярные группы, изменяет упаковку ацилов в области полярных группировок и не оказывает существенного эффекта на центр бислоя. Этот белок изменяет энтальпию Т-фазового перехода кислых липидов и проницаемость бислоя, Липидный состав мембраны определяет, какие участки основного белка будут экранированы липидной фазой, а какие – экспонированы в водную фазу. Таким образом, от липидного состава мембраны зависит, будет ли антигенная или энцефалитегенная сторона подвержена атаке антителами и макрофагами. Этим, видимо, объясняется варьирование энцефалитогенных участков основного белка от вида к виду.
Электростатическое и гидрофобное взаимодействие основного белка с липидами близлежащих слоев, так же как и в случае липофилина, создает межламеллярные взаимодействия и поддерживает адгезию миелиновых слоев, стабилизируя многослойную структуру миелина.
Для понимания молекулярной организации мембраны миелина критическим является изучение коротко- и длинноради-усных взаимодействий между белками и липидами. Несомненно, что изменение структуры белков или липидов ведет к изменению такого рода взаимодействий и приводит к нестабильности миелина, в том числе к демиелинизации.
Пока мало известно о факторах, начинающих и заканчивающих образование миелиновых мембран. Возможно, что миели-низация запускается критическим диаметром аксона или каким-то нейротропным фактором. В этом строго контролируемом и синхронизированном процессе большую роль играют контакты между мембранами аксона и олигодендроглии.
Ранний, рыхлый, некомпактный миелин морфологически отличается от зрелого миелина наличием остатков цитоплазмы между слоями. Пластинчатые структуры рыхлого миелина химически сходны с плазматической мембраной олигодендроцита и не имеют физических свойств компактного миелина. Для превращения рыхлого миелина в компактный мозг 20-дневной крысы ежедневно синтезирует 3,5 мг миелина, т.е. каждый олигодендроцит производит миелина в 3 раза больше своей массы.
Компактность миелина увеличивается по мере включения основного и протеолипидного белков, холестерина, длинноцепочечных галактолипидов, плазмалогенов и, соответственно, по мере уменьшения доли высокомолекулярных белков, десмостерола, исчезновения полисиалоганглиозидов.
Мало известно о месте синтеза белков миелина, их транспорте и модификации перед сборкой, их деградации. Скорее всего, протеолипидный белок синтезируется на мембранносвязанных, а основной – на свободных рибосомах. Белки вступают в зреющую мембрану раньше липидов. В период активной мие-линизации катионный и протеолипидный белки активнее вступают в миелин, чем высокомолекулярные белки.
Зрелый миелин – не инертная структура, он биохимически активен, включает экзогенный материал, обменивает свои компоненты с другими мембранами. Миелин не обменивается как единое целое, поскольку различные белки и липиды покидают миелин и появляются в нем с различной скоростью. Наблюдаемая метаболическая стабильность компонентов миелина частично объясняется топографическими особенностями миелиновой оболочки. Одна глиальная клетка одновременно «одевает» миелином 30–50 сегментов аксонов и создает мембрану, которая в 620 раз больше ее собственной. Метаболизм этой обширнейшей мембраны поддерживается цитоплазмой всего одной клетки.
Для нормального функционирования необходимы определенные соотношения и взаимодействия аксона, миелиновой оболочки и глии. Любое повреждение одного из этих элементов нарушает всю систему. Так, например, метахроматическая лейкодистро-фия характеризуется почти полным отсутствием фермента суль-фатазы, что приводит к резкому накоплению сульфатидов и сопровождается недостатком миелина.
Глобоидно-клеточная лейкодистрофия сопровождается дефектом фермента fi-галактозидазы. Избыток цереброзидов накапливается в многоядерных глобоидных клетках, обычное отношение цереброзидов к сульфатидам 4:1 трансформируется в 10:1. Наблюдается резкое изменение белого вещества, недостаточность миелина и олигодендроглии.
Болезнь Рефсума характеризуется недостаточностью а-гидро-ксилазы фитановой кислоты. Накапливающаяся фитановая кислота эстерифицирует лецитин миелина и составляет 5–8% от всех жирных кислот миелина.
Общей чертой вышеприведенных заболеваний является искажение структуры миелина, уменьшение отношения липидов к белку, снижение количества холестерина, плазмалогенов, га-лактолипидов, увеличение количества воды и постепенная замена миелина астроцитами, макрофагами и межклеточной жидкостью.
Важным путем в изучении процесса демиелинизации является исследование мутантов с нарушенным или ограниченным образованием миелина.
Jumpy-мутанты – это аугосомальное рецессивное заболевание мышей, характеризующееся почти полным отсутствием миелина.
Quaking-мугаюы – рецессивное заболевание мышей, сцепленное с полом, характеризующееся некомпактностью миелина и нарушением дифференциация олигодендроглии. У этого вида мышей резко уменьшен уровень основных липидов миелина, особенно трифосфоинозитидов, изменен жирнокислотный состав.
8. ЛИПИДЫ ВНЕШНЕЙ ЗОНЫ МЕМБРАН МОЗГА
В последние десятилетия для выяснения природы возбудимости мембран нейрона обратили внимание на экстраклеточную зону. Эта зона, так называемый гликокаликс или экстраклеточный матрикс, занимающий слой толщиной от 10 до 50 нм, влияет на многие макромолекулярные процессы: ионный обмен, проницаемость, эндо- и экзоцитоз, межклеточные контакты, морфогенетическую и тканеспецифическую агрегацию клеток.
Поверхностный матрикс содержит внешние компоненты рецепторов гормонов, медиаторов, ростовых факторов, нейро-пептидов, антигенов и других факторов. Экстраклеточный матрикс – комплексная, динамичная интегративная система, в которой изменение взаимодействия отдельных компонентов приводит к глубоким изменениям матрикса в целом.
Специфичность экстраклеточного матрикса определяется:
1) первичной структурой олигосахаридной части гликопро-теинов, гликолипидов, гликозаминогликанов;
2) их конформацией и положением на плоскости мембраны;
3) «удельной» площадью, занимаемой гликопротеинами и гликолипидами.
Состав, структура и динамизм поверхностных гликозилиро-ванных молекул влияют на функции деления, роста, дифференциацию и гибель клетки. Особая роль принадлежит при этом гликолипидам и в особенности кислым гликолипидам – ганг-лиозидам.-
Ганглиозиды – специфические липиды экстраклеточного матрикса мембран мозга
Кислые гликолипиды – ганглиозиды находятся в нервной ткани в высоких концентрациях и обогащают поверхность наиболее возбудимых мембран.
Термин ганглиозиды – общее название гликосфинголипи-дов, содержащих сиаловую кислоту, был впервые предложен Е. Кленком в 1941 г. Они содержат гидрофобную церамидную часть и гидрофильную, богатую заряженными группами олигосахаридную часть. Ниже приводится структура моносиалоганглиозида головного мозга:
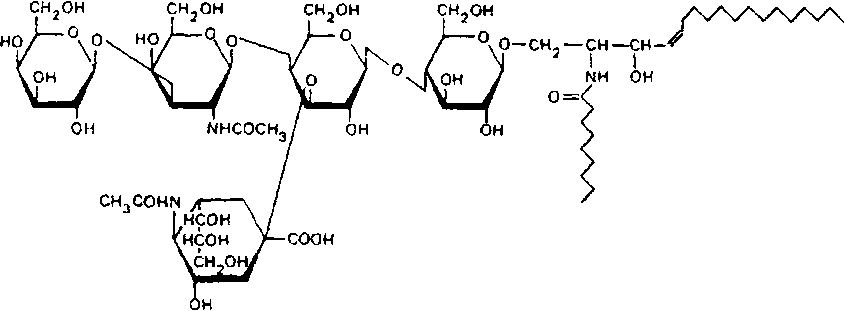
Гидрофобная часть ганглиозидов включает две длинные углеводородные цепочки – сфингозин и жирную кислоту, которая связана с аминогруппой сфингозина пептидной связью. Обращает на себя внимание почти полное отсутствие в ганглиозидах мозга гидроксикислот, кетокислот и разветвленных жирных кислот. Состав сфингозиновых оснований ганглиозидов головного мозга не отличается большим разнообразием. Структура и недавно принятая номенклатура сфингозиновых оснований ганглиозидов представлены в табл. 8.
Содержание ганглиозидов в тканях человека
|
Ткани |
Концентрация* |
|
Серое вещество мозга |
2850–3530 |
|
Белое вещество мозга |
900–1570 |
|
Серое вещество спинного мозга |
751 |
|
Белое вещество спинного мозга |
450 |
|
Сетчатка |
366 |
|
Седалищный нерв |
259 |
|
Надпочечники |
407–757 |
|
Печень |
2J4 |
|
Мышцы |
52 |
|
Плазма |
п, з |
|
Спинномозговая жидкость |
0,841 |
* Концентрация выражена в н-молях липидосвязанной сиаловой кислоты – характерного компонента ганглиозидов – на 1 г свежей ткани
Структура и номенклатура сфингозиновых оснований ганглиозидов
|
Тривиальное название |
Структура |
Новое название |
|
Сфингозин |
СНэ-12-СН=СН-СН-СН-СНгОН ОН NH2 |
4-Сфингенин |
|
Дигидросфингозин |
СН3-12-СН2-СНа-СН-СН-СН2ОН ОН NH2 |
Сфинганин |
|
См-Сфингозин |
СНэ-14-СН=СН-СН-СН-СН2ОН ОН NH2 |
4-Эйкозасфинге-нин |
|
С^-Дигидросфин – гозин |
СН,-14-СНг-СН2-СН-СН-СН2ОН ОН NH2 |
Эйкозасфинганин |
Таким образом, гидрофобная часть ганглиозидов мозга млекопитающих достаточно консервативна по длине, числу и месту двойных связей, присутствию метальных групп. Й хотя ганглиозиды из различных источников отличаются по составу церамидной части, но эти различия никогда не рассматриваются как характерная особенность для классификации ганглиозидов.
Разветвленная олигосахаридная часть присоединена $-связью к ОН-группе первого атома углерода сфингозина. Большинство ганглиозидов мозга имеют общую нейтральную углеводную часть, содержащую глюкозу, две молекулы галактозы, ацетилированный галактозамин и различное число молекул сиаловой кислоты, прикрепленных либо к интернальной, либо к терминальной галактозе.
Олигосахаридная часть является доминирующей в проявлении физических, химических и иммунологических свойств молекул ганглиозидов. Различие в строении олигосахаридной части порождает исключительную гетерогенность этих соединений, которых к настоящему времени в нервной ткани млекопитающих охарактеризовано свыше 50, причем число это быстро возрастает.
Особенности строения олигосахаридной части индивидуальных ганглиозидов – важнейшая характеристика, которая дает основу для существующей номенклатуры ганглиозидов. Единства в системе обозначений индивидуальных ганглиозидов среди исследователей нет, но все же чаще всего используется и наиболее удобна номенклатура, предложенная Свеннерхольмом. Согласно ей, все индивидуальные ганглиозиды делятся на моно-, ди-, три-, тетра- и пентасиалоганглиозиды по числу молекул N-ацетилнейраминовой кислоты, приходящихся на цера-мидный остаток.
Свеннерхольм предложил буквой G обозначать ганглиозиды; подстрочными буквами М, D, Т, Q и Р – число молекул NAHK; цифрой 1 – основную нейтральную тетрасахаридную цепочку; цифрой 2 – олигосахаридную последовательность без терминальной галактозы; цифрой 3 – цепочку, не имеющую терминальной галактозы и N-ацетилгалактозамина; цифрой 4 – цепочку с единственным углеводов; а буквами «а», «в» и «с» – разное число молекул NAHK, связанных с интернальной галактозой.
Предложенная Свеннерхольмом номенклатура не охватывает, однако, всех открытых в последнее десятилетие индивидуальных ганглиозидов с очень разнообразной структурой олигосахаридной цепочки. Недавно описаны гекса- и декасиалоганглиозиды, имеющие, соответственно, от 6 до 10 сиаловых кислот на церамидный остаток.
В настоящее время Международной комиссией по номенклатуре предложена новая система обозначения индивидуальных ганглиозидов, в которой учитывается структура олигосахарид-ной части, число молекул N-ацетил- или гликолилнейрамино-вых кислот, место и способ их присоединения к олигосахариду. В этой номенклатуре N-ацетилнейраминовая кислота получает обозначение NeuAc, гликолилнейраминовая – NeuGc, римские цифры I, II, III и IV – указывают номер сахарного остатка от церамида, к которому присоединена нейраминовая кислота, арабская цифра вверху обозначает атом углерода сахарного остатка, к которому присоединена нейраминовая кислота кетозидной связью. Структура трисахарида обозначается как GgOse3, структура тетрасахарида – GgOse4. Тогда, например, структура моно-сиалоганглиозида будет записана как IINeuAc-GgOse4Cer,
В силу большей, чем у фосфолипидов, гидрофобное™ углеводородных цепочек ганглиозиды увеличивают жесткость би-липидного слоя и гидрофобно взаимодействуют с фосфолипидами и интегральными белками мембраны.
■ Увеличение числа углеводородных атомов и ненасыщенности сфингозина, изменение природы жирной кислоты ганглиозидов вызывают конформационные изменения в близлежащих белках. Церамидная часть участвует в обеспечении определенного состава фосфолипидно-холестерин-белкового окружения индивидуальных ганглиозидов.
8.1 Локализация ганглиозидов в головном мозге
Ганглиозиды обнаружены фактически в каждом типе клеток и большинстве субклеточных образований ЦНС,
На долю собственно митохондрий приходится менее 5% ганглиозидов, на долю миелина – 28,5, а на нервные окончания – более 67%. Основным местом локализации ганглиозидов являются синаптические мембраны, которые составляют примерно 6% сухой массы мозга, причем обнаружена корреляция между накоплением ганглиозидов и синаптогенезом во время формирования мембран. Использование специальных методов показало, что ганглиозиды расположены на наружной стороне пре- и постси-наптических терминалей, принимающих непосредственное участие в передаче нервного импульса.
■ Ганглиозиды имеют отношение не только к синаптиче-ским контактам, но локализованы и в других типах нейрональ-ных и глиальных мембран, о чем свидетельствуют различия в содержании и составе ганглиозидов в различных областях мозга.
8.2 Организация ганглиозидов в мембране
Молекулярная организация ганглиозидов в мембране очень динамична, что создает, с одной стороны, некоторую локальную неустойчивость мембраны, а с другой – поддерживает ее целостность. Молекулы ганглиозидов не подвержены флип-флопу, но способны к латеральной диффузии с широко варьирующей скоростью.
Несмотря на большую подвижность ганглиозидов, они не вносят хаотичность в распределение компонентов мембраны. Это достигается, во-первых, образованием горизонтальных связей между олигосахаридными цепочкам гликопротеинов и гли-колипидов, приводящих к устойчивому полимерному комплексу. Во-вторых, гликолипиды и гликопротеины могут сцепляться периферическими гликозаминогликанами, которые, как правило, не закреплены в интегральной зоне мембраны, свободно диффундируют и взаимодействуют с гликолипидами и глико-протеинами ионными и водородными связями, образуя своеобразный латекс. В-третьих, ограничение латерального движения гликолипидов достигается сосредоточением их в определенных областях с повышенной вязкостью. В-четвертых, топографию поверхности стабилизируют цитоскелетные системы клетки.
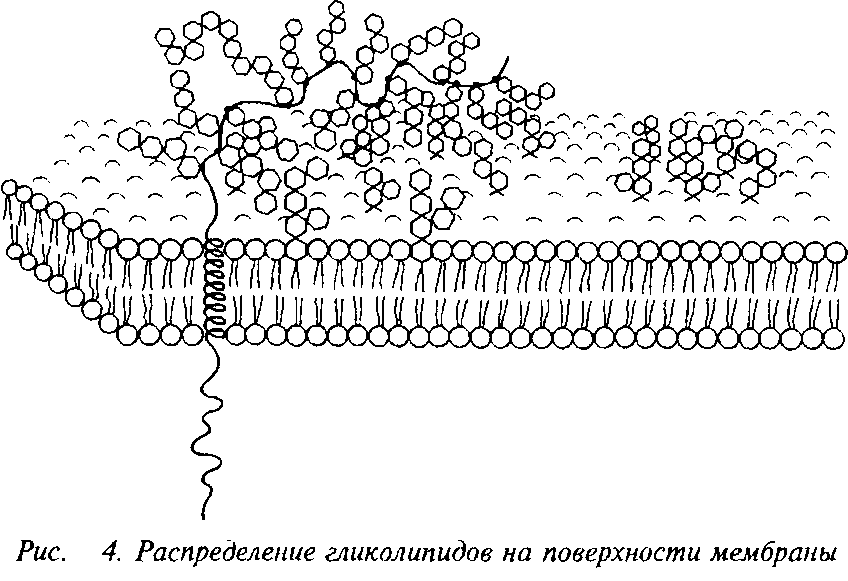
Различные поливалентные лиганды гликопротеиновой природы с помощью цитоскелетной системы вызывают в мембранах перераспределение гликолипидов в группы, участки, полюса. Степень агрегации зависит от степени взаимодействия олигосахаридных структур с лектинами, причем один и тот же агент может вызывать агрегацию одних молекул в группы, а других – в полюса.
Как правило, большие плотные массы олигосахаридных цепочек гликопротеинов служат фокусной точкой, вокруг которой увеличивается степень упаковки ганглиозидов. Нековалент-ное кооперативное взаимодействие ганглиозидов приводит к тому, что в участках скопления ганглиозидов резко возрастает отношение ганглиозидов к фосфолипидам. В результате возникают весьма сложные эффекты. Жидкостность в этих локусах становится ниже, ганглиозидные кластеры приобретают максимальную нестабильность из-за взаимного отталкивания отрицательно заряженных сиаловых кислот, мембранный потенциал в этом локусе становится максимальным.
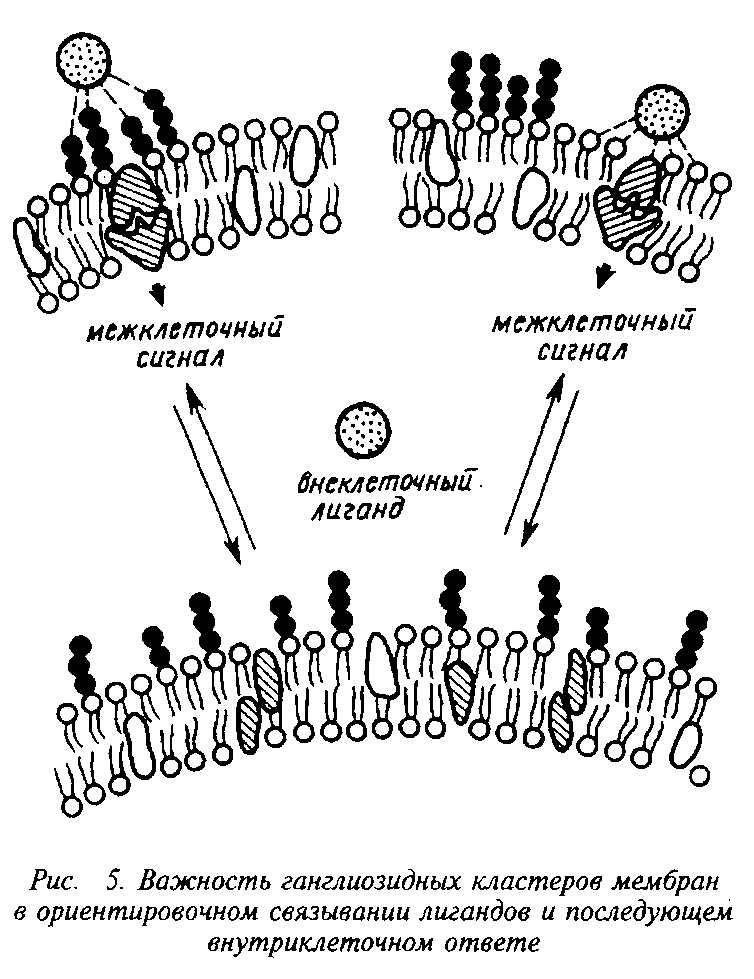
Участки, занятые заряженными ганглиозидными молекулами, имеют повышенное сродство к водорастворимым, экзогенным лигандам, а области, свободные от ганглиозидов, осуществляют гидрофобное взаимодействие с лигандами другой природы. Оба рода взаимодействия вызывают кооперативные и некооперативные структурные перестройки в мембране, оказывают разнообразные влияния на состояние клетки.
Агрегация ганглиозидов и гликопротеинов на поверхности важна для поддержания контактов между клетками, поскольку конгломераты молекул обеспечивают более устойчивые контакты, чем молекулы, случайно или дисперсно разбросанные на поверхности. Подобные агрегаты могут содержать различные рецепторы или несколько копий одного рецептора, или составлять единый рецепторный комплекс, состоящий из гликолипидов и гликопротеинов,
■ Таким образом, зона, где происходит кодирование и декодирование информации, передача ее внутрь клетки и где реализуется прямая и обратная связь с ядром, представляет собой обширную систему перекрестносвязанных гетерогенных гликозилированных молекул. Эта область является своеобразным распределительным щитом регуляторных сигналов, в котором молекулы ганглиозидов могут выполнять роль триггеров, регуляторов или трансдукторов, функции сигнальных молекул на стадии дифференциации и участвовать в определении видовой и тканевой специфичности.
8.3 Ганглиозиды и передача информации через мембраны
Ганглиозиды участвуют в модулировании рецепторных функций.
Диапазон рецепторных свойств ганглиозидов широк: они связывают токсины, вирусы, медиаторы и гормоны. Есть данные о том, что ганглиозиды потенциируют действие нейроро-стового фактора и участвуют в рецепции интерферона.
Из всего множества индивидуальных ганглиозидов только для девяти строго доказана специфичность связывания. Это прежде всего моносиалоганглиозид GMI, который высокоспецифично взаимодействует с холерным токсином, дофамином, тиротропином; а также пента-, тетра-, три- и дисиалоганглиозиды – компоненты рецепторного комплекса для токсинов, вирусов, гормонов, и дисиалоганглиозид GD3, который в эквимолекулярных соотношениях соединяется с серотонином.
Сродство ганглиозидов головного мозга к различным лигаидам
|
Лиганлы |
Ганглиозид, обладаюший преимущественным сродством к лиганлу |
|
Холерный токсин |
GMi' GDlb |
|
Столбнячный токсин |
GQIb> GDlb* GTlb |
|
Ботулинический токсин |
GTIb |
|
Токсин Е. coli |
GM1 |
|
Вирус Сендай |
GPi> GQlb> GTla |
|
Вирус гриппа |
GTlb> GDlb |
|
Дофамин |
GM1 |
|
Серотонин |
GD3 |
|
Интерферон |
GM2> GT1 |
|
Тиротропин |
GTlb> GDlb> GM1 |
|
Лютеотропин |
GTlb> GDib |
|
Гонадотропин |
GTlb |
|
Фибронектин |
GTh GDlo |
Взаимодействие ганглиозидов с холерным токсином привлекает особое внимание, что обусловлено широким использованием его для изучения механизмов действия нейрорецепторов. В настоящее время наиболее изучен механизм взаимодействия холерного токсина с моносиалоганглиозидом GM1. Некоторое функциональное значение в опосредовании действия холерного токсина, кроме G^, имеет дисиалоганглиозид GDIfcr Установлено, что взаимодействие между ними модифицирует структуру холерного токсина и нарушает бислой мембраны. Олигосахаридная часть моносиалоганглиозида GM1 связывается с узнающей молекулой холерного токсина – протомером В, что вызывает увеличение локальной плотности ганглиозидов, их ми-целлообразование. Мицеллы ганглиозидов взаимодействуют с регуляторной единицей холерного токсина – протомером А. Этот протомер А обладает АДФ-рибозилирующей активностью. В результате АДФ-рибозилирования компонентов некоторых из так называемых медленных рецепторов происходит активация аде-нилатциклазы.
Мицеллы ганглиозидов способствуют погружению нротоме-ра А в липидную фазу и транслокации протомера А внутрь клетки. Чем выше концентрация ганглиозидов и мицеллообразова-ние, тем выше рибозилтрансферазная активность протомера А. Ганглиозиды в немицеллярной форме не способны «погрузить» протомер А в мембрану.
■ Мицеллообразование ганглиозидов способствует, таким образом, реорганизации липидного слоя, причем это свойство зависит от структуры комплекса токсин-ганглиозид.
8.4 Участие ганглиозидов в дифференциации клеток
Была предложена модель клеточного цикла, в которой кроме стадии покоя G0, неустойчивой и регулируемой циклическими нуклеотидами, постулируется стадия D-дифференциации, контролируемая ганглиозидами. По мере формирования ней-рон-нейрональных взаимодействий меняется структура и количество ганглиозидов и увеличивается число высокоаффинных контактов.
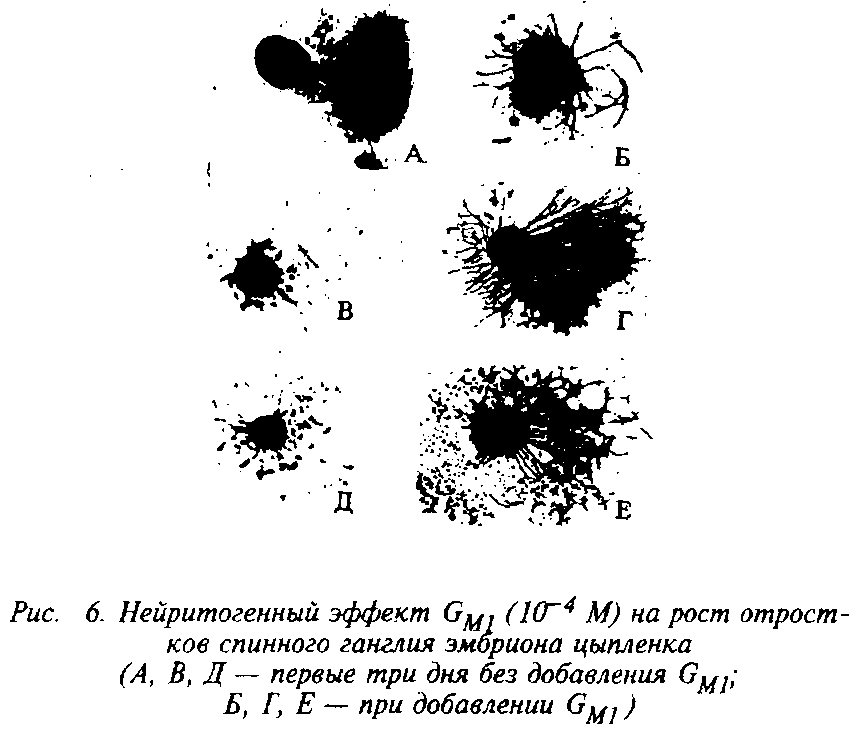
Участвуя в дифференциации клеток, ганглиозиды увеличивают время выживания клеток и вызывают морфологические изменения клеток, проявляя нейритогенный эффект. Нейритогенный эффект экзогенных ганглиозидов обнаружен в культурах клеточных линий нейронального и хромаффинного происхождения, в симпатических и парасимпатических ганглиях и в нервно-мышечных препаратах.
На рис. 6 представлен нейритогенный эффект моносиалоганглиозида GMI в концентрации 10~М на рост отростков спи-нального ганглия эмбриона цыпленка. Экзогенные ганглиозиды оказывают влияние на протяженность отростков, их число на клетку и на разветвленность отростков. Интересно, что моносиалоганглиозид GM1 вызывает только увеличение длины аксонов, а три- и тетрасиалоганглиозиды в тех же концентрациях усиливают спрутинг и арборизацию.
8.5 Терапевтические эффекты ганглиозидов
Ганглиозиды in vivo обладают уникальными свойствами: при введении в организм подкожно, внутримышечно или интраперитонеально они относительно длительное время сохраняются в кровяном русле, лишены токсичности, в небольших количествах проникают через гемато-энцефалический барьер и активно встраиваются в нейрональные мембраны. Они способствуют репарации поврежденных аксонов, обладают выраженными терапевтическими эффектами при травмах головного и спинного мозга.
В настоящее время наиболее изучена молекулярная и биологическая роль в этих процессах моносиалоганглиозида GM1, который при введении in vivo:
а) восстанавливает нейрохимические параметры дофаминер-гических нейронов после нарушения нигростриатной системы, усиливает захват дофамина и активность ирозингидроксилазы;
б) восстанавливает нейрохимические характеристики при частичной холинергической и глутаматергической деафферен-тации гиппокампа, увеличивает активность холинацетилтрансферазы и ацетилхолинэстеразы;
в) восстанавливает высокоаффинный захват холина в коре больших полушарий после нарушений ядер переднего мозга;
г) нормализует дисбаланс между активностью дофамин- и серотонинергических нейронов, вызванный введением апомор-фина;
д) оказывает рост-стимулирующий эффект и защитное действие против вторичной дегенерации серотонин- и норадре-нергических нейронов, вызванной нейротоксинами;
е) уменьшает церебральный отек и восстанавливает ионный баланс после травмы;
ж) способствует регенерации зрительного нерва после перерезки.
С другой стороны, введение антител к GM] вызывает у развивающихся животных нарушение дендритной арборизации и поведения, ухудшение обучаемости, появление эпилептиформ-ной активности.
Моносиалоганглиозид GM1 хорошо внедряется в мембраны, причем особенно хорошо встраивается молекула GMI, имеющая в своем составе С 2о-эритросфингозин. Возможно, это объясняется его более высокой способностью к мицеллообразованию. Он образует дископодобные мицеллы с М^ЗОО кД, имеющие гидродинамический диаметр около 60 нм.
Интересно, что мицеллы из моносиалоганглиозида GMI по-тенциируют действие ионофора грамицидина D. Ганглиозид-ные мицеллы с заключенными в них молекулами грамицидина включаются в модельную мембрану из фосфатидилсерина и изменяют ее проводимость для ионов калия. После добавления мицелл с ионофором увеличивается время открытия ионных каналов и изменяется их амплитуда.
■ Таким образом, ганглиозидные мицеллы могут участвовать в ионтранспортном процессе в мембране, «маркируя» входы в селективные ионные каналы,
О механизмах и функциональной последовательности действия ганглиозидов известно мало. Встраивание экзогенных ганглиозидов, приводящее к перестройке мембранных ансамблей, изменяет ряд внутриклеточных процессов. Вызванная ганглиозидами дифференциация сопровождается изменением активности Na5K-ATOa3bi, увеличением внутриклеточного уровня цАМФ, уменьшением включения меченого тимидина в ДНК и значительным удлинением фазы G( клеточного цикла. Внедрение ганглиозидов вызывает немедленную перестройку мик-рофиламентной и микротубулиновой системы клеток.
Включение в мембрану экзогенных ганглиозидов усиливает аксональный ток гликозилированных белков и липидов, увеличивает количество гликопротеинов с терминальной манно-зой. Внедрение моносиалоганглиозида GM1 увеличивает в мембране количество эндогенных моносиалоганглиозидов и изменяет активность гликозилтрансфераз: усиливается активность эктофукозилтрансферазы при неизменности активностей сиалил-и галактозилтрансфераз. Внедрение в мембрану трисиалоганг-лиозида GTlb вызывает противоположный эффект.
Недавно выявлено влияние индивидуальных ганглиозидов на фосфорилирование гистона Hj и тубулина, причем в отношении фосфорилирования гистона были особенно эффективны GOJb > GDl* > GTia > GD3> а тубулина – Gxlb > GTla > GQlb > GDla. Показано, что тетрасиалоганглиозид Gglb проявляет зависимое от концентрации влияние на активность Са+ – фос-фолипид-, Са +-кальмодулин-, цАМФ- и цГМФ-активируемых протеиякиназ
8.6 Межклеточное гликозирование ганглиозидов
Своеобразный процесс межклеточного гликозилирования поверхностных гликолипидов и гликопротеинов осуществляется ферментами мембран. Полагают, что гликозилтрансферазы одной клеточной поверхности удлиняют, надстраивают олигосахаридные цепочки гликолипидов и гликопротеинов соседней, противоположной поверхности. Важная регу-ляторная роль в этом процессе принадлежит ионам кальция. Са*+ препятствует образованию субстрат-ферментного комплекса между ганглиозидами и гликозилгрансферазами, а вытеснение его другими ионами способствует межклеточному гликозилированию.
Контактное гликозилирование, как предполагаемый механизм модификации клеточной поверхности в нейрональных мембранах, может быть особенно значимым в образовании синапсов. Вероятно, при этом происходит некая «подгонка» контактирующих мембран.
Роль гликозилирования в синаптической области согласуется с концепцией об участии сиалогликомакромолекул в синаптической передаче и формировании памяти. Полагают, что вхождение сиалогликомакромолекул в контактные зоны является важным звеном молекулярных механизмов в проторении определенных нейрональных путей. Возможно, именно ганглиозиды способствуют образованию ансамблей нейронов, устойчиво связанных друг с другом. Возникновение таких ансамблей исключительно важно для хранения и передачи информации.
8.7 Электрогенность ганглиозидов и ее модификация
Необычайная молекулярная вариабельность ганглиозидов сочетается с лабильной электрогенностью. Для каждой молекулы ганглиозидов характерен свой отрицательный заряд, обусловленный карбоксильной группой сиаловой кислоты. На 1 г ткани мозга приходится не менее 1,3 – Ю анионных групп ганглиозидов. Число анионных групп и, следовательно, уровень отрицательного заряда могут быть объектом регуляции. В этом процессе особая роль принадлежит ферментам – нейрамнни-дазам и сиалилтрансферазам. Они определяют число молекул N-ацетнлнейраминовой кислоты, присутствующих в ганглиозидах, и через цикл сиалирования – десиалирования – отрицательный заряд поверхности.
Сиалилтрансферазы и нейраминидазы находятся на поверхности синаптических мембран там же, где и субстраты, и являются внутренними компонентами синаптической области. В синаптосомалъных мембранах содержится около половиньг ганглиозидов, нейраминидаз и сиалилтрансфераз. Иначе говоря, эти мембраны содержат в 5–6 раз больше ганглиозидов и в 6,5 раз больше нейраминидаз, чем другие плазматические мембраны мозга.
Существенное влияние на поверхностный заряд ганглиозидов в мембране оказывает конформация нейраминовой кислоты и ближайших радикалов. Отщеплению нейраминовой кислоты препятствует соседний N-ацетилгалактозамин. В силу этого гли-козидный кислород нейраминовой кислоты вместе с другими атомами, включающими и карбоксильный кислород N-аиетил-галактозамина, лежит как бы в «кислородной клетке»:
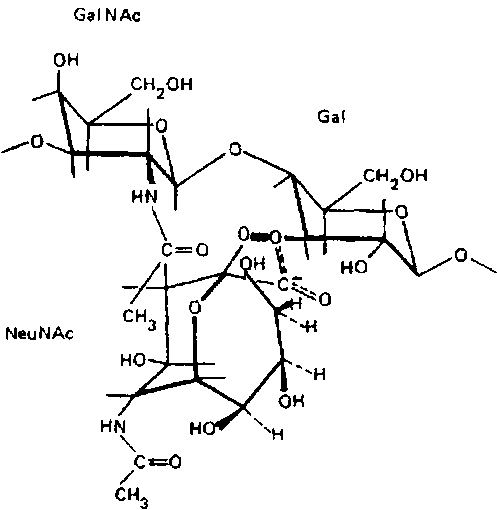
Такая конфигурация атомов вокруг гликозидной связи защищает ее от действия фермента и способствует сохранению отрицательного заряда молекулы. Иная картина наблюдается с ганглиозидами, лишенными N-ацетилгалактозамина: GT3, GD3,
GM3> GM4
Нейраминовая кислота недоступна ферментам, когда карбоксильные группы близлежащих ганглиозидов соединены с Са+:
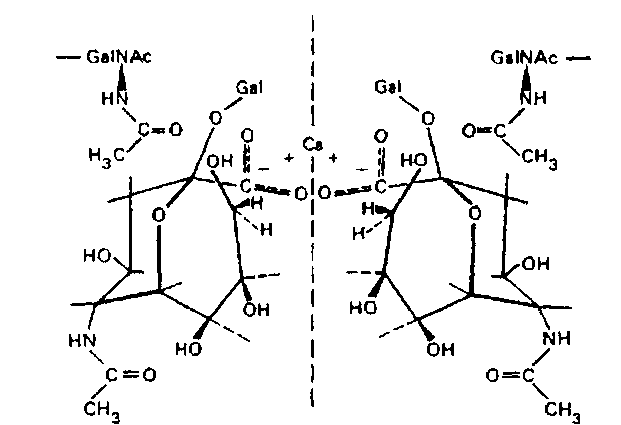
В этом случае исключено не только устранение N-ацетил-нейраминовой кислоты, но и присоединение дополнительного числа ее молекул сиалилтрансферазами.
8.8 Лактонные формы ганглиозидов
Между карбоксильной группой N-апетилнейраминовой кислоты и ее гидроксильными группами могут возникать внутримолекулярные взаимодействия, приводящие к образованию лак-тонов – внутренних сложных эфиров.
В создании лактонов могут участвовать гидроксилы, расположенные'у 4, 7, 8 и 9-го атомов углерода нейраминовой кислоты. Лактоны могут возникать и с участием гидроксильных групп соседней галактозы, приводя к образованию 6-членного кольца:
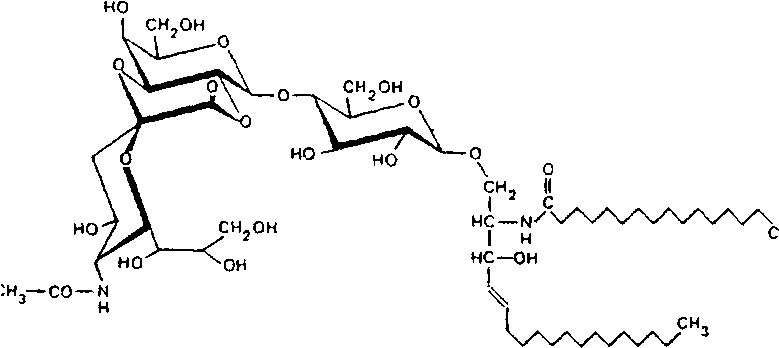
Молекулы нейраминовой кислоты, находящиеся в димерной связи, также образуют лактоны, по структуре аналогичные лактонам коломиновой кислоты, в которой карбоксильная группа одной молекулы связана с гидроксилом 7-го или 9-го атома углерода соседней нейраминовой кислоты.
Лактоны были обнаружены в ганглиозидах мозга. В нейтральной или слабокислой среде терминальная молекула нейраминовой кислоты полисиалоганглиозидов спонтанно образует лак-тон, а в более кислой среде этот процесс затрагивает и другие молекулы нейраминовой кислоты. Установлено, что ионы кальция предотвращают образование лактонов в терминальных молекулах нейраминовой кислоты,
ш Ганглиозиды, имеющие нейраминовую кислоту в лактон-ной форме, обладают иными физико-химическими свойствами, они не заряжены, нейтральны. Поэтому образование лактонов является процессом, изменяющим заряд молекулы, и в более общем виде является примером модификации структуры отдельного компонента ганглиозидов, приводящей к изменению информационной емкости всей сложной молекулы.
8.9 О-ацетилирование ганглиозидов – один из возможных механизмов изменения их структуры
В структуре нейраминовой кислоты очень важна боковая по-лиеидроксильиая группировка, уникальная среди олигосахарид-ных компонентов поверхности:
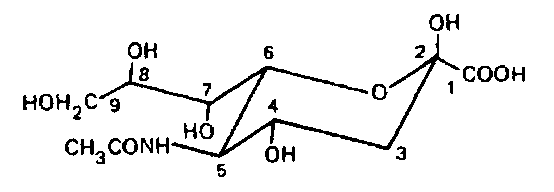
Эта полигидроксильная группировка может быть дополнительно ацетилирована и, возможно, метилирована. В природе известно несколько производных О-ацетилнейраминовых кислот, в которых ацетилированы гидроксилы у 4, 7, 8 и 9-го атомов углерода:
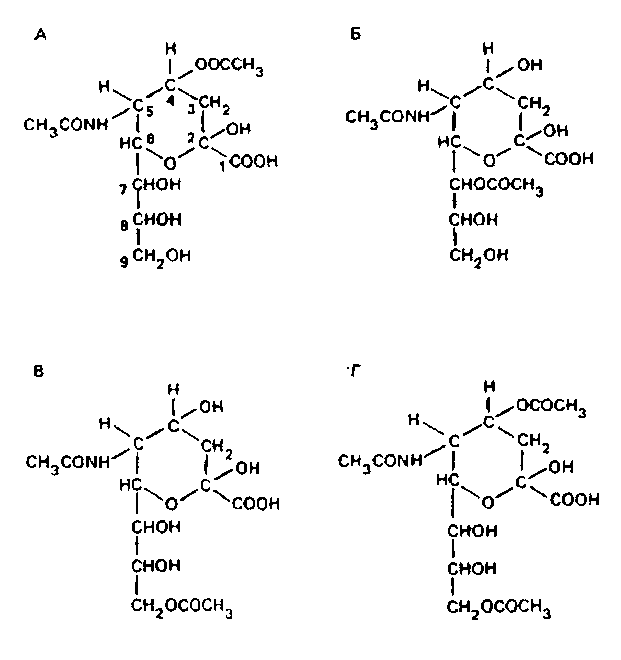
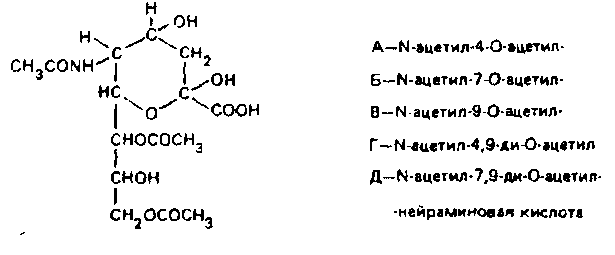
Пока неизвестно, осуществляется ли модификация ганглиозидов ацетилированием ферментативно и что является источником ацетила.
Появление дополнительных ацетильных групп изменяет структуру и конформацию нейраминовой кислоты и ее внутри-и межмолекулярные взаимодействия. Оно делает ее менее доступной сиалилтрансферазам и резко меняет способность ганглиозидов связывать металлы. Увеличивается структурное разнообразие индивидуальных ганглиозидов. Участки поверхности, занятые ацетилированными ганглиозидами, будут иметь иные архитектурные и опознавательно-информационные свойства.
В настоящее время считают, что N-ацетилнейраминовая кислота выполняет антиадгезывную роль в гликоконъюгатах поверхности, маскируя специальные рецепторные стороны. Баланс между сиало- и асиалоганглиозидами определяет адгезию и узнавание клеток. Специфическое присоединение нейраминовой кислоты к рецепторам является одним из механизмов, с помощью которого клетка модулирует свой потенциал узнавания и изменяет свое поведение.
■ Таким образом, ганглиозиды вносят существенный вклад в функции нейрональных мембран. Ганглиозиды несут многочисленные отрицательные заряды, образуя поверхностный анионный слой с выраженным сродством к катионам. Все структурные изменения ганглиозидов за счет гликозилирования, ре-и десиалирования, ацетилирования, образования лактонов и взаимодействия с ионами, гликопротеинами, фосфолипидами и белками влияют, прежде всего, на их заряд и затрагивают электрогенную природу мембран. Сочетание необычайной структурной пластичности с лабильной электрогенностью и способностью к узнаванию других молекул делает эти уникальные соединения участниками проведения нервного импульса в нейронах и регуляции этого процесса.
8.10 Иммунологические свойства ганглиозидов
Антитела специфически реагируют с олигосахаридной частью ганглиозидов независимо от того, прикреплена ли она к липидам, белку, нуклеиновой кислоте. В последнее время начинает вырисовываться и роль церамидной части в антигенных свойствах ганглиозидов.
Введенные интрацеребрально антиганглиозидные антитела нарушают функции ЦНС, причем эти изменения были следствием нарушения синаптических контактов. Особенно полезными в такого рода исследованиях оказались анти-СМ1 антитела, поскольку четко доказаны рецепторные функции GM1 и его большая экспонированность и доступность антителам на поверхности клетки в экстраклеточном пространстве. Введение анти-G^ji антител ингибирует обучение путем блокирования стадии консолидации, задерживает развитие молодых животных, блокирует обезболивание морфином и седативное действие резерпина, нарушает некоторые холинергические функции в гипоталамусе.
Как уже упоминалось выше, ганглиозиды могут обеспечивать некоторые сигнальные механизмы, регулирующие последовательность процессов развития ЦНС. Это подтвердилось при исследовании поведенческих, морфологических и химических изменений при введении aHTH-GM1 антител новорожденным животным. У молодых животных наблюдался дефицит в обучаемости, потеря пирамидных клеток, тонких корешков дендри-тов и миелина, а в соматосенсорном кортексе на 30% снижалось содержание ганглиозидов, галактозилцерамида и РНК. Точное выяснение дифференциального участия индивидуальных ганглиозидов в этих процессах может оказаться важнейшим ключом к синаптическим механизмам.
В последние годы накапливаются факты о роли ганглиозидов как физиологических модуляторов иммунного ответа лимфоцитов. Следует отметить, что уникальной иммунологической роли тимуса соответствует тот факт, что в составе его ганглиозидов преобладает N-гликолилнейраминовая кислота, присутствие которой в олигосахаридной цепочке придает ганглиозидам более выраженные антигенные свойства. При злокачественной трансформации В- и Т-лимфоцитов опухолевые клетки «сбрасывают» со своей мембраны большое количество ганглиозидов, которые способны ингибировать действие макрофагов и естественных киллеров. С другой стороны, встраивание ганглиозидов в мембрану активирует естественные киллеры и помогает уничтожать опухолевые клетки.
8.11 Ганглиозидозы
Ганглиозидозы – наследственные заболевания, характеризующиеся распадом психических функций вплоть до идиотии, дегенерацией нейронов, демиелинизацией, прогрессирующим депонированием ганглиозидов в цитоплазме нейронов.
В 1881 г. британский офтальмолог У. Тей впервые описал врожденное заболевание, связанное с метаболизмом ганглиозидов. Оно теперь известно как болезнь Тей-Сакса, или СМ2-ганглио-зидоз. Второе нарушение обмена ганглиозидов – G^-ганглио-зидоз – было открыто на 84 года позже, в 1965 г. Описанные заболевания имеют пять общих признаков: 1) прогрессирующие умственные и двигательные расстройства с началом в детстве и летальным исходом; 2) аутосомальное рецессивное наследование; 3) нейрональный липидоз с накоплением GM1 или GM2; 4) накопление структурно-родственных гликолипидов, гликопротеинов, полисахаридов; 5) отсутствие или серьезный дефицит специфических лизосомальных гликогидролаз.
В последние годы к известным формам ганглиозидозов прибавились врожденные нарушения, связанные с дефицитом ферментов сиалндаз и фукозвдаз.
9. ИЗМЕНЕНИЕ СОСТАВА ЛИПИДОВ В ОНТОГЕНЕЗЕ
Наиболее быстрое увеличение содержания липидов мозга наблюдается после периода интенсивного синтеза ДНК и белка, т.е. в период, когда происходит рост нейронов, глиальный митоз, аксодендритная пролиферация, формирование синаптических связей и, наконец, миелинизация.
До миелинизации липидный состав мозга сходен с другими органами, но миелинизация драматически изменяет состав липидов мозга. Правда, даже после завершения миелинизации содержание общих липидов в мозге человека продолжает увеличиваться до 30 лет и только после этого начинается их медленное снижение. Причем это снижение касается прежде всего фосфолипидов и жирных кислот и едва ощутимо затрагивает содержание холестерина и цереброзидов.
Липиды развивающегося мозга подразделяют на 4 группы на основе преимущественных: изменений в период миелинизации. Рассмотрим это на примере мозга крысы как объекта наиболее изученного, у которого лостнатальная миелинизация наиболее выражена в период с 21-го по 40-й день.
Содержание основных ганглиозидов мозга человека
|
Ганглиозиды |
Серое вещество |
Белое вещество |
||
|
новорожденные |
взрослые |
новорожденные |
взрослые |
|
|
GM3 |
1 |
- |
1 |
|
|
GM2 |
3,6 |
1,7 |
6,9 |
1>9 |
|
GM1 |
14,6 |
12,8 |
19,1 |
12,6 |
|
GDU |
71,6 |
22,8 |
57,8 |
18,4 |
|
GDlb |
1,8 |
23,5 |
2,1 |
30,4 |
|
GTI |
7,3 |
31,2 |
3,4 |
27,9 |
Первая группа липидов – эфиры холестерина и ганглиозиды. Концентрация их резко меняется в первые 6 дней постнатального развития крыс. Содержание эфиров холестерина уменьшается от 2 мкмолей на 1 г сырой массы до концентрации, составляющей менее 5% от начальной. У крыс это снижение происходит задолго до начала миелинизации, что отражает пролиферацию клеток или очень раннюю дифференциацию гли-альных клеток.
Ганглиозиды на 3-й день постнатального развития составляют 27% от содержания во взрослом организме. Концентрация ганглиозидов за 24 последующих дня быстро увеличивается, достигая 90% от уровня взрослого животного. Спектр индивидуальных ганглиозидов также меняется: при рождении преобладает моносиалоганглиозид G^m, а затем увеличивается содержание дисиалоганглиозидов. Увеличение количества ганглиозидов и изменение их состава связано с ростом аксонов и ден-дритов.
Вторая группа включает цереброзиды, сульфатиды, сфинго-миелин, трифосфоинозитиды, фосфатидные кислоты, галакто-зилдиглицериды. На 3-й день постнатального развития их концентрация невелика, а затем резко увеличивается в период от 12-го до 18-го дня. Пять первых перечисленных липидов являются основными комлонентами миелиновых мембран, их низкая концентрация при рождении подтверждает, что они локализованы в специальных мембранных структурах, которые появляются в мозге во время миелинизации. Полифосфоинозитиды и фосфатидные кислоты отличаются от других липидов этой группы, так как они продолжают заметно увеличиваться и после 24 дней, когда уровень других липидов этой группы стабилизируется.
Третья группа липидов включает фосфатидальэтаноламин, фосфатидальхолин, холестерин, фосфатидилсерин, фосфати-дилглицерин, концентрация которых составляет 12–34% от уровня взрослого организма и увеличивается во время миелинизации, но не столь значительно, как у липидов второй группы. Первые три представителя этой группы локализованы в мембранах миелина и нарастание их связано с миелинизацией.
Четвертая группа липидов охватывает три лииида мозга – фосфатидилэтаноламин, фосфатидилхолин и моно-фосфоинозитид, концентрация которых составляет 50–59% от содержания взрослого мозга и очень медленно увеличивается в период развития. Известно, что эти липиды являются повсеместными компонентами большинства мембранных структур и спектр их изменений не связан с преимущественными изменениями каких-либо специфических мембранных образований. Но в ходе онтогенеза в мембранах мозга увеличивается отношение ФЭ:ФХ и количество сфингомиелина. Диацильные формы фосфолипидов заменяются на плазмалогенные и значительно увеличивается микровязкость мембран.
Таким образом, различные классы липидов характеризуются индивидуальным характером накопления в период созревания мозга.
Выводы
1. Для нервной ткани характерно особенно высокое содержание липидов – до 50% от сухой массы ткани. Наряду с этим установлено огромное разнообразие и наличие специфических только для мозга индивидуальных липидов.
2. Фосфолипиды нервной ткани составляют до 70% от суммарного содержания липидов в сером веществе и до 45–50% – в белом веществе мозга. Обнаружена необычайно высокая гетерогенность фосфолипидов мозга по сравнению с висцеральными органами.
3. Основной представитель стеролов в нервной ткани – холестерин, на