Содержание ДНК в нервных клетках
Транскрибируемость уникальных последовательностей ДНК в мозге млекопитающих прогрессивно возрастает в позднем эмбриогенезе и раннем постнатальном онтогенезе, достигая максимума к моменту функционального созревания. Обнаружено, что транскрибируемость генома в различных отделах мозга человека неодинакова: в гностических областях коры больших полушарий она выше, чем в проекционных, в лобной коре левого полушария значительно выше, чем правого, в мозжечке и стволовых отделах мозга уровень транскрипции - промежуточный. Эти данные позволяют сделать вывод о том, что развитие сложных гностических функций в мозге человека связано с прогрессивным увеличением генетического разнообразия составляющих его клеточных элементов.
В последние годы появились работы, позволяющие сделать прямые оценки степени генетической специализации клеток мозга. Они основаны на исследовании локализации различных мозгоспецифических антигенов с помощью моноклональных антител и локализации индивидуальных мРНК с помощью комплементарных клонированных последовательностей. Главным недостатком этих методов является их низкая представительность: в каждой работе исследуется ничтожная доля от всех синтезируемых в клетках мозга мРНК и белков. Добавим также, что в сфере этих исследований в большинстве случаев оказываются белки и мРНК, присутствующие в мозге в относительно высокой концентрации и уже в силу этого обстоятельства экспрессируемые в обширных популяциях нервных клеток. Так, обнаружены антигены, специфические для основных типов нервных клеток, а также для нейронов определенных отделов мозга. В рамках соответствующих отделов антигены могут иметь еще более выраженную клеточную специфичность. Известны антигены, которые экспрессируются в перекрывающихся популяциях нейронов в одних отделах ЦНС и неперекрывающихся популяциях - в других. Аналогичные, хотя пока и не столь многочисленные данные получены при исследовании локализации мозгоспецифических мРНК гибридизацией in situ. Судя по морфологическим, нейрофизиологическим, нейрохимическим и другим критериям, в мозге млекопитающих минимальными единицами такой специализации являются группы из десятков-сотен клеток, число которых в мозге крысы - 7104, а в мозге человека - 5-107, Это заведомо превышает общее число экспрессируемых в них генов. По-видимому, морфофункциональная специфичность клеток в мозге определяется уникальностью всей комбинации экспрессируемых в них генов и положением этих клеток в специфических нейронных ансамблях. В то же время тот факт, что такие группы насчитывают десятки-сотни клеток с одинаково экспрессируемым геномом, может объясняться необходимостью повышения надежности работы всей системы в целом. Однако в ЦНС некоторых беспозвоночных такая специализация распространяется на индивидуальные нейроны.
9. Экспрессия генов в ЦНС беспозвоночных
С помощью ДНК-РНК-гибридизации показано, что в ЦНС моллюска-кальмара экспрессируется 46% уникальных последовательностей генома, что достаточно для кодирования нескольких десятков тысяч различных мРНК. Следовательно, генетическая сложность клеточных элементов в ЦНС высокоорганизованных беспозвоночных сопоставима с таковой в ЦНС млекопитающих. В отличие от млекопитающих, однако, у кальмара не обнаружено специфической для ЦНС популяции молекул поли+РНК.
Уникальную возможность для исследования экспрессии генов в индивидуальных нейронах представляет ЦНС брюхоногих моллюсков, состоящая из небольшого числа крупных, во многих случаях легко идентифицируемых нейронов, сосредоточенных в нескольких ганглиях. У аплизии некоторые нейроны достигают размеров 0,5 мм и содержат - 0,25 мкг ДНК и - 5 нг поли+РНК, что вполне достаточно для анализа методами молекулярного клонирования.
С помощью процедуры дифференциальной гибридизации клонированы гены и мРНК, специфически зкспрессирующиеся в отдельных нейронах ЦНС аплизии. В их число входят гены, продукты которых хорошо идентифицированы; например ген, кодирующий гормон откладки яиц, и четыре родственных ему гена. Будучи активными в разных нейронах, они кодируют синтез нескольких физиологически активных пептидов, секреция которых индуцирует стереотипный поведенческий репертуар откладки яиц. При этом один и тот же пептид может действовать как нейрогормон на клетки соматических тканей и нейромедиатор на определенные нейроны. Экспрессия других генов этого семейства в клетках атриальных желез приводит к синтезу нейроактивных пептидов, вызывающих активацию сумчатых клеток, а также секретируемых во внешнюю среду пептидов, обладающих активностью половых феромонов. Таким образом, кодируемые этим семейством генов пептиды регулируют различные компоненты одного сложного поведенческого репертуара.
Очень интересен также наплизии, участвующий в регуляции водно-соленого баланса. Он кодирует две мРНК, образующиеся в результате альтернативного сплайсинга. Одна из них является преобладающим продуктом экспрессии гена в одном из нейронов, тогда как укорочения форма мРНК преимущественно синтезируется в некоторых других нейронах. Следовательно, у аплизии существуют механизмы выбора различных путей сплайсинга в разных нейронах.
Изучение экспрессии генов в индивидуальных нейронах этого моллюска позволяет сделать некоторые принципиальные выводы, которые могут быть применимыми и к ЦНС позвоночных животных. Главный из этих выводов состоит в том, что присутствие множества "редких" молекул РНК в суммарных препаратах поли*РНК, изолированных из целой ЦНС или ее крупных отделов, является следствием активной экспрессии этих РНК в небольших популяциях нервных клеток, а не их экспрессии на одинаково низком уровне в обширных популяциях клеток.
Сравнение популяций мРНК, синтезируемых в нейронах, использующих один и тот же классический медиатор, но функционально различных, показывает, что такие нейроны обычно различаются экспрессией нескольких мРНК, каждая из которых специфична лишь для одного из сравниваемых нейронов. Очевидно, общее разнообразие синтезируемых в ЦНС мРНК складывается из перекрывающихся, но не одинаковых популяций мРНК, образуемых в индивидуальных нейронах. Остается добавить, что рассмотренные исследования охватывают лишь относительно часто встречающиеся молекулы мРНК. Не исключено, что в действительности различия в популяциях синтезируемых мРНК между индивидуальными нейронами носят более сложный характер.
К популярным объектам нейрогенетики из числа беспозвоночных относится и одна из свободно живущих нематод - Caenorhabditis elegans. Одним из важных результатов ее исследования является обнаружение так называемых селекторных генов. Последние играют ключевую роль в онтогенезе нейронов нематоды: их продукты индуцируют включение серии "генов-реализаторов", формирующих фенотип нейронов. Примером селекторного гена может служить ген INS-4, детерминирующий специфичность синаптических контактов идентифицируемого мотонейрона VA. При мутациях этого гена мотонейрон VA образует синаптические контакты, в норме ему не свойственные. Никаких других заметных нарушений в развитии ЦНС при этом не обнаруживается. Продуктом гена INS-4 является гомеобокс-содержащий ДНК-связывающий белок. Очевидно, он регулирует транскрипцию группы генов-реализаторов, непосредственно участвующих в установлении специфических для данного мотонейрона синаптических контактов.
Наконец, классический объект генетических исследований - дрозофила - позволил получить обширную информацию о сложных процессах онтогенеза центральной нервной системы. Эту информацию можно обобщенно представить в виде модели многоступенчатой генетической детерминации нейрогенеза, основные положения которой, по-видимому, сохраняют силу и для позвоночных животных. В соответствии с этой моделью существует четыре класса генов, регулирующих последовательные этапы нейрогенеза. Первый, наименее изученный класс, включает гены, ответственные за преобразование части клеток недифференцированной вентральной эктодермы в предшественники нервных клеток. Ко второму классу относятся гены, детерминирующие свойства клеток-предшественников в соответствии с их положением в той или иной части ЦНС. Среди этих генов - многие из так называемых гомейотических или сегментарных генов, которые детерминируют также и формирование общего плана строений организма в целом. При этом одни и те же гены обычно детерминируют и формирование определенного сегмента организма, и специфические свойства локализованного в нем сегмента ЦНС. Заметим, однако, что сегментарная и нейроспецифическая экспрессия гомейотических генов контролируется разными механизмами. Гены третьего класса детерминируют свойства индивидуальных нейробластов в зависимости от их локализации внутри данного сегмента ЦНС. Представителем этого класса, по-видимому, является ген prospero, экспрессирующийся только в определенных нейробластах каждого сегмента ЦНС, но не в образующихся из них нейронах. Мутации этого гена приводят к выпадению из развивающейся нервной системы нескольких специфических клеточных линий. Наконец, гены четвертого класса детерминируют индивидуальные свойства каждого из нейронов, образующегося при делении одного нейробласта. Представителями этого класса являются гены fushi tarazu и even-skipped. Интересно, что один и тот же ген может участвовать в контроле разных этапов нейрогенеза. Так, ген ftz является типичным гомейотическим геном, участвующим в формировании общего сегментарного плана строения ЦНС и организма в целом, т.е. входит во второй класс генов. На более поздних этапах он участвует в детерминации свойств индивидуальных нейронов: в каждом сегменте ЦНС он экспрессируется в группе из 30 идентифицируемых нейронов, являющихся потомками - 8 нейробластов. При этом ни в одном из нейробластов ген ftz не экспрессируется, а процент экспрессирующих его клеток в потомстве индивидуальных нейробластов варьирует от 0 до 100%. Заметим, однако, что сегментарная и нейроспецифическая экспрессия гена ftz контролируется разными механизмами. Еще один фундаментальный вывод описанных исследований состоит в том, что индивидуальная специфичность элементов нервной системы определяется не уникальными генами, количество которых заведомо меньше числа самих элементов, а уникальными комбинациями взаимодействующих генов, надежность которых обеспечивается чертами функциональной избыточности.
Гены, ответственные за формирование специфического фенотипа функционально зрелых нейронов, изучены главным образом для относительно просто устроенных нейронных структур, например сетчатки глаза дрозофилы. Каждый элемент сетчатки - омматидий - состоит из 8 четко различимых по морфологии и локализации фоточувствительных нейронов и 12 ненейрональных клеток. Дифференцировка нейронов в развивающихся омматидиях протекает в строго фиксированной последовательности. Недифференцированные клетки в зачатках омматидиев являются эквипотенциальными, а судьба дифференцирующихся клеток определяется не их происхождением, а индуцирующими стимулами со стороны соседствующих с ними ранее дифференцированных клеток.
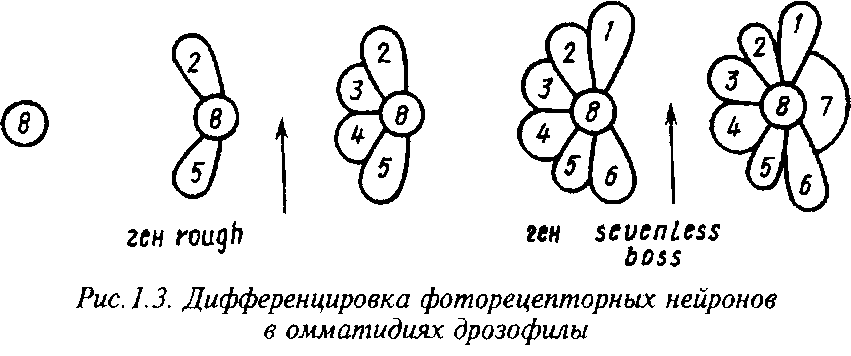
Некоторые из генов, ответственных за генерацию и рецепцию этих стимулов, хорошо изучены: ген seveniess кодирует мембранный рецептор, необходимый для индукции дифференцировки нейрона R7, а ген bride of sevenless - за образование в нейроне R8 лиганда, действующего на этот рецептор. Ген seven in absentia кодирует ядерный белок, интерпретирующий сигнал, воспринимаемый рецептором sevenless. Ген rough кодирует транскрипционный фактор, необходимый для возникновения в нейронах R2 и R6 сигнала, индуцирующего дифференцировку соседних клеток в нейроны R3 и R4. Другой транскрипционный фактор, необходимый для дифференцировки нейронов Rl, R3, R4 и R6, кодируется геном seven-up. Ключевым элементом в реализации генетических программ функционального созревания фоторецепторных нейронов является ДНК-связывающий белок, кодируемый геном glass, а специфическими для индивидуалъньгх фоторецепторных нейронов компонентами этих программ - гены, кодирующие разные формы фоторецепторных белков.
Важную роль в окончательной морфологической дифферен-цировке нейронов играют гены, кодирующие молекулы избирательной межклеточной адгезии. Одной из разновидностей таких молекул у насекомых являются фасциклины, обеспечивающие взаимное узнавание и ассоциацию растущих аксонов в развивающейся ЦНС и, в конечном итоге, формирование стереотипной системы аксонных пучков. В эмбриональной ЦНС разные фасциклины экспрессируются в разных популяциях нейронов и их отростков: каждый фасцикяин экспрессируется в аксонах - 5 из - 30 аксонных пучков передних и задних комиссур каждого ганглия и - 15 нейронах каждого полусегмента. В эмбриогенезе экспрессия фасциклинов наблюдается уже в отдельных клетках морфологически недифференцированной вентральной нейроэктодермы, сохраняясь в образующихся из этих клеток нейробластах, ганглионарных материнских клетках и нейронах. По-видимому, фасциклины входят в число наиболее ранних молекулярных маркеров индивидуальных нейрональньгх линий. Обнаруженные закономерности при исследовании относительно просто устроенной ЦНС беспозвоночных не всегда находят прямые аналогии в более сложно организованных ЦНС высших позвоночных животных. Тем не менее с известной осторожностью их можно использовать при интерпретации данных по экспрессии генов в мозге позвоночных.
10. Экспрессия генов в развивающейся нервной системе позвоночных
Возникновение ЦНС из недифференцированных клеток эктодермы до настоящего времени остается одним из самых загадочных процессов в эмбриогенезе позвоночных. Считается, что исходно клетки эктодермы не имеют самостоятельного нейрогенного потенциала, а их дифференцировка в нервные клетки индуцируется какими-то сигналами, поступающими из нижележащих клеток эмбриональной мезодермы. Молекулярная природа этих сигналов и их первичных эффектов в клетках эктодермы до последнего времени была совершенно неизученной. Совсем недавно обнаружено, что, например, компонентом такого первичного эффекта в эмбрионах шпорцевых лягушек является индукция гена Х1НЬохб, содержащего характерную для многих генов, регулирующих онтогенез, эволюционно консервативную последовательность, так называемый гомеобокс. Он тесно связан с определением локализации групп клеток и тканей, с "географией" клеток и функций в организме.
Экспрессия этого гена характерна для наиболее ранних стадий нейрогенеза. Ген ХШЬохб имеет четко выраженный сегментарный характер экспрессии в эмбриональной ЦНС: его транскрипты обнаруживаются только в задних двух третях нервной трубки. Подобно многим гомейотическим генам дрозофилы ген ХШЬохб перестает экспрессироваться на поздних стадиях эмбриогенеза.
Ген XlHboxl экспрессируется в спинном мозге, причем передняя граница экспрессирующей его области - очень резкая и в точности совпадает с границей спинного и головного мозга. При инактивации кодируемого этим геном белка специфическими антителами нарушается развитие передних отделов спинного мозга: они трансформируются в структуру, морфологически идентичную продолговатому мозгу.
Очевидно, кодируемые этими генами белки являются специфическими транскрипционными факторами, регулирующими генетическую детерминацию клеточных линий в определенных отделах эмбриональной ЦНС. Они обеспечивают реализацию позиционной информации в общем процессе нейрогенеза.
В геноме мыши обнаружено четыре комплекса тесно сцепленных гомеобокс-содержащих генов, Нох-1, - 2, - 3, и - 4. Индивидуальные гены каждого комплекса аналогично гомейотическим генам дрозофилы экспрессируются в различных относительно передне-задней оси тела областях ЦНС. Морфологически различимые сегменты в эмбриональной ЦНС позвоночных обнаруживаются лишь на ранних стадиях развития заднего мозга в виде так называемых ромбомеров, тогда как на более поздних стадиях и в мозге взрослых животных рудиментом сегментарного строения остается лишь распределение ядер черепно-мозговых нервов.
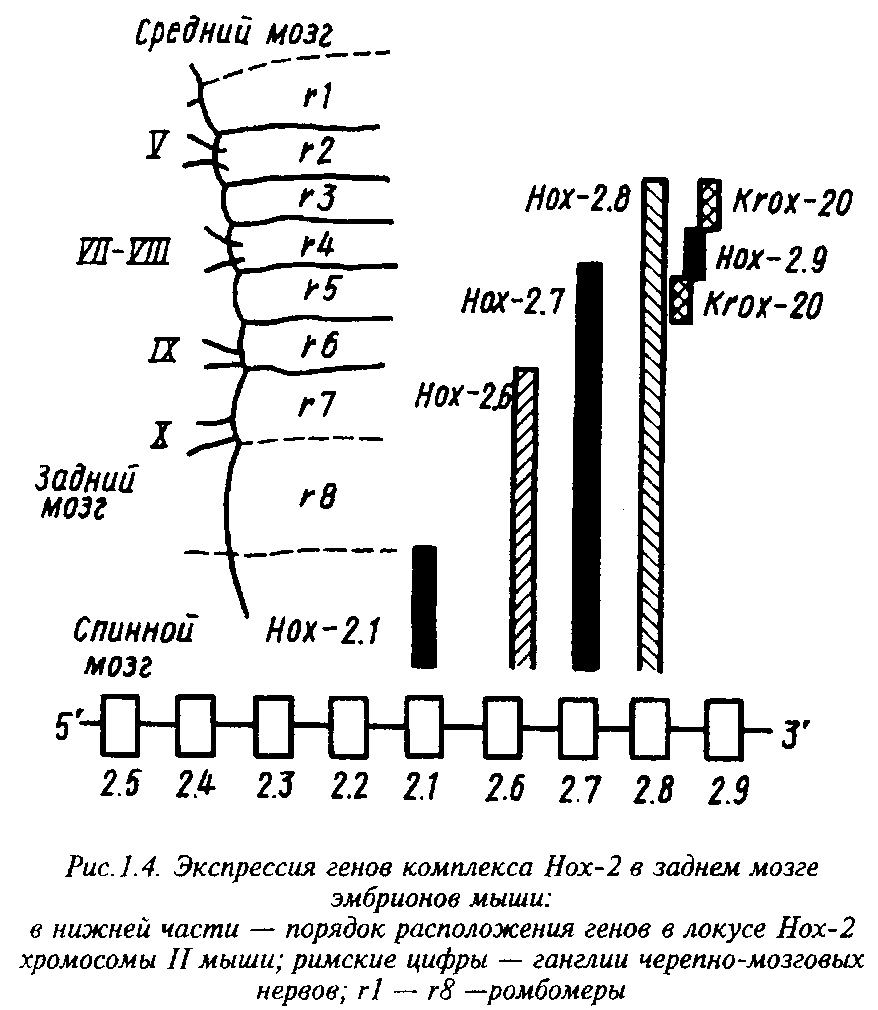
Индивидуальные гены Нох-2 комплекса имеют общую область экспрессии в каудальных отделах эмбриональной нервной трубки, тогда как передние границы экспрессирующей области у них различны: чем ниже данный ген расположен в Нох-2 локусе хромосомы, тем выше расположена эта граница.
Сейчас интенсивно накапливаются и обобщаются новые данные в этой области. Эволюционная консервативность регуляторных генов, экспрессируемых в сегментарных отделах эмбриональной ЦНС позвоночных, и явные аналогии в характере их экспрессии с гомейотическими генами дрозофилы делают весьма привлекательной гипотезу об их роли в детерминации общего плана строения и идентичности отдельных клеточных линий в развивающейся ЦНС.
Ни один из исследованных генов Нох комплексов не экс-прессируется в передних отделах головного мозга позвоночных в эмбриогенезе. Эти отделы не проявляют явных признаков сегментарного строения. Являясь относительно эволюционно новыми приобретениями, они, по-видимому, имеют специфичные механизмы генетической детерминации. Показано, в частности, что в детерминации отделов переднего и промежуточного мозга существенную роль играет ген Dlx, гомологичный гомейотическому гену D11 дрозофилы. Аналогично, в детерминации среднего мозга и, возможно, передних отделов мозжечка участвует протоонкоген Wnt-1 и гомеобокс-содержащие гены Еп-1 и - 2.
Имеются данные, заставляющие по-новому взглянуть на вопрос о функциях гомеобокс-содержащих генов у высших животных. Клонирование генов, кодирующих транскрипционные факторы Oct-1, Oct-2 и Pit-1, показало, что они являются членами особого подсемейства гомеобокс-содержащих генов, в которое входит также ген Unc-86 нематод. Общим признаком, объединяющим эти гены, является длинная консервативная последовательность, POU-домен, частью которой является гомеобокс. Ген Unc-86 участвует в детерминации нейронных линий у нематод. Несколько генов POU-подсемейства специфически экспрессируются в отделах мозга млекопитающих: Вгп-1, - 2, - 3 и Tst-I. Все четыре гена экспрессируются в эмбриональной нервной системе, включая клетки герминативных зон.
Динамика экспрессии индивидуальных генов в развивающемся мозге очень различна и по мере развития отделов мозга приобретает черты, отражающие их паттерн экспрессии в мозге взрослых животных. Экспрессия этих генов в клетках герминативных зон может означать, что судьба индивидуальных клеточных линий в нервной системе предопределена уже до начала их миграции из герминативной зоны.
По-видимому, кодируемые гомеобокс-содержащими генами транскрипционные факторы могут регулировать экспрессию генов не только в формирующихся клеточных линиях в раннем эмбриогенезе млекопитающих, но и в дифференцированных клетках взрослого организма, причем на очень разных уровнях клеточной специфичности.
Наконец, особого рассмотрения заслуживает тот факт, что в мозге млекопитающих есть ряд генов, особенно быстро реагирующих на разнообразные экстремальные воздействия. Их включение в ряде ситуаций, в частности, сопровождающихся повышением уровня внутриклеточного Са2+, служит как бы первым относительно неспецифичным звеном реакции генома нейрона. Далее следует включение более специфичных участков генома. В число таких генов "первоочередного реагирования" входят гены, открытые ранее в связи с исследованием протоонкогенов. В частности, гены c-fos и c-jun кодируют факторы - регуляторы транскрипции других генов, - белки Fos и Jun. Последние входят, в свою очередь, в состав белка АР-1, связывающегося с определенными локусами ДНК, - например возле 5'-конца гена, кодирующего фактор трофики нейронов - NGF. В экстремальных ситуациях - при эпилептических судорогах, требующих срочного усиления трофики нейронов, - этот механизм включает синтез NGF. Аналогичные механизмы с участием генов c-fos и c-jun срабатывают под влиянием болевых импульсов и других экстремальных воздействий на ЦНС, включая целые каскады транскрипции генов, кодирующих, например, такие противоболевые факторы, как опиодные пептиды и другие регуляторы. В последнее время c-fos и другие гены раннего реагирования нередко называют "третьим мессенджером". Наконец, появляется все больше данных об участии генов этого типа в механизмах запоминания.
Выводы
1. Большинство нейронов ЦНС позвоночных являются диплоидными; небольшая доля нейронов в некоторых отделах ЦНС может содержать избыточное по сравнению с диплоидным количество ДНК.
2. Репликативный синтез ДНК в дифференцированных нейронах отсутствует; в мозге взрослых млекопитающих репликация ДНК связана главным образом с ограниченными процессами размножения глиальных клеток.
3. В клетках мозга млекопитающих имеются активно функционирующие системы репарации ДНК, поддерживающие целостность и эффективность генетического аппарата.
4. Хроматин нервных клеток имеет типичную для эукариотических клеток нуклеосомную организацию. Особенностями хроматина нейронов неокортекса млекопитающих являются необычно короткие нуклеосомные единицы, присутствие редких вариантов гистонов, высокое разнообразие негистоновых белков и высокая матричная активность.
5. В мозге млекопитающих экспрессируется несколько десятков тысяч уникальных генов, из которых не менее половины имеют мозгоспецифический характер экспрессии.
6. Огромное разнообразие экспрессируемых в мозге генов складывается из перекрывающихся, но не одинаковых популяций генов, экспрессируемых в отдельных нервных клетках.
7. Наряду с разнообразнейшими мозгоспецифическими мессенджер-РНК в центральной нервной системе синтезируется ограниченное число особых малых РНК с последовательностями нуклеотидов, общими для всех отделов мозга.
8. Разнообразие белков и регуляторных пептидов, синтезируемых в мозге, определяется не только большим набором экспрессируемых генов, но и системой альтернативного сплайсинга пре-мРНК.