Нейрохимические основы памяти
Несколько лет назад появилось сообщение о том, что важную роль в формировании памяти может играть процесс обратной транскрипции. Авторы этого сообщения обнаружили, что в мозге и других тканях крыс присутствует РНК-зависимая ДНК-полимеразная активность. В гиппокампе крыс быстрообучающейся генетической линии эта активность существенно выше, чем у крыс медленно обучающейся линии; более того, процесс выработки пищедобывательного условного рефлекса сопровождается возрастанием этой активности в гиппокампе почти в два раза. По мнению авторов, роль обратной транскриптазы при формировании памяти может состоять в избирательной амплификации специфически активных при обучении генов.
Выработка пищевых и оборонительных условных рефлексов у крыс сопровождается резкой интенсификацией синтеза ДНК в неокортексе. Этот эффект максимально выражен непосредственно после обучения и быстро затухает в последующие часы. Индуцированный обучением синтез ДНК весьма избирателен: он затрагивает главным образом малоповторенные в геноме последовательности ДНК. К сожалению, природа и функциональная роль этих последовательностей и самого избирательного синтеза ДНК остается пока невыясненной. Не исключено, что избирательное включение меченых предшественников при обучении в определенные последовательности ДНК обусловлено процессами репарации, сопряженными с активацией транскрипции в содержащих эти последовательности участках хроматина. Известно, например, что обучение сопровождается повышением активности ДНКаз в мозге крыс.
При выработке условного рефлекса активного избегания Л.Скарони и соавторы наблюдали сходное с уже описанным повышение синтеза ДНК в мозге крыс. Однако при хронической выработке сложного пищедобывательного навыка наблюдали уменьшение синтеза ДНК в большинстве отделов мозга. Исследование уровня синтеза ДНК в клетках разного типа и различных субклеточных органеллах показало, что индуцированные обучением изменения затрагивают ядерную и митохондриальную ДНК нейронов, причем последнюю — в большей степени. В ядерной ДНК эти изменения в разной степени затрагивают разные последовательности ДНК. По-видимому, разнонаправленные изменения в общем уровне синтеза ДНК в мозге при различных типах обучения связаны с тем, что этот показатель является слишком сложной интегральной характеристикой метаболизма ДНК, складывающейся из многих локальных эффектов, каждый из которых зависит от различных протекающих в мозге процессов. Известно, например, что уровень синтеза ДНК в мозге крыс повышается при депривации парадоксального сна, а также, что он испытывает закономерные циркадные колебания, выраженность которых зависит от времени года. Существенность синтеза ДНК для формирования памяти подтверждается также тем, что оба процесса подавляются при действии электрошока.
■ Все эти данные свидетельствуют о возможном участии метаболизма ДНК в процессах формирования и хранения нейрологической памяти. К сожалению, механизмы этого участия пока остаются практически неизученными.
Энзиматическое метилирование остатков цитозина в ДНК клеток животных рассматривается как один из основных механизмов регуляции дифференциальной экспрессии генов. Для огромного количества генов обнаружена обратная корреляция между степенью метилирования остатков цитозина в области промотора и экспрессией.
Степень метилирования ДНК в различных отделах головного мозга и более тонких подразделениях каждого отдела неодинакова. Дексаметазон вызывает повышение, а ареколин — уменьшение степени метилирования ДНК в мозге. Степень метилирования ДНК в мозге крыс возрастает при старении.
При выработке сложного инструментального пищедобывательного условного рефлекса у крыс наблюдали обратимое повышение уровня метилирования ДНК в гиппокампе и неокорте ксе, а при выработке простого пищевого условного рефлекса — также и в мозжечке. Отмеченные изменения уровня метилирования затрагивают главным образом ядерную ДНК нейронов. Значение выявленных обратимых изменений в уровне метилирования ДНК мозга при обучении остается неизвестным. Представляется маловероятным, что они непосредственно связаны с регуляцией транскрипции генов, поскольку, как показали многочисленные исследования последних лет, активность генов мало зависит от общего уровня их метилирования и определяется скорее состоянием небольшого числа "критических" для транскрипции потенциально метилируемых участков в промоторной области. Сами масштабы и сроки обнаруженных сдвигов в метилировании ДНК при обучении свидетельствуют о том, что они связаны с сопоставимыми глобальными процессами синтеза ДНК и/или структурой реорганизации хроматина. В связи с этим было бы интересным выяснить возможную связь между изменением в уровне метилирования ДНК мозга и синтеза в нем метаболически лабильной ДНК. Следует отметить, однако, что вновь синтезированная в мозге крыс ДНК, индуцированная обучением, существенно не отличается от предшествовавшей ДНК по уровню метилирования. Приходится констатировать, что механизмы обратимого повышения метилирования ДНК при обучении и функциональная роль этого процесса пока остаются загадочными.
Основой долговременной памяти могут служить не только структурные изменения внутри ДНК. Существуют предположения, что устойчивое состояние, связанное с экспрессией либо депрессией определенных генов, формируется благодаря процессам, описываемым на базе, например, модифицированных моделей Жакоба и Моно. Конкретный процесс может, в частности, выглядеть следующим образом. В исходном состоянии транскриптон, ответственный за синтез данного белка, выключен определенным репрессором. В результате какого-то воздействия, например вследствие процессов, происходящих в синаптическом аппарате, происходит экспрессия транскриптона и синтез интересующего нас белка. После прекращения воздействия участок генома может снова оказаться репрессированным и синтез прекратится. Но в ряде случаев синтезируемый белок оказывается способным связывать репрессор своего оперона. Тогда возникает устойчивый цикл, который уже не прерывается после прекращения воздействия.
Такая схема объясняет, например, почему ингибиторы синтеза белка и ДНК не нарушают тех процессов, которые уже прошли консолидацию и зафиксированы в долговременной памяти. Для того чтобы прервать запущенный цикл, требуется прекратить синтез биополимеров полностью и на очень длительный срок, а это трудно совместить с жизнью животного, к тому же такие ингибиторы в настоящее время неизвестны. Если же синтез белка продолжается, хотя бы и с небольшой интенсивностью, цикл не может быть необратимо подавлен.
Первые экспериментальные указания на справедливость моделей такого типа получены при исследовании вентрального гиперстриатума во время формирования условных рефлексов пассивного избегания у цыплят. В мозге высших животных, как и в ЦНС аплизии, кратковременные и долговременные формы пластичности могут иметь общую структурную и отчасти молекулярную основу: существенным компонентом механизма длительной посттетанической потенциации в гиппокампе млекопитающих является фосфорилирование протеинкиназой С пресинаптического белка F1, который, как показало изучение первичной структуры мРНК, идентичен белку GAP-43 — важнейшему элементу процессов роста и регенерации нервных окончаний. Экспрессия гена GAP-43 очень активна в развивающемся мозге в период аксогенеза. В мозге взрослого человека ген GAP-43 наиболее активно экспрессируется в ассоциативных зонах неокортекса, гораздо ниже — в проекционных и моторных зонах, умеренно — в мозжечке, хвостатом ядре, покрышке, гиппокампе и цингулярной коре. В мозге взрослых крыс местами наиболее активной экспрессии гена GAP-43 являются гиппокамп и энторинальная кора, тогда как в неокортексе, мозжечке и стволовых структурах число экспрессирующих нейронов очень невелико. Содержащие GAP-43 аксоны образуют редкую, но распределенную по всему мозгу синаптическую сеть, которая, возможно, и является объектом реорганизации при всевозможных процессах долговременной пластичности.
Первые часы формирования долговременной памяти весьма уязвимы к действию агентов, подавляющих текущую экспрессию генов, тогда как на более поздних этапах она становится относительно устойчивой, Первичной мишенью действия ингибиторов на ранние этапы формирования памяти вряд ли может быть экспрессия поздних эффекторных генов GAP-43 или тирозингидроксилазного, поскольку повышение уровня их экспрессии обычно наблюдается на более поздних этапах. Маловероятно также, что включение различных эффекторных механизмов долговременной пластичности является прямым ответом на синаптическую активацию. Промежуточным звеном между этими процессами, объясняющими чувствительность ранних этапов формирования памяти к действию ингибиторов, является, вероятно, быстрая и обратимая активация так называемых немедленных ранних генов. Активация этих генов является наиболее ранним и быстропроходящим ответом клеточного ядра различных клеток на действие всевозможных внешних стимулов. Более поздним последствием этого процесса является активация экспрессии эффекторных генов, обеспечивающая долговременный адаптивный ответ клетки на действие внешнего стимула.
Одним из замечательных свойств немедленных ранних генов является их способность активироваться при действии самых разных внешних стимулов на клеточную мембрану. Эта способность основана на присутствии в промоторной области каждого из этих генов сложной мозаики взаимодействующих позитивных и негативных регуляторных элементов, узнаваемых разными системами вторичных посредников. В целом немедленные ранние гены кодируют несколько обширных семейств специфических белков-регуляторов транскрипции.
Способность этих белков к продуктивному взаимодействию с промоторными элементами разных эффекторных генов зависят как от индивидуальной специфичности каждого из белков, так и от их способности объединяться в гомо- и гетеродимеры. Показано, что ген c-fos опосредует индуцированную фактором роста нервов дифференцировку клеток PC 12 в неделяшиеся ацетилхолин-чувствительные клетки, сходные с симпатическими нейронами. Долговременная адаптация клеток мозга мыши к действию конвульсантов метразола и пиротоксинй включает стадию быстрой активации немедленных ранних генов. Этот эффект не имеет непосредственного отношения к судорожному действию препаратов и затрагивает обширные популяции нейронов в разных отделах мозга.
Показано также, что активация c-fos генов может быть индуктором синтеза нейротрофинов, которые способны модулировать образование отростков и новых синапсов.
При индукции долговременной посттетанической потенциации в зубчатой фасции гиппокампа высокочастотной стимуляцией волокон перфорантного тракта наблюдается быстрая активация одного из немедленных ранних генов, zif/268, кодирующего ДНК-связывающий белок с "Zn-пальцами". Эффект активации zif/268 совпадает с самой долговременной потенциацией. Специфические антагонисты глутаматных рецепторов NMDA блокируют генерацию ДПП и предшествующую ей активацию гена zif/268, но не влияют на активацию этого и других немедленных ранних генов конвульсантами. Эти и многие другие данные позволяют выстроить одну из гипотетических цепочек реакций, ведущих к формированию долговременной памяти: повторная интенсивная импульсация выключение рецепторов глутамата активация некоторых генов раннего реагирования индукция синтеза нейротрофинов -> модуляция числа синапсов и/или перестройка регу-ляторных отношений в геноме, ведущая к постоянному включению генов, кодирующих факторы "проторения" синапса.
В попытках раскрытия механизмов пожизненной долговременной нейрологической памяти полезно сопоставление ее с другими формами биологической памяти — генетической, эпигенетической и иммунологической. Первые две формы возникли на ранних этапах эволюции, задолго до нейрологической памяти, и определяли и определяют наследование структурно-функциональных особенностей организма, дифференцировку клеток в процессе онтогенеза и т.п. Существует, однако, еще одна форма памяти — иммунологическая память — филогенетически более близкая к нейрологической и, по некоторым предположениям, тесно с ней связанная. В иммунологической памяти, как и в ДПП, происходит длительная, часто пожизненная, фиксация информации о редких, даже единичных, событиях. В настоящее время доказано, что формирование иммунологической памяти не связано с образованием новых генетических последовательностей. Происходит отбор и включение только уже существующих в организме носителей определенных генов.
Сущность гипотезы об участии иммунологических механизмов в процессах ДПП сводится к следующему. При многократном прохождении импульсов через синапс усиливается синтез специфических белков, например гликопротеидов, характерных лишь для данной небольшой группы нейронов. Эти белки являются компонентами синаптических мембран и при отсутствии повторной импульсации синтезируются в количествах, достаточных только для их обновления. Если же происходит длительная многократная импульсация, синтез этих белков значительно усиливается и в результате возникающего их избытка они начинают выделяться в околосинаптическое пространство. Вышедшие белки обладают антигенными свойствами и могут взаимодействовать с определенными клонами клеток глии, которые имеют сходство с лимфоцитами и способны продуцировать соответствующие антигену антитела. Такие клетки обнаружены в мозге и показана их способность продуцировать антитела, отличные от тех, которые образуются в других тканях.
Таким образом, мозг является в какой-то мере автономной иммунной системой. Следовательно, есть основания считать, что вышедшие в межклеточное пространство белки-антигены индуцируют в клетках глии процессы, подобные тем, которые описаны для лимфоцитов — их трансформацию, размножение и способность к синтезу антител или антителоподобных веществ, специфически взаимодействующих с данными гликопротеидами мембран тех же нейронов. Связываясь с ними, они модифицируют синаптическую проводимость.
Способность к синтезу определенных антител данным клоном клеток глии может сохраняться в течение всей жизни так же, как это свойственно иммунологической памяти вообще. Столь же продолжительной оказывается модификация синапсов, что и служит в конечном счете основой. ДП„.
Преимуществом гипотезы об иммунологической природе ДПП является, во-первых, то, что она устанавливает тесное единство нейрологической памяти с близкой к ней филогенетически, но менее совершенной системой иммунологической памяти, а, во-вторых, позволяет объяснить многие факты, свидетельствующие о том, что клеткам глии принадлежат разнообразные функции, помимо трофических, защитных и изоляционных, обслуживающих метаболические процессы в нейронах, например, тот факт, что отношение числа клеток глии к числу нейронов растет по мере филогенетического совершенствования мозга.
Иммунохимическая гипотеза памяти не противоречит существующим представлениям об иммуногенезе как о защитном механизме. Прежде всего, образование антител — это процесс, происходящий не только при патологии, но и в норме для удаления компонентов организма, подлежащих на определенной стадии уничтожению. Очень существенным является также факт довольно строгой иммунообособленности мозга, так как без этого нельзя себе представить протекание строго ограниченных, локальных процессов образования антител, влияющих лишь на небольшие группы синапсов.
Таким образом, гипотеза об иммунохимических механизмах долговременной памяти имеет целый ряд преимуществ и обоснований. Однако для ее окончательного доказательства требуется, прежде всего, строгое экспериментальное подтверждение способности клеток глии вести себя подобно лимфоцитам в отношении иммунных реакций, Кроме того, пока нет прямых сведений об образовании антителоподобных факторов при консолидации, что, возможно, связано с чрезвычайной методической трудностью их выявления. Пока имеются лишь косвенные данные, указывающие на связь иммунных процессов с механизмами памяти. Согласно этим данным, введение адъюванта Фрейнда —стимулятора иммунных процессов — способно в значительной мере изменять скорость выработки различных поведенческих навыков у экспериментальных животных.
2. Информационная емкость нейрологической памяти
Все созданные до сих пор гипотезы, касающиеся вопроса о том, в каком виде хранится запоминаемая информация, можно подразделить на две основные категории. Согласно одной, основой памяти является синтез новых макромолекул, не существовавших ранее в организме, а в соответствии с другой, более обоснованной экспериментально, — субстратом памяти служит формирование устойчивых взаимодействий элементов нервной системы, при которых имеет место усиление или включение синтеза ряда соединений, не новых для данного организма. Последние, как было сказано, модифицируют работу синаптического аппарата, создавая возможности для предпочтительного проведения возбуждения в определенных нервных сетях. В этом случае основой нейрологической памяти могут быть системы, подобные тем, которые используются в ЭВМ, т.е. системы со связанными переключателями. Запоминание при этом состоит в фиксации определенного положения переключателей, образующих строго определенную систему связей, при которой прохождение сигналов будет направлено строго определенным образом. При такой аналогии каждый нейрон может быть уподоблен многопозиционному переключателю.
Возникает вопрос, обеспечивает ли такая модель достаточные возможности для хранения всей той информации, которая должна фиксироваться животным в течение его жизни. Согласно теории информации информационная емкость некоторой структуры может быть измерена в единицах информации по формуле I - log2N, где N — число возможных вариантов состояния структуры, a log2N — соответственно логарифм этого числа по основанию 2.
Определим возможную емкость нервной сети из m нейронов. Если на каждой нервной клетке расположено п синаптических окончаний, то число возможных состояний такой системы равно nm и ее информационная емкость при условии, что все состояния считаются равновероятными, составляет
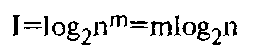
Число нейронов в мозге примем равным 54 О9, а количество синаптических контактов у каждого из них примем с точностью до порядка равным I02. Если хотя бы только 10% нейронов связано с памятью, то информационная емкость такой системы составляет
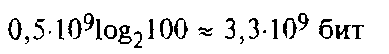
Теоретический максимум информации, которая размещается в течение жизни в самой долговременной памяти, можно рассчитать, исхода из сведений о максимальной скорости ввода новой информации в мозг человека и о той доли информации, которая надолго закрепляется в ДП. Эти показатели сравнительно просто поддаются экспериментальной оценке, если пользоваться легко анализируемыми источниками информации.
Исходя из экспериментальных оценок, максимальная скорость ввода информации составляет 10-30 бит/с. В ДП закрепляется не более одного процента вводимой информации, т.е. скорость поступления информации в ДП можно принять равной 0,1-0,3 бит/с. При продолжительности жизни, равной семидесяти годам, с учетом того, что человек бодрствует две трети жизни, непрерывно поглощая при этом информацию, общее количество информации, зафиксированной в ДП, будет порядка 109 бит. Это в три раза меньше приведенной оценки для информационной емкости мозга.
Что касается КП и ООП, то их объем много меньше, чем объем ДП. Предположим, продолжительность ООП составляет несколько часов и в течение этого периода в ней хранятся все сто процентов воспринятой информации, тогда информационная емкость этой формы памяти составит ~3-Ю5 бит, что в десять тысяч раз меньше рассчитанных возможностей мозга.
Так обстоит дело с возможностью хранения информации в виде фиксированных межнейронных связей. Попытаемся теперь ответить на вопрос, возможно ли запасание информации в структуре макромолекул с точки зрения их информационной емкости. Сопоставим данные о количестве информации, которую мозг человека может накапливать в течение жизни, с информационной емкостью линейных полимеров, используемых системами генетической памяти.
Четыре вида нуклеотидов могут образовывать 43 = 64 варианта триплетов. Информация, содержащаяся в одном триплете, следовательно, должна была бы составить log264 = 6 бит. На самом деле, поскольку код вырожден и некоторым триплетам соответствуют одни и те же аминокислоты, информация, содержащаяся в триплете, оказывается меньше и составляет приблизительно 4 бит. Информационное содержание одного аминокислотного остатка в полипептиде, казалось бы, должно быть таким же, как в триплете, но на самом деле оно оказывается меньше из-за различной частоты встречаемости аминокислот и при вычислении по формуле Шеннона составляет примерно 2 бит.
Следовательно, при информационном содержании памяти 109 бит для хранения этой информации требуется 2,5-Ю11 Д информационной РНК, около 5-10й Д ДНК и около 5 1010 Д белка. Согласно данным Хидена, в цитоплазме большого нейрона содержится 650 пг, а в ядре — 30 пг РНК, что равно, соответственно, 4-Ю14 и 1,8-1013 Д. В других нейронах содержание РНК меньше, но все равно оно колеблется около Ю13 Д. Это в несколько сот раз больше, чем требуется для обеспечения ДП.
Количество ДНК в нейронах уступает содержанию РНК. ДНК находится в основном в ядрах и составляет там -6-Ю12 Д, но и эта величина оказывается приблизительно в десять раз больше величины, требуемой для обеспечения памяти. Другими словами, десятой доли количества ДНК или сотой доли РНК, содержащейся в нейроне, достаточно для хранения нейрологической памяти, которую человек фиксирует в течение жизни.
Доля белка, содержащегося в нейронах, необходимая для фиксации энграммы, оказывается еще меньше.
Итак, биополимеров одного нейрона с избытком достаточно для обеспечения как ограниченной во времени, так и долговременной памяти мозга. Более того, количество ДНК в хромосомах нейрона таково, что, следуя цепи рассуждений, можно дойти до предположений о генетической передаче какой-то доли приобретенной нейрологической информации. Однако такое утверждение противоречит экспериментальным данным и теоретическим представлениям современной генетики.
Приведенные расчеты следует оценивать лишь как доказательство заведомой, колоссальной избыточности информационной емкости макромолекул клеток мозга. Очевидно также, что только из оценок информационной емкости макромолекул не вытекает необходимость существования в мозге огромного количества нервных клеток. Иначе говоря, только с точки зрения количества информации нельзя сделать выбор между гипотезой о том, что память основана на межнейронных взаимодействиях, и гипотезой о непосредственном хранении памяти в биополимерах.
Не решает однозначно вопроса о способе хранения энграммы и тот факт, что ингибиторы синтеза ДНК не подавляют ни фиксацию, ни хранения следа в ДП. Если считать, что в ДП в течение суток включается около 2104 бит информации, то это составит примерно 107 Д вновь синтезируемой ДНК, т.е. всего миллионную долю ДНК, содержащейся в одной нервной клетке. Даже если допустить, что при запоминании синтезируются десятки идентичных молекул ДНК, то и в этом случае такую долю можно не уловить существующими аналитическими методами и не отметить нарушения запоминания такими ингибиторами, как, например, цитозинарабинозид, степень торможения синтеза ДНК которым составляет не намного более 95%.
Таким образом, вопрос о механизме хранения энграммы приходится решать другими методами. Результаты исследований в настоящее время все в большей степени свидетельствуют о предпочтительности гипотезы, согласно которой память хранится в виде структуры межнейронных взаимодействий.
3. Роль нейромедиаторов в регуляции памяти
Ввиду того, что процессы памяти тесно связаны с модификацией синаптических процессов, химические передатчики нервного возбуждения должны играть здесь принципиальную роль. К настоящему времени накоплен большой экспериментальный материал, касающийся значения нейромедиаторов в процессах памяти и обучения. Полученные результаты свидетельствуют о большой значимости основных медиаторов в этих процессах, хотя конкретные формы участия каждого медиатора, по-видимому, зависят от того, какой именно тип информации запоминается.
Так, хотя известно, что способность животных к обучению, в общем, положительно коррелирует с уровнем ацетилхолина и отрицательно — с активностью холинэстеразы в мозге, тем не менее выработка одних навыков сопровождается активацией, а других — снижением активности этого фермента. В большинстве случаев, однако, ацетилхолин способствует выработке условных реакций. Показано, что снижение содержания ацетилхолина в мозге ингибиторами холинацетилазы нарушает обучение, а его повышение ускоряет выработку оборонительных навыков. В ряде исследований показано, что вещества, нарушающие обмен ацетилхолина, вызывают амнезию, а фармакологическая активация ацетилхолиновых рецепторов облегчает и ускоряет обучение и стимулирует извлечение следа из памяти.
Важная роль в регуляции процессов памяти принадлежит системе биогенных аминов мозга. В детальных исследованиях Е.А.Громовой было показано, что при выработке условных реакций с отрицательным подкреплением происходит активация норадренергической системы, а при обучении с положительным подкреплением содержание норадреналина в мозге и скорость его метаболизма снижаются. Умеренная активация норадренергических процессов стимулирует выработку реакций с болевым подкреплением, но чрезмерное увеличение содержания этого медиатора в мозге приводит к нарушению выработки всех условных реакций.
Серотонин, напротив, облегчает выработку и хранение навыков, основанных на положительном подкреплении, и отрицательно влияет на формирование оборонительных реакций. По существующим представлениям норадренергическая и серотонинергическая системы являются в значительной степени антагонистами в отношении процессов памяти, и способность к выработке тех или иных навыков зависит не столько от абсолютного уровня содержания или метаболизма того или иного медиатора, сколько от соотношения активностей этих систем. Так, нарушения, вызванные увеличением содержания серотонина, могут быть компенсированы параллельной активацией норадренергической системы и наоборот. -
По мнению Е.А. Громовой, существует реципрокность серо-тонина и норадреналина в регуляции консолидации следов памяти.
Механизм их действия заключается в свойствах этих медиаторов пролонгировать многократную циркуляцию возбуждения в нейронных системах, связанных соответственно с положительным и отрицательным восприятием информации, что является необходимым для перехода нейродинамической фазы фиксации следа в фазу структурно-химических изменений.
Сведения, касающиеся участия дофамина в регуляции процессов памяти, неоднозначны. По некоторым данным, он, как и норадреналин, может стимулировать выработку условных реакций с отрицательным подкреплением. В работах Г. Маттиеса было показано, что дофамин и его агонисты при инъекции в гиппокамп ускоряют выработку условной реакции в лабиринте с болевым подкреплением. Им же было показано, что этот медиатор стимулирует включение лейцина и фукозы в белки гиппокампальных нейронов, а также снижает фосфорилирование белка В-50 и усиливает фосфорилирование фосфоинозитолди-фосфата в клетках гиппокампа. Учитывая сказанное, есть основания считать, что дофамин участвует в регуляции синаптических процессов, связанных с фиксацией следов памяти.
Роль других медиаторов в регуляции процессов памяти изучена в меньшей степени. Из числа достаточно надежно установленных фактов можно указать на роль глутаминовой кислоты, о которой было сказано в связи с гипотезой Линча и Бодри, и на многочисленные данные, свидетельствующие о выраженном угнетающем влиянии на запоминание и обучение со стороны ГАМК.
4. Нейропептиды - регуляторы памяти
С середины 60-х годов стало известно, что некоторые олигопептиды, представляющие собой молекулы из небольшого числа аминокислотных остатков, способны модифицировать процесс обучения и влиять на степень выработки, хранения и угасания приобретенных поведенческих реакций. Среди этих пептидов оказались ранее известные гормоны, их фрагменты, а также ряд других соединений, выполняющих в организме специфические регуляторные функции. Из пептидов, относящихся к числу гормонов, наиболее выраженным действием на процессы обучения и памяти обладают гормоны гипофиза — адренокор-тикотропный и вазопрессин.
При изучении влияния АКТГ на процессы памяти было показано, что главная роль в его действии принадлежит фрагменту АКТТ4_10, который оказывает на эти процессы практически такой же эффекту как и целый гормон. Положительным влиянием на обучение обладает также и еще более короткий отрезок АХТГ4_7, хотя его действие выражено слабее, чем у АКТГ4_ J0. Более короткие фрагменты не оказывают существенного влияния на процессы обучения и памяти.
Как было выяснено, стимулирующее влияние фрагментов АКТГ на обучение не связано с собственно гормональной функцией пептида, так как фрагменты-активаторы памяти лишены такой функции. Кроме того, установлено, что эти пептиды действуют непосредственно на процессы фиксации, хранения и воспроизведения памятного следа, а не на функции, связанные с активностью и вниманием во время обучения, ибо фрагменты АКТГ оказываются эффективными при введении их либо сразу после сеанса обучения, либо перед воспроизведением приобретенного навыка.
Гормон задней доли гипофиза — вазопрессин также обладает ярко выраженным положительным влиянием на выработку условных реакций у животных и функции, связанные с памятью у людей. Будучи введенным в чрезвычайно малых дозах, он ускоряет выработку и замедляет угашение приобретенных навыков, устраняет ретроградную амнезию, улучшает воспроизведение хранящейся в памяти информации. Стимуляция вазопрессином процессов памяти также не связана с его гормональным действием, так как такое же стимулирующее действие оказывают некоторые его аналоги и фрагменты, не вызывающие свойственных вазопрессину гормональных реакций.
Есть все основания считать, что АКТГ и вазопрессин либо их фрагменты, образующиеся в организме в результате расщепления гормонов, не только стимулируют запоминание при введении их извне, но постоянно функционируют в мозге в качестве регуляторов процессов памяти. В пользу этого утверждения свидетельствует целый ряд фактов. Во-первых, введение животным иммунной антисыворотки, специфически связывающей вазопрессин либо АКТГ4-10, приводит к значительному ухудшению их обучаемости. Во-вторых, крысы, у которых в результате мутации нарушен синтез вазопрессина, способны к обучению в значительно меньшей степени, чем животные с нормальным уровнем этого нейропептида. В-третьих, доказано, что в мозге существует обширная сеть вазопрессинергических нейронов, синаптические окончания которых особенно многочисленны в тех отделах, которые принимают активное участие в процессах, связанных с памятью и обучением.
Можно, таким образом, утверждать, что вазопрессин и АКТГ и их фрагменты являются специфическими регуляторами функций центральной нервной системы, имеющих прямое отношение к процессам фиксации, хранения и воспроизведения следов памяти. Помимо этих двух соединений существует еще несколько нейропептидов, которые можно считать относительно специфичными стимуляторами запоминания и воспроизведения энграмм.
Таблица 112. Некоторые стимуляторы запоминания и воспроизведения энграммы
|
Степень специфичности эффекта |
Стимуляторы |
|
|
Общая характеристика |
Вещество |
|
|
Относительно специфичные |
Регуляторные пептиды |
Вазопрессин и некоторые аналоги, дипептид pEDa, pEGa, АКТГ и некоторые аналоги. Ряд других регуляторных пептидов модулируют запоминание, но лишь в особых условиях эксперимента |
|
Непептидные соединения |
Пирацетам и его аналоги, некоторые ганглиозиды |
|
|
Агенты широкого спектра действия |
Вещества, связанные с метаболизмом РНК |
Оротат, метилглюкаминоротат, РНК различной полимерности и происхождения |
|
Нейрости мулл торы |
Фенилалкиламины, фенилалкилоиднонимины |
|
|
Некоторые антидепрессанты Некоторые холиномиметики и ингибиторы ацетилхолинэстеразы в ограниченном интервале доз |
||
Непептидные специфические стимуляторы памяти практически неизвестны. Единственным таким соединением, широко использующимся в клинике, эффект которого молило считать несомненным, является пирацетам. Интересно, что молекула пирацетама, химически родственная ГАМК, в то же время близка по конформации к некоторым пептидам, которые также существенно стимулируют запоминание и, в свою очередь, сходна по структуре с активными фрагментами вазоирессина.
Что касается других непептидных соединений, обладающих стимулирующим действием на процессы памяти, то их действие, скорее всего, является неспецифическим, осуществляемым благодаря общей активации деятельности ЦНС Достаточно активным стимулятором памяти является оротовая кислота, действие которой направлено на синтез уридиимоно-фосфата и, следовательно, на образование РНК.
Известно, что нейропептиды могут служить как самостоятельными медиаторами в синаптических окончаниях нейронов, так и кофакторами классических медиаторов, вместе с которыми они могут находиться либо в одной везикуле, либо в различных везикулах в пределах одной терминала.
Есть основания полагать, что такое сочетание группы активных веществ в пределах одной терминали является в большинстве случаев, если не во всех, необходимым для нормального функционирования синапса. Возможно, оно обеспечивает способность пресинаптического аппарата регулировать уровень освобождения медиатора и чувствительность к приходящим стимулам.
Известно, что нейропептиды-спутники способны значительно повышать сродство рецептора к основному медиатору. Например, вазоактивный интестинальный пептид увеличивает сродство ацетилхолиновых рецепторов к ацетилхолину более чем в десять тысяч раз. Это свойство пептидов может иметь большое значение, так как они, как правило, гораздо стабильнее, чем непептидные медиаторы. Если период полураспада у последних колеблется от нескольких долей секунды до минуты, то для многих пептидов он может составлять несколько минут и более. В результате создаются условия для того, чтобы проводимость синапса увеличивалась на время, значительно превышающее продолжительность КПМ.
Выделяющиеся в синаптических окончаниях пептиды способны влиять на описанные выше нейрохимические реакции в нейронах, которые могут быть связаны с консолидацией следов памяти. Установлено, что АКТГ, взаимодействуя с постсинаптическими рецепторами, увеличивает образование внутриклеточной цАМФ. Результатом этого может быть подавление фосфорилирования упоминавшегося синаптосомального белка В-50. Следующим звеном в цепи возникающих реакций будет являться снижение уровня фосфорилирования фосфоинозитидов, уменьшение отрицательного заряда мембраны и изменение состояния ионных каналов. Известно, что вазопрессин также оказывает влияние на уровень фосфорилирования белка В-50. Следовательно, кроме кратковременных эффектов нейропептидов-спутников, связанных с их действием на сродство рецепторов к основному медиатору, можно представить себе их более длительное действие на поляризацию других, более отдаленно расположенных мембран и на синаптическую проводимость.
Действие нейропептидов на постсинаптические рецепторы не обязательно должно быть обусловлено их локализацией в одном синаптическом окончании с непептидными медиаторами. Возможен и такой вариант, когда в районе одного постси-наптического рецептора расположены в непосредственной близости синаптические окончания двух нейронов, один из которых выделяет классический, а другой — пептидный медиатор. Оба медиатора реагируют с соседними участками постсинаптической мембраны таким образом, что пептид изменяет ее реакцию на выделение основного медиатора. В этом случае реакция постсинаптической клетки на этот медиатор в большой мере будет зависеть от того, пришел ли одновременно импульс или серия импульсов от пептидергического нейрона,
Изложенные предположения о роли нейропептидов в процессах нейронной пластичности и памяти не обязательно должны относиться исключительно к вазопрессину и АКТГ, т.е. тем пептидам, которые несомненно способны стимулировать память при