Кровоносна система
Вивчення токсичного впливу фосфорорганічного пестициду діазинону у п’яти різних концентраціях дозволило авторам роботи зробити висновок про кореляцію вираженості морфологічних та фізіологічних змін у Melanotaenia duboulayi (гіпертрофія та гіперплазія зябер, закупорка кровоносних судин, потовщення епітелію зябрових пелюсток, посилена секреція слизу) від концентрації токсиканту.
При дослідженні токсико-кінетичних показників фенітротину в організмі європейського вугра, порівнюючи фактори біонакопичення для дослідних риб, які утримувались у розчинах пестициду в концентрації 0,02 та 0,04 мг/л вченими доведено, що швидкість поглинання токсиканту та його кількісний вміст в тканинах риб залежить від концентрації пестициду в розчині. Найвищий фактор біоконцентрації визначено для вугрів, експонованих у 0,04мг/л розчині токсиканту. Крім того, незалежно від концентрації фенітротіону у воді його накопичення в печінці сягало стабільного рівня (0,09-0,10 мкг/г ткани) через 48 годин при вмісті 0,02 мг/л та через 72 години при 0,04 мг/л. Однак при більш високій з досліджуваних концентрацій через деякий час спостерігалось швидке підвищення цього показника (до 0,45 мкг/г тканини). Після переносу риб у чисту воду вони швидко елімінують накопичений пестицид: рівні екскреції були відповідно 0,06 та 0,04 год-1 для вказаних концентрацій речовини. Тими ж дослідниками було проведено ряд експериментів для визначення впливу розчинів фенітротіону у вищезазначених концентраціях на рівень енергетичних сполук (глікогену, протеїну, жиру) в тканинах вугра. Незалежно від концентрації відмічено зниження рівня всіх досліджуваних сполук та зроблено висновок про те, що метаболічні порушення, викликані дією пестициду, не нормалізуються в період відновлення протягом тижня.
Дослідники з Фінляндії перевіряли дію препарату РСВ-77 в дозах 1-100 мкг/л на ембріони райдужної форелі. Накопичення пестициду в ікрі виявлено на третій день експерименту, рівень токсиканту при вихідних дозах в 1 і 10 мкг/л становить 185 та 1221 нг/г відповідно. При дозуванні РСВ-77 100 мкг/л інтенсивність нагромадження пестициду у тканинах виявилась меншою, ніж при нижчих концентраціях, однак на 7 день вона різко зросла. Таку динаміку накопичення РСВ-77 автори пояснюють збільшенням швидкості його метаболізма за участю монооксигеназної системи Р-450-залежної та глутатіон-S-трансфераз.
Крім того, в літературі зустрічаються відомості про зміни локомоторної та соціальної поведінки золотої рибки (Carassius auratus L) у відповідь на дію гербіцидів атразина та діурона в різних концентраціях: 0,1; 1,0; та 10 мг/л.
Російські вчені довели залежність між збільшенням концентрації токсичної речовини і зменшенням часу існування осетрових риб на всіх стадіях розвитку від зиготи до личинки у розчинах пестицидів.
Російськими вченими на прикладі коропових риб досліджено реакції імунної системи на короткочасну та хронічну дію фосфорорганічного пестициду карбофосу, а також вплив забруднення важкими металами та іншими пестицидами на імунну систему різних видів риб.
Дослідженнями останніх років доведено, що препарати 2,4-Д здатні впливати на синаптичні ефекти завдяки зміні ліпідних структур збуджуваної мембрани клітини. При внесенні препаратів 2,4-Д у розчин, що омиває внутрішню поверхню препарату ізольованого нерва жаби (яка, як і риби, належить до пойкілотермних тварин і більшу частину життя проводить у водному середовищі) з сумісно інервованим шматочком шкіри призводить до зміни різниці потенціалів на рівні нейроепітеліальних синапсів. Причому великого значення для визначення величини змін набуває концентрація гербіциду у промивній рідині. Так, при концентрації 0,1 та 1 ммоль різниця потенціалів зазнає змін відповідно на 47,2 та 68,9%.
2.3 Залежність стійкості риб до токсикантів від температури середовища та пори року
Оскільки риби відносяться до пойкілотермних тварин, то вплив температури зовнішнього середовища на ріст, розвиток, інтенсивність інших фізіологічних процесів дуже великий. Крім того, доведено, що різні абіотичні чинники пов’язані як між собою так і з біотичними чинниками. Зокрема, від температури залежить розвиток рослинних і тваринних організмів, якими живиться риба, насиченість води киснем та інш. Тому при вивченні взаємовідносин між концентрацією токсичної речовини і впливом її на організм риб не можна не враховувати температурний чинник, що визначає не лише інтенсивність обмінних процесів, а й рівень чутливості та стійкості риб до токсикантів [39].
Адаптації організму риб до змін температури вивчено досить повно. Є багато літературних джерел, в яких описано комплекс біохімічних, фізіологічних, морфологічних, поведінкових адаптацій, що зменшують екстремальну дію цього фактора середовища. Біохімічні зміни в організмі риб, викликані коливаннями температури, мають велике значення, оскільки у своїх дослідженнях ми вивчали комплексну дію токсикантів і температурного режиму на організм риб.
Пошуки зв’язку термостійкості організму зі складом ферментів - актуальне питання сьогодення.
Досить широко вивчається залежність енергетичного обміну у водних ектотермних тварин від температури. Взагалі вивченню функціонального стану гліколізу та ЦТК в тканинах риб під дією змін температури води присвячено багато робіт, оскільки інформація про стан цих процесів необхідна для розуміння механізмів енергозабезпечення адаптації їх до екологічних факторів, в тому числі й до температури. Зокрема, досліджуючи активність окремих ферментів цих циклів, можна судити про стан протікання відповідних реакцій гліколізу та ЦТК. Для більш повного вивчення температурної залежності регуляції та протікання вищезгаданих процесів, було вивчено зміни концентрації самих метаболітів, таких як піруват, лактат, оксалоацетат, ά-кетоглутарат та малат. Виявлено, що при збільшенні температури водного середовища від 10 до 30˚С в організмі коропа спостерігається перебудова шляхів генерування енергії за рахунок посилення інтенсивності гліколізу і гальмування реакцій ЦТК.
Оскільки температурна аклімація риб суттєво відображається на компонентах обміну аденілових нуклеотидів, що мають безпосереднє відношення до забезпечення організму енергією, відомі також дослідження обміну аденілових нуклеотидів у риб при їх температурній акламації [39].
Багаточисельні дослідження свідчать про зміни в активності аеробного та анаеробного метаболізму при холодовій акклімації. При вивченні механізма температурної компенсації на клітинному рівні було встановлено, що при низьких температурах відбувається збільшення маси мітохондрій (їх відносного об’єму в клітинах чи тканинах). Так, наприклад, у коропа, акклімованого до 2єС, мітохондрії займають 25% об’єму червоних м’язових волокон, а при акклімації до 28єС - лише 14%.
Деякі автори вважають, що холодова акклімація пов’язана зі зміною характеру експресії генів у риб, що мешкають у холодних водоймах. Причому експресія індукується у коропа лускатого при зниженні температури води з 25 до 6˚С, а у даніо-реріо до 12˚С. Активацію експресії виявлено через 2 години після дії холоду з піком через 12 годин.
Як зазначалось вище, температура води відіграє вирішальну роль у визначенні стійкості риб до токсикантів при незмінних концентрації та часу їхньої дії, оскільки сезонні та добові коливання температури, а також перепад температур, викликаний викидами стічних вод, можуть суттєво змінити їх стійкість до токсикантів шляхом зміни інтенсивності обміну. Крім того, дані, накопичені фізіологами та екологами риб про залежність рівня обміну риб від температури, викладені на початку даного розділу, дозволяють зробити припущення про важливу роль температурного фактора у визначенні швидкості та рівня накопичення токсикантів та величини порогової концентрації речовини у водоймі [41].
При дослідженні залежності швидкості розвитку токсичного процесу та часу загибелі піддослідних риб при збільшенні температури на 10є С отримані переконливі дані про зниження стійкості риб до органічної речовини - токсафену у 3 рази.
Вченими виявлено зв’язок між стійкістю риб до отрут органічного ряду та температурою. В роботах перевірявся токсичний вплив фенолу, суміші фенолу та крезолу, а також мета крезолу в температурному режимі від 10є С до 25є С. Результати дослідів свідчать про зменшення тривалості життя піддослідних риб у розчинах токсикантів при підвищенні температури. Крім того, зміни часу існування риб у токсичному середовищі до загибелі неоднакові при підвищенні температури на 10є С в області високих (15-25є С) та низьких (5-15є С) температур: при вищій температурі прискорення загибелі піддослідних риб виражене значно більше. При збільшенні температури середовища сумісно з токсикозом відмічено також змінення таких показників токсикорезистентності, як латентний період інтоксикації, швидкість та процент загибелі тварин.
Виникає питання про вплив попередньої адаптації риб до температури середовища на рівень їх стійкості до отрут. Всупереч очікуванням Лук’яненка В.І. зі співробітниками, час загибелі адаптованих до високої температури риб значно зменшився порівняно з часом загибелі неадаптованих, що кардинально не узгоджується з пропозицією Вінберга Г.Г. стосовно того, що адаптація риб до низьких температур пов’язана з підвищеним рівнем обміну, а до високих - зі зменшенням його інтенсивності.
Деякі автори намагаються дати оцінку впливу токсичних речовин на здатність риб розрізняти різну інтенсивність прояву абіотичних факторів, зокрема температури. При дослідженні дії органічних токсикантів на температурний преферендум струмкової форелі (Salmo trutta morpha fario L), виявлено, що високі концентрації досліджуваних речовин призводили до вірогідного зниження рівня температури, якій риби надавали перевагу, порівняно з контролем. Тобто можна зробити висновки про поведінкові зміни риб у вищезгаданих умовах.
Цікаві дані щодо безпеки використання пестициду базограну для рибоводства надані Махно П. М.: виявляється, що максимально можливі концентрації токсиканту проявляються для коропа різного віку при різних температурах: для малька - при 17-19є С, а для цьогорічки - при 12є С.
Матеріали Першого Конгресу іхтіологів Росії містять дані про тісний зв’язок між температурою води і часом загибелі риб при токсикозі пестицидами (базогран-М та інш): з підвищенням температури збільшується швидкість загибелі осетрових риб.
На думку В.І. Лук’яненка існує необхідність внесення суттєвих коректив в уявлення про роль температурного чинника у визначенні ступеня стійкості риб до токсикозу. Крім того, сезонні особливості метаболізму, його циклічність має неабиякий вплив на токсикорезистентність риб. Ефект зміни температури токсичного розчину проявляється через існуючий у даний момент рівень та направленість метаболізму, що склалися в процесі еволюційного розвитку [41].
Сезонні зміни обміну речовин - питання, що здавна і до сьогоднішнього дня цікавить дослідників. Доведено, що в період зимівлі змінюється хімічний склад м’язів та інших органів риб, ліпідний склад печінки, взагалі відбуваються зміни у ліпідному, вуглеводному та білковому обмінах. Дослідження активності ферментів вуглеводного обміну морських видів риб показали, що у більшості випадків активність ферментів (зокрема ЛДГ та СДГ) зростає в інтервалі природної для Чорного моря температури (5-25˚С), сягаючи максимуму при 25˚С, температурна залежність активності знаходиться у відповідності з термічною екологією виду риб та залежить від періоду річного циклу.
Виходячи із загальнофізіологічних уявлень, можна зробити висновок про неабиякий вплив сезонного фактора на токсикорзистентність риб. Однак, у літературі нами знайдено дуже мало відомостей про нього. Зокрема, Лук’яненко зі співробітниками, досліджуючи токсикорезистентність карасів (Carassius carassius L) у розчинах фенолу різної концентрації дійшли висновку, що різниця у стійкості риб у різні пори року визначається сезонними особливостями у метаболізмі карася і проявляються у деякому зниженні стійкості риб до найбільш високих концентрацій токсикантів у лютому та значному зменшенні часу існування риб при будь-яких концентраціях фенолу у червні. Зазначені відмінності пояснюються, напевно, тим, що взимку у карася рівень обміну речовин значно знижується порівняно з іншими порами року.
2.4 Вікові та видові особливості стійкості та чутливості риб до токсикантів водного середовища
Дослідження ролі вікового чинника у визначенні стійкості риб до отрут важливе для розуміння шляхів впливу токсикантів у природній водоймі на популяцію виду в цілому та на окремі стадії життєвого циклу, а також для вірного розв’язання проблеми біологічного нормування гранично допустимих та мінімальних летальних концентрацій отрут. Надзвичайно велике значення має вивчення вікових особливостей відповіді на отруєння для оцінювання рівня токсикорезистентності даного виду риб, яке автор пропонує проводити в період її максимального зниження та з урахуванням саме цього “вузького" місця у життєвому циклі виду.
Рядом авторів відмічено, що у різних видів риб стійкість до отрут органічної природи, як правило, знижується в процесі онтогенетичного розвитку. Причому мінімум стійкості спостерігається у статевозрілих особин.
Зниження стійкості риб до отрут органічної природи по мірі дозрівання різних функціональних систем, діяльність яких визначає рівень реактивності організму пояснюються авторами діяльністю центральної нервової системи та її синаптичних структур, оскільки токсична дія отрут органічного походження проявляється шляхом порушення її діяльності. Певне значення при цьому може мати і гіпоталамо-гіпофізарно-адреналова система, що відіграє важливу роль у підтриманні гомеостазу. На ранніх етапах онтогенезу постійність внутрішнього середовища та механізми, що її регулюють, не мають належного розвитку, внаслідок чого організм здатний переносити значні відхилення від оптимального рівня [34].
Строганов Н.С. та Пажитков А.Т. висловлюють протилежну точку зору, стверджуючи, що найбільш вразливими стадіями онтогенезу риб є стадії личинки і малька. Подібні відхилення в оцінці стійкості окремих етапів онтогенезу пояснюються, напевне, різною хімічною природою отрут, і, як результат, різним механізмом їхньої дії на організм.
Досліджуючи дію хлорорганічних пестицидів на чахонь (Pelecus cultratus L) в період раннього онтогенезу вчені відмічають вповільнення темпів ембріогенезу, загальмованість ядерних перетворень на стадії гаструли, а також зупинку розвитку в ранній профазі.
При вивченні дії пестициду базограну на коропа різного віку автором виявлено, що найбільш чутливими до токсичного ефекту являються мальки риб. Цьогорічка проявляє вже значно більшу стійкість до забруднення. Так, якщо для малька СК50 становить 460,2 мг/дм3, то для цьогорічки цей показник збільшується у 2,4 рази і сягає 1100 мг/дм3.
Зі збільшенням маси тіла риб в процесі росту та розвитку польськими вченими доведено збільшення вмісту хлорорганічних пестицидів у м’язах.
Дослідження, проведені по визначенню впливу засобів захисту рослин (в т. ч. пестицидів) на ікру та личинки осетрових риб, показали, що найменш стійкими до токсикозу виявились ранні етапи ембріогенезу (від початку дробіння до формування ембріона, особливо стадія гаструляції), найбільш стійка стадія - пульсуючого серця. Далі відмічається невпинне зменшення токсикорезистентності від стадії передличинки до стадії личинки.
Визначення рівня токсичності речовин виявиться неповним без врахування видових особливостей чутливості та стійкості до них риб, вивчення яких має важливе значення для розуміння адаптаційних можливостей різних видів риб, а також для направлених змін складу рибогосподарської водойми у відповідності до можливості потрапляння у них токсикантів [34].
Так, при вивченні порівняльної токсичності 2,3,7,8-тетрахлордибензо-р-диоксину (ТХДД) для семи прісноводних видів риб в ході раннього розвитку, запліднену ікру пімефалеса, канального сома, сига, медаки, чукучана, звичайної щуки та даніо інкубували у воді з різними концентраціями ТХДД. Результати експерименту свідчать про найбільшу з досліджуваних видів чутливість до токсикозу у сига (175 нг/г ікри), найменшу - у даніо (2610 нг/г). Як бачимо, безпечні концентрації у представників різних видів відрізняються майже у 15 разів. Крім того, найбільш чутливим із раніше перевірених видів вчені називають озерного гольця-кристивомера.
При дослідженні токсичності пестицидів (БХС, ДДТ, диельдрину та альдрину) для мішкозябрового сома, коропа і молочної риби виявлено, що мінімальну сприйнятливість до більшості із застосованих речовин проявляє мішкозябровий сом, а максимальну - короп.
На токсикантів гідробіонти реагують по-різному, в залежності від систематичного положення, філогенетичного рівня, віку, статі, функціонального стану, біомаси, чисельності популяції, спадкової схильності, вмісту кисню у воді та багатьох інших факторів. Реакція (відгук) гідробіонтів на вплив токсичних агентів - інтоксикація, або токсичний ефект, тканинному, організм енному та надорганізменному рівнях.
Під токсичним ефектом розуміють патологічні зміни у функціонуванні організму під впливом токсикантів.
Важливе вирішальне значення в процесі інтоксикації гідробіонтів має концентрація токсикантів. Великі концентрації викликають гостру токсичність, яка призводить до загибелі гідробіонтів, у короткий проміжок часу: години, хвилини і навіть секунди. Загибелі тварин, як правило, передують судороги (корчі), гальмування або короткочасне прискорення пересування у воді, зміна положення тіла (у риб - пересування “на боці", положенням черевом догори), асфіксія, “хапання” повітря, вискакування з води. Іноді у тварин змінюється забарвлення тіла [34].
Найнебезпечнішим в екологічному відношенні наслідком накопичення токсикантів у трофічних ланцюгах є підрив плодючості як безхребетних, так і риб, оскільки це веде до поступової деградації гідрофауни, падіння видового різноманіття та зменшення біологічної продуктивності водойм.
2.5 Вплив гідрохімічних показників при визначенні токсичного ефекту
Як показують дослідження суттєве значення для організму риб мають хімічні властивості води, зокрема газовий режим, водневий показник, окисленість, наявністі біогенних речовин, твердість води тощо.
Вивчаючи зміни в організмі риб при адаптації їх до певних гідрохімічних умов автори відмічають, що від насиченості води киснем, величини рН, концентрації вільної вуглекислоти в першу чергу залежить не тільки їх нормальна життєдіяльність але й стійкість до токсикантів. На думку автора, зниження токсикорезистентності риб при дефіциті кисню не залежить від природи отруйної речовини і повністю визначається особливостями дихальної активності організму. Зменшення концентрації кисню у воді викликає складний комплекс порушень діяльності багатьох функціональних систем, деякі з яких мають вирішальне значення у визначенні швидкості проникнення і накопичення токсичних речовин в організмі.
При вивченні сумісної дії змін рН та токсикозу органічними речовинами з’ясувалось, що реакція середовища має два шляхи впливу на організм гідробіонтів: зміни токсичності діючої речовини за рахунок хімічних перетворень, обумовлених кислотністю середовища та змінення інтенсивності обміну і споживання кисню досліджуваними тваринами [12].
При аналізі літературних даних стосовно твердості води прослідковується два можливих шляхи впливу кальцію на стійкість риб до токсикантів: один з них полягає у зміні розчинності токсичної речовини, що призводить до утворення осадів та зниження шкідливості розчинів; другий шлях заключається в тому, що іони кальцію виступають у якості фізіологічних антагоністів (зокрема для важких металів), знижують проникність клітин і зменшують проникнення отрут всередину організму.
Водневий показник (рН) є одним з важливих факторів середовища. Найбільше сприятливо для більшості риб значення рН, близьке до нейтрального. При значних змінах в сторону кислого або лужного середовища зростає кисневий поріг, послаблюється інтенсивність дихання. Можливі границі рН, у яких можуть жити прісноводні риби, при інших рівних умовах залежать від видової приналежності. Найбільш витривалий карась і короп, щука переносить коливання рН у межах 4,8...8,0; струмкова форель - 4,5...9,5; короп 4,3...10,8.
Сольовий склад відіграє важливу роль у житті гідробіонтів. При цьому має значення як сумарна кількість розчинених у воді мінеральних солей, або солоність, так і іонний склад води. По загальній кількості розчинених речовин природні води умовно підрозділяють на 3 групи: прісні, солонуваті і солоні. У групу прісних входять води, що містять до 1 г/л, солонуваті - 1. .15 г/л і в групу солоних входять води із вмістом 15...40 г/л мінеральних розчинених речовин [9].
Чим більше солей розчинено у воді, тим вищий в ній осмотичний тиск, до якого чутливі гідробіонти. Маючи визначений сольовий склад, організми повинні підтримувати його сталість. Для цього в них існують різні механізми, що не тільки підтримують деяку різницю концентрації солей у середовищі і тілі, але і забезпечують стабільність концентрації в організмі окремих іонів і їх співвідношення. У мінеральному живленні риб істотну роль може відіграти захоплення різних іонів клітинами поверхні тіла, наприклад з'єднання сірки, фосфору й інших мінеральних елементів.
Особливе значення для живлення фітопланктону і вищої водної рослинності мають біогенні елементи - азот, фосфор, кремній, залізо й ін. На тваринні організми істотно впливає вміст у воді мікроелементів - кобальту, нікелю, марганцю, міді, цинку, стронцію й ін. Недостатня кількість або їх надлишок приводить до патології в розвитку, отруєнням і нерідко загибелі. Джерелом надходження мікроелементів у рибу є вода, рослинність, природний і штучний корми.
Органічна речовина присутня у воді в розчиненому і зваженому стані. Їх поділяють на автохтонні й алохтонні. Запаси автохтонних речовин поповнюються за рахунок фотосинтезу фітопланктону, макрофітів і хемосинтезу деяких бактерій, алохтонних - за рахунок виносу їх з водозбірної площі, надходження з атмосферними, а також іноді з побутовими і промисловими стоками. Частка розчиненої органічної речовини приблизно в сотні разів більша, ніж органічної речовини в живих організмах і детриті.
Такі легкозасвоювані органічні речовини, як цукри, амінокислоти, вітаміни й інші, мають важливе значення в житті гідробіонтів і в першу чергу в їхньому живленні. До зважених органічних речовин відноситься детрит, що складається з мінеральних і органічних часток, що поєднуються в складні комплекси. Детритом харчуються багато коловерток, ракоподібні, молюски, голкошкірі і багато риб [6].
Від біогенних елементів (фосфатів, солей азотної кислоти, мікроелементів), що забезпечують розвиток фітопланктону, залежить продуктивність водойми. Кількість кисню і вуглекислоти, величина рН, склад і біохімічний стан органічної речовини, а також компоненти сольового складу - наслідок життєдіяльності організмів, тобто результат інтенсивності біопродукційних процесів.
Значний вплив на хімічний склад води створюють кліматичні і гідрологічні фактори, до яких відносяться температура і світло. Ці фактори тісно пов'язані між собою і діють одночасно, викликаючи періодичні зміни в життєдіяльності гідробіонтів. У свою чергу, інтенсивність біопродукційних процесів, викликана цими факторами, позначається на зміні гідрохімічних показників. Змінюючи температуру води, можна активізувати або сповільнювати біохімічні процеси як в організмах, так і у водоймі. На її зміни реагують насамперед, фітопланктон і бактерії. Особливо великі ці зміна в сезонному аспекті.
В життєдіяльності організмів важливе значення має вуглець, азот і фосфор. Саме їх сполуки необхідні для утворення кисню й органічної речовини. Значну роль у круговороті біогенних елементів виконують донні відкладення. Вони є в одноу випадку джерелом, в іншому - акумулятором органічних і мінеральних ресурсів водойми. Надходження їх із донних відкладень залежить від рН, а також від концентрації цих елементів у воді. При підвищенні рН і низкій концентрації біогенних елементів збільшується надходження у воду фосфору, заліза й інших елементів з донних відкладень.
Основними показниками при оцінці інтенсивності біопродуктивних процесів є абсолютний і відносний вміст кисню. Дослідження вмісту кисню, у водоймі використовуються для розрахунків величини первинної продукції і деструкції органічної речовини, що утвориться в основному кормі для всіх гетеротрофних організмів. Не менш важливі дані можна одержати і при аналізі змін рН, вільної вуглекислоти, біогенних елементів, перманганатної і біхроматної окислюваностей, біохімічного споживання кисню (БПК). При цьому особливо важливо знати співвідношення між гідрохімічними показниками, наприклад, між киснем і вуглекислотою, між БПК і окислюваністю, між величиною добової деструкції і та ін. Для характеристики біопродукційних процесів істотне значення мають дані про амплітуду добових і сезонних змін кисню й окислюваності, про вміст біогенних елементів.
У природних водах, там, де процеси ґрунтоутворення і розпаду (мінералізації) органічної речовини збалансовані, величина насичення води киснем, з урахуванням її температури, близька до 100%. Однак у багатьох випадках, насамперед у продуктивних водоймах, фотосинтетичні і біохімічні процеси змінюють цю закономірність [6].
Водойми мають визначену рибопродуктивність, що залежить від сукупності умов, зокрема від кормових ресурсів. У рибництві під природною рибопродуктивністю водойми розуміють сумарний приріст маси риби, отриманий протягом одного вегетаційного періоду з одиниці площі за рахунок природної кормової бази. Виражається ця рибопродуктивність у кілограмах або тоннах на 1 га площі водойми. Величина цього показника не є постійною і змінюється в залежності від якості води і ґрунту, кліматичних і метеорологічних умов, виду вирощуваної риби, її віку, щільності посадки риби. Найбільш високу природну рибопродуктивність мають ставки, розташовані на родючих ґрунтах, що постачаються водою джерелом з родючим водозбором і знаходяться в районах із тривалим вегетаційним періодом. У рибництві за основу приймають середню рибопродуктивність за кілька років.
З кліматичних і метеорологічних умов, що впливають на формування природної кормової бази, на розвиток і ріст риб, найважливішим є температурний режим. Відповідно до кількості днів у році з температурою повітря вище 15 °С територія країни розділена на 7 рибоводних зон. При визначенні природної рибопродуктивності потрібно враховувати не тільки рибоводну зону, але і ґрунту, на яких знаходиться водойма, для цього існує поправочний коефіцієнт. Для середніх за родючістю ґрунтів (підзолисті суглинкові, супіщані, вилужені чорноземи й ін) він дорівнює 1, для малопродуктивних ґрунтів він складає: галові - 0,4, торф'янисті - 0,5, піщані - 0,6, високородючі ґрунти (чорноземи й ін) - 1,2.
Рибопродуктивність, одержувана за рахунок природної їжі, залежить від стану кормової бази ставків і ступеня її використання рибою. Утворення у водоймі природної їжі проходить складним біологічним шляхом. Матеріальну й енергетичну основу всіх наступних етапів продукційного процесу у водоймі складає новотворення органічних речовин з мінеральних у результаті життєдіяльності рослинних організмів.
У результаті росту і розвитку рослинних організмів у водоймах відбувається безперервне новотворення їх біомаси. Рівень первинної продукції, обумовлений фізіологічними властивостями водоростей і факторами середовища, є основним регулятором інтенсивності й ефективності усього біопродуктивного процесу. Біологічне продукування відбувається у формі утворення первинної і вторинної продукції, під якими розуміють відповідно приріст біомаси автотрофів (рослинних організмів) і гетеротрофів (тваринних організмів) [6].
Процес автотрофного живлення гідробіонтів, тобто утворення ними органічної речовини з мінеральних речовин, є єдиним, при якому у водоймі виникає "першоїжа". За рахунок її живуть усі гетеротрофні гідробіонти як рослинноїдні, так і м'ясоїдні. Так, молодь більшості видів риб на ранніх стадіях розвитку споживає водорості, а для деяких видів вища і нижча водна рослинність - важливе джерело живлення протягом усього життя.
Таким чином, усі живі організми водойм утягуються в процеси круговороту речовин, який включає наступні ланки: синтез органічної речовини у водоймі і надходження органічної речовини у водойму з водозбірної площі; розкладання органічних речовин у водоймі (мінералізація); споживання і перетворення розкладених речовин бактеріальними, рослинними і тваринами організмами; споживання живих організмів, що синтезують органічну речовину з неорганічної.
Утворення органічної речовини у водоймах відбувається в процесі фотосинтезу зеленими організмами планктону (водоростями і зеленими бактеріями) і бентосу (нижчими і вищими рослинами), а також у процесі хемосинтезу бактеріями.
Зелені рослини, що беруть участь у процесі фотосинтезу (діатомові, зелені, синьозелені й інші водорості), вимагають для свого розвитку визначених умов - наявності біогенів і мікроелементів, а також певної температури. Так, діатомові водорості розвиваються звичайно при температурі 16...18 °С. Синьозелені водорості з'являються при більш високій температурі, при наявності фосфору до 0,02 мг/л і азоту до 0,08 мг/л води. Зелені водорості вимагають великої кількості азоту.
У водойму також надходять органічні речовини. Їхня кількість залежить від характеру водозбірної площі, клімату, ґрунту, рослинного покриву, характеру господарської діяльності людини. Органічні речовини, що надійшли з донних відкладень і з водозбірної площі, а також організми, що розмножилися при фотосинтетичній діяльності і згодом відмирають (фітопланктон, макрофіти, фітобентос), розкладаються і перетворюються при участі бактерій і найпростіших. При цьому мікроорганізми не просто руйнують органічну речовину, а перетворюють її, переводячи у більш доступний стан для живлення тварин. Одночасно протікають і процеси деструкції, у результаті яких у воду надходять біогени, необхідні для розвитку водоростей. При слабкій утилізації органічна речовина осідає на дно водойми, поглинає велику кількість кисню, погіршує кисневий режим. В міру нагромадження у водоймах невикористаної органічної речовини відбувається старіння екосистем. Воно відбувається повільніше, якщо основними продуцентами органічної речовини є планктонні водорості. Однак і при інтенсивному розвитку фітопланктону, але слабкому його споживанні рослинноїдними безхребетними, значна частина первинної продукції також залишається недовикористаною і відкладається на дні водойми. Таким чином, оцінка продуктивності водойми, проведена тільки по величині первинної продукції, може привести до помилок, оскільки значна частина органічної речовини випадає з продукційних процесів і може негативно впливати на їх протікання [9].
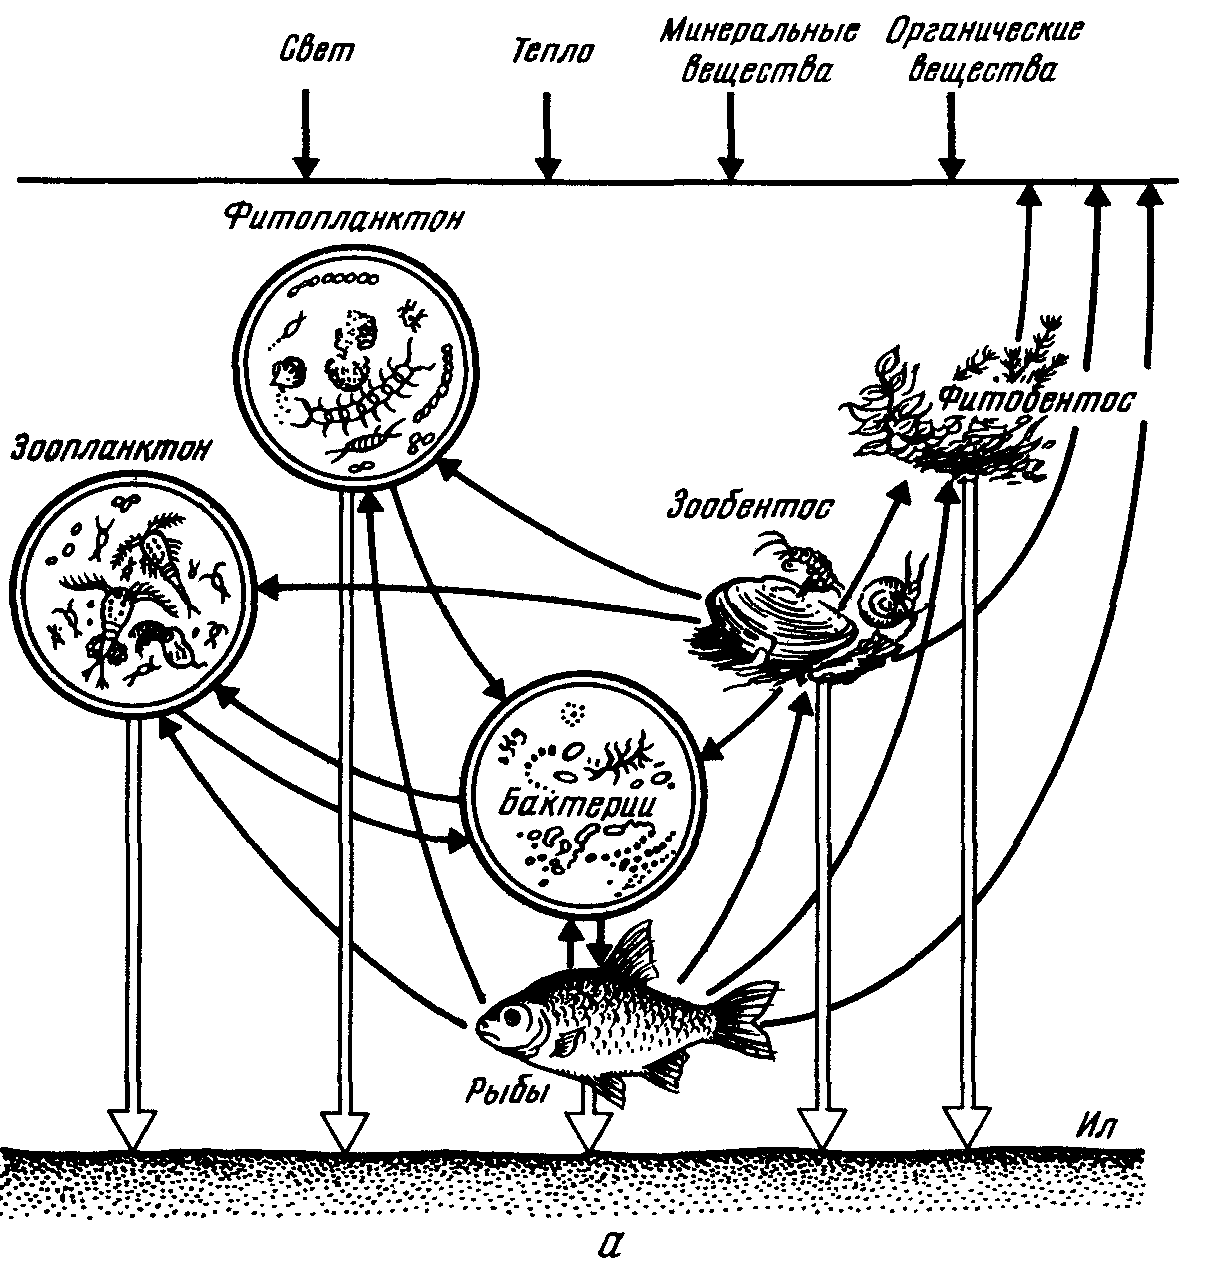
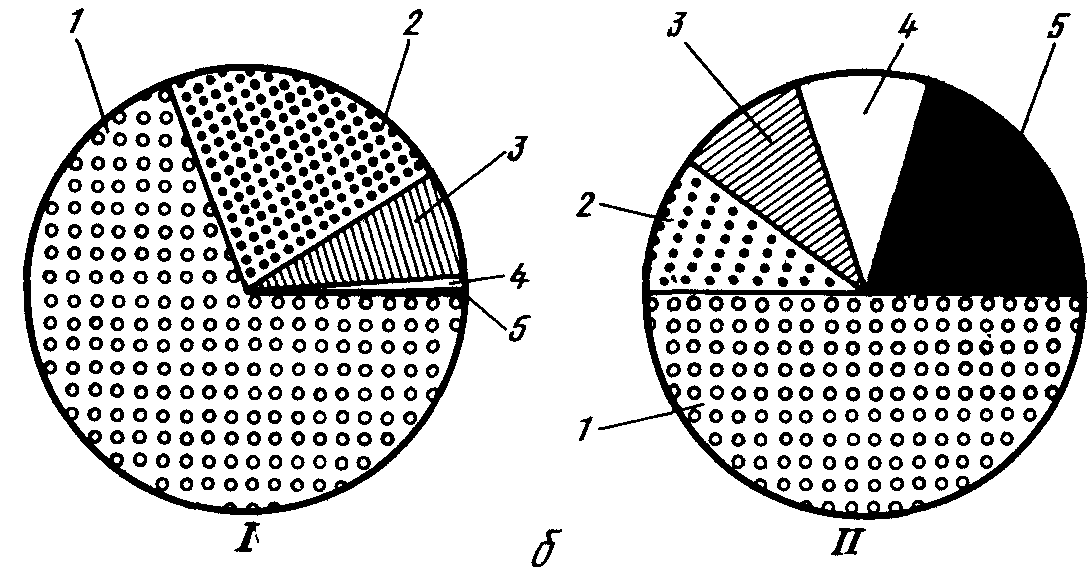
Рис 1. Процес круговороту речовин у водоймі (а) і частка риб у загальній біологічній продукції і біомасі природних водойм (б): І - співвідношення різних видів біологічної продукції, ІІ - співвідношення біомаси, 1 - фітопланктон, 2 - бактерії, 3 - зоопланктон, 4 - донні організми, 5 – риба.
Велике значення у водоймі мають бактерії, гриби і мікрозоопланктон (інфузорії, безбарвні жгутикові та ін). Річна продукція бактерій може досягати десятків і сотень грамів сирої маси на 1 м2. Величезну роль відіграють у вторинному продукуванні організми мікрозоопланктону і мікрозообентосу, зокрема найпростіші. У водоймах інфузорії