Роль пептидов в функционировании нервной системы
Сколь бы сложной ни представлялась эта картина действия и взаимодействия пептидов, следует постоянно помнить о существовании диалектического сочетания их прямых и опосредствованных каскадных эффектов.
Процессинг и посттрансляционная модификация нейропептидов
Общий принцип синтеза всех достаточно изученных НП состоит в образовании относительно больших пептидов-предшественников, из которых после завершения трансляции выщепляются протеазами соответствующие НП. Как правило, в состав пептида-предшественника входит одна или большее число последовательностей НП (иногда весьма различных по структуре) и так называемая сигнальная последовательность, способствующая миграции предшественника внутри клетки после завершения трансляции в шероховатой эндоплазматической сети и отщепляемая в конце этой части пути.
В 1984 году Gainer сформулировали гипотезу секреторных везикул, согласно которой процессинг биологически активных пептидов осуществляется в процессе передвижения молекул пропептидов по гранулярному ЭПР, комплексу Гольджи и в секреторных везикулах. Последние содержат полный набор ферментов процессинга, специфичный для данной клетки (ткани), а также специальные системы поддержки оптимальной рН среды.
Процессинг нейропептидов внутри секреторных гранул включает в себя эндо- и экзопротеолитические реакции, а также гликолизирование, сульфатирование, амидирование и фосфорилирование N- и С-концевых аминокислотных остатков, что предохраняет образовавшийся продукт от дальнейшей деградации.
Многие пептиды-предшественники образуют промежуточное соединение с гликозидами, которые оказывают стабилизирующее действие на некоторых стадиях процессинга и влияют на выбор мест атаки протеиназами. Протеиназы, обеспечивающие выщепление НП в течение нескольких десятков минут — часа после трансляции, не являются высокоспецифичными. В значительной мере точное выщепление обусловлено наличием в последовательности аминокислот пептидов-предшественников парных остатков. Они в первую очередь атакуются протеиназами, близкими по характеру действия к катепсину В и трипсину. Выщепляемые в этой фазе процессинга фрагменты во многих случаях уже представляют собой активные НП. Нередко эти фрагменты подвергаются дальнейшему протеолизу опять-таки с образованием новых НП. На этой фазе описано участие не только трипсиноподобных протеиназ, но и ряда других протеиназ, специфичность которых тоже не является очень высокой. Однако в различных нейронах и, возможно, даже в разных терминалях одного нейрона их набор может быть неодинаковым, что обеспечивает в конечном счете ту или иную специализацию на продукции строго определенных НП (единичных или их комплексов).
Так например, многие эндопептидазы, участвующие в процессинге энкефалинов обладают очень узкой субстратной специфичностью. Так, эндопептидаза, специфичная к связи Lys-Arg, не расщепляет связи Arg-Arg и Arg-Lys, что объясняют специфичностью фермента не только к гидролизуемой связи, но и, вероятно, к ближайшему аминокислотному окружению. Расщепление может происходить иногда не по парам остатков основных аминокислот, а по моноостаткам аргинина, лизина или каких-либо других аминокислот. Например, тиоловая прогормон-конвертаза расщепляет предшествен-ники энкефалинов с обеих сторон по моно- и диосновным остаткам аминокислот, но более высокую специфичность проявляет к моноосновным сайтам. Все этапы процессинга хорошо иллюстрируются схемой превращений проопиомеланокортина, из которого могут формироваться β-липотропин, АКТГ1-39, АКТГ1-24, АКТГ18-39 (так называемый CLIP), α, β- и γ-МSH, β-, γ- и α-эндорфины, Met-энкефалин, дезтирозильные производные эндорфинов, С-концевой дипептид β-эндорфина и, возможно, еще некоторые другие НП. Еще раз подчеркнем, что имеется в виду не одновременное образование всех этих НП в одном нейроне или терминали, а более или менее избирательное формирование их в зависимости от набора протеаз в данной клетке.
Обращает на себя внимание, что синтез ряда опиоидных пептидов, содержащих в качестве минимальной активной последовательности Met-энкефалин, обеспечивается по крайней мере двумя пептидами-предшественниками — проопиомеланокортином (локализованным главным образом, но не исключительно в гипофизе) и препроэнкефалином А (локализованным преимущественно, но опять-таки не исключительно в надпочечниках). Сходным образом лей-энкефалинсодержащие опиоидные НП выщепляются из мозгового пептида-предшественника продинорфина (препроэнкефалина В) и из уже упоминавшегося препроэнкефалина А, совмещающего в себе последовательности НП с лей-энкефалиновыми и мет-энкефалиновыми активными центрами. Однако общность минимальных последовательностей опиоидных НП, заключенных в разных пептидах-предшественниках, не означает идентичности содержащих их НП большого размера: продинорфин образует лей-морфин и перекрывающийся с ним каскад динорфинов разного размера (динорфин В (риморфин) и 4кД-ди-норфин), а также α- и β-неоэндорфины. Из препроэнкефалина А формируются самостоятельные НП, содержащие и лей-энкефалин, и мет-энкефалин (например так называемый пептид Е).
Сходные закономерности структуры можно отметить и для некоторых других пептидов-предшественников, хотя они, как правило, исследованы в гораздо меньшей степени, чем предшественники опиоидов, АКТГ и МСГ. Можно полагать, что дальнейший анализ биологической активности их фрагментов позволит выявить источники новых НП.
Обращают на себя внимание большие области пептидов-предшественников, где пока не идентифицированы НП. Хотя часть из них выполняет (судя по β -эндорфину, АКТГ) функции дополнительных "адресных" последовательностей, уточняющих взаимодействие НП преимущественно с определенной тканью иди органом, есть основания предполагать и в них наличие последовательностей еще не идентифицированных НП. В ряде случаев образование НП и процессы их распада переплетаются друг с другом. Например, один из путей распада β-эндорфина - НП, имеющего самостоятельное функциональное значение, ведет, как уже упоминалось, к образованию γ-эндорфина и опять-таки НП, имеющего уникальную функциональную характеристику; отщепление концевого аминокислотного остатка от γ -эндорфина приводит к образованию α-эндорфина, весьма своеобразного по функциям, и т.д.
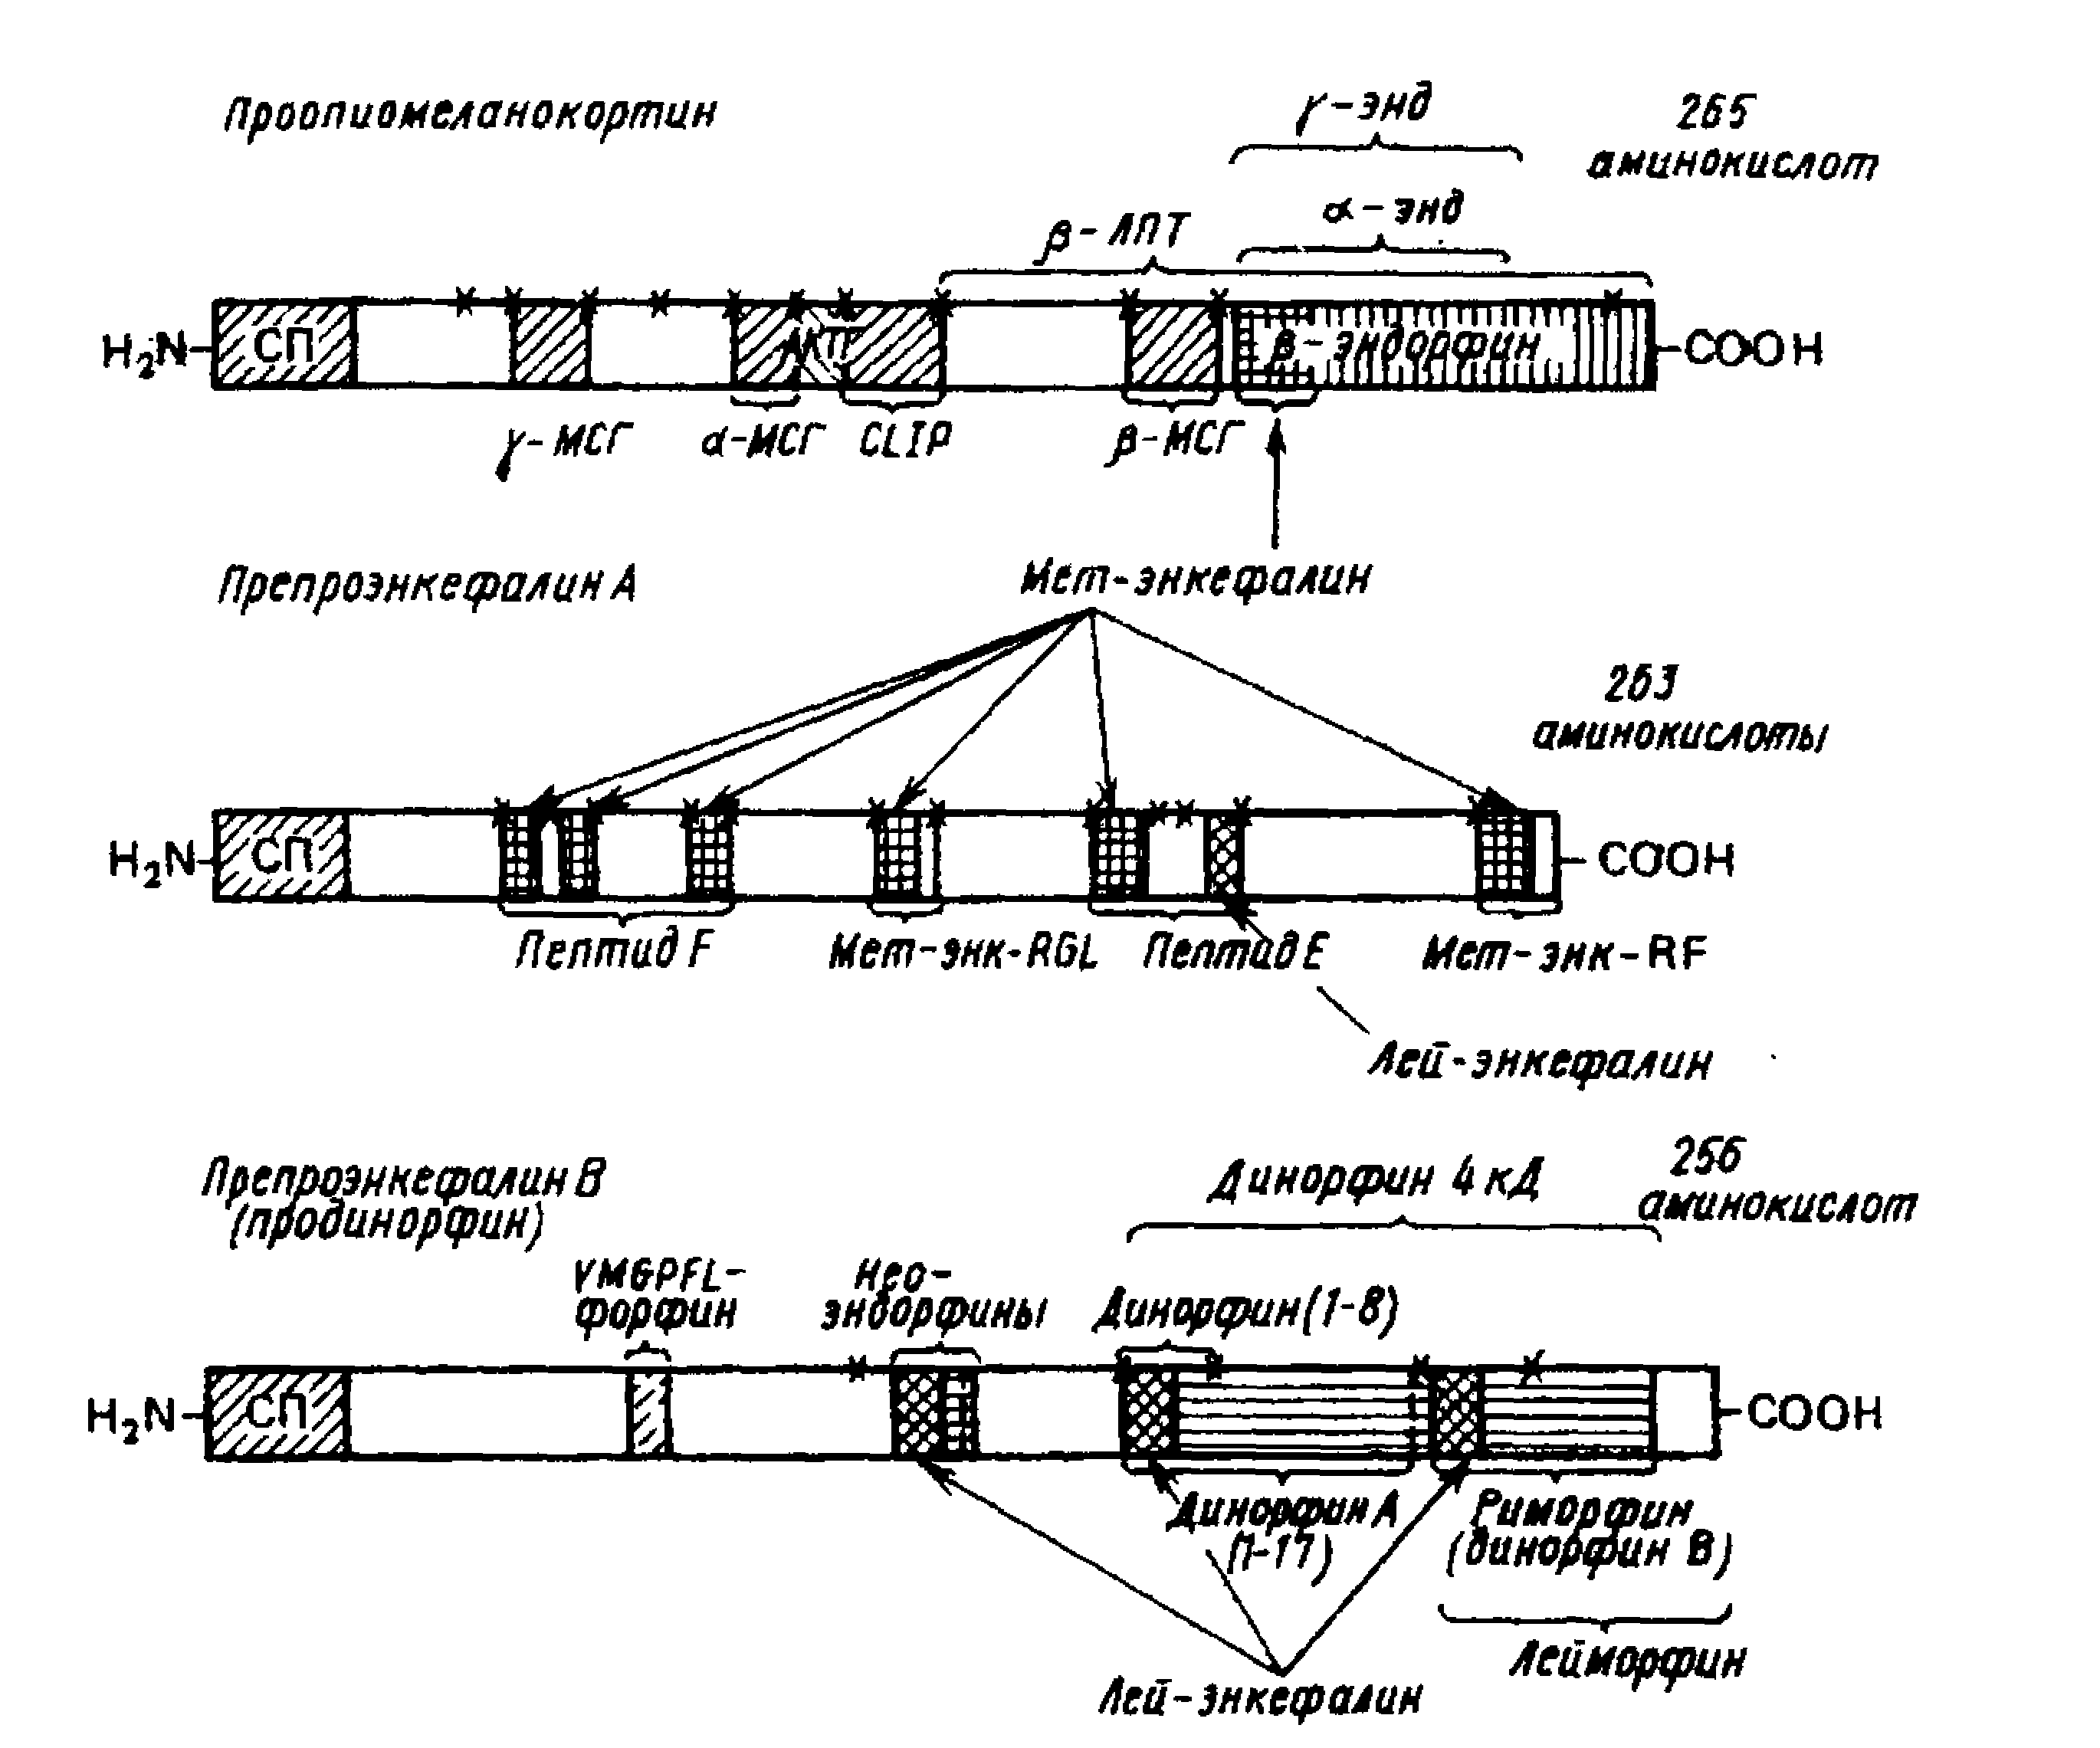
Регуляция метаболизма активных регуляторных пептидов определяется большим спектром воздействий, изменяющих гомеостаз на любом уровне - уровне клетки (транскрипция, трансляция и посттрансляционный процессинг), ткани (секреция и инактивация нейропептидов), а также на уровне организма в целом. Именно эти морфогенетические и биохимические особенности биогенеза и определяют уровень активных регуляторных пептидов в организме. При этом, несомненно, важная регулирующая роль в метаболизме нейропептидов принадлежит протеолитическим ферментам.
Метаболизм энкефалинов и ферменты их процессинга
Как было отмечено выше, известны три белковые молекулы, включающие в свою структуру последовательности энкефалинов: проопиомеланокортин, препроэнкефалин А (проэнкефалин), препроэнкефалин В (продинорфин). Последовательности, определяющие структуру энкефалина, входящего в состав молекулы предшественника, фланкированы парами основных аминокислот - аргинина или лизина. Структуры типа Arg-Lys, Arg-Arg, Lys-Lys, Lys-Arg узнаются ферментативными комплексами, осуществляющими протеолиз. В результате действия как эндо-, так и экзопептидаз секреторных везикул, так и внеклеточных ферментов, локализованных на внешней поверхности мембраны и в биологических жидкостях организма, происходит полное освобождение активного пептида из его предшественника.
Протеолитические ферменты являются специфичными на каждом этапе процессинга. Выделяют множество различных везикулярных эндопептидаз, осуществляющих специфическое ращепление: прогормон-конвертазы 1/3 и 2, динорфин-превращающий фермент, тиоловая прогормон-конвертаза, энкефалинобразующий фермент, IRCM-сериновая протеиназа I. Ряд внеклеточных ферментов также принимают участие в процессинге энкефалинов: эндопептидаза 24.15 (КФ 3.4.24.15), эндоолигопептидаза А (КФ 3.4.22.19), а также ангиотензинпревращающий фермент (АПФ, КФ 3.4.15.1), проявляющий наряду с эндопептидазной и дипептидилкарбоксипептидазную активность.
После действия эндопептидаз образуются пептиды, фланкированные остатками основных аминокислот, для отщепления которых необходимы специфические амино- и/или карбоксипептидазы. В процессинге энкефалинов важную роль играют экзопептидазы секреторных везикул, такие как аминопептидазо-В-подобные и карбоксипептидазо-В-подобные ферменты.
Одним из основных ферментов конечной стадии процессинга энкефалинов в мозге является карбоксипептидаза H. Этот фермент катализирует расщепление остатков основных аминокислот с С-конца белков пептидов предшественников, превращая их в активные формы. Локализация КП Н совпадает с распределением проэнкефалинов, регуляторных пептидов и их предшественников (адренокортикотропного гормона, вещества Р, вазопрессин, окситоцина, инсулина, глюкагона , натрийуретического фактора предсердий).
Сходной с КП Н субстратной специфичностью обладает фермент, получивший своё название от индивидуального ингибитора: PMSP(фенилметилсульфонилфторид)-ингибируемая карбоксипептидаза. Физико-химические свойство данного фермента сходны с таковыми у лизосомальной КП А. Известно, что карбоксипептидаза Н проявляет большее сродство к тем субстратам, у которых перед остатком основной аминокислоты находится остаток аланина или глицина, а PMSP-ингибируемая карбоксипептидаза преимущественно расщепляет субстраты, у которых предпоследними являются остатки лейцина и метионина. Кроме того, показано, что Кm КПН по отношению к DNS-Phe-Ala-Arg почти в 3 раза выше, чем по DNS-Phe-Leu-Arg, а Кm ФМСФ-ингибируемой КП по DNS-Phe-Ala-Arg почти в 2 раза ниже, чем по DNS-Phe-Leu-Arg. Поэтому можно предполагать, что КПН и PMSP-ингибируемая КП, участвуя в процессинге, отдают предпочтение различным регуляторным пептидам, при этом проэнкефалины являются, вероятно, более предпочтительным субстратом для PMSP-ингибируемой КП, нежели чем для КПН.
Помимо вышеперечисленных экзопептидаз секреторных везикул, в процессинг энкефалинов вовлекаются и внеклеточные экзопептидазы: карбоксипептидаза N (КФ 3.4.12.7) и карбоксипептидаза М.
Таким образом, в результате последовательного действия вышеуказанных ферментов, из высокомолекулярных предшественников высвобождаются активные энкефалины. Под влиянием какого-либо стимула (медиаторы, другие регуляторные пептиды, cAMP), возникающего по типу обратной связи или поступающего от других секреторных клеток, происходит изменение концентрации ионов Ca2+. Это приводит к выделению из клетки активных энкефалинов, которые мигрируют к клеткам-мишеням (через кровяное русло или синаптическую щель), где связываются со специфическими рецепторами. В последствии, они подвергаются расщеплению различными пептидазами, что приводит к их модификации или же к полной потере их биологической активности.
Дезактивация энкефалинов происходит при участии ферментов внешней поверхности мембраны: энкефалиназа А, нейтральная эндопептидаза 24.11, КФ 3.4.24.11), аминопептидаза М (КФ 3.4.11.2) и ариламидаза (энкефалинаминопептидаза, КФ 3.4.11.?).
Таким образом, очевидна взаимосвязь и взаимовлияние регуляторных пептидов и протеолитических ферментов в организме: энкефалины способны инициировать эндогенные механизмы регуляции активности ферментов, в свою очередь протеолитические ферменты способны регулировать уровень активных форм пептидов в организме, а также участвовать в «запуске» реакций регуляторного континуума, обуславливая нейромодуляторные свойства и биологическую роль регуляторных пептидов. Поэтому, учитывая тесную взаимосвязь пептидгидролаз с регуляторными пептидами и, в частности – с энкефалинами, можно заключить, что изменение активностей протеолитических ферментов при различных функциональных состояниях организма, развитии патологий и влиянии некоторых экстремальных факторов, является неотъемлемой частью биологического действия этих пептидов, в определенной степени объясняющей индивидуальные особенности их физиологических свойств в организме.
Краткие характеристики карбоксипептидазо-В-подобных ферментов
В связи с участием в процессинге, модификации и инактивации биологически активных пептидов, последнее время интенсивно исследуется семейство основных карбоксипептидаз. Они называются карбоксипептидозо-В-подобными ферментами и их субстратная специфичность связана с отщеплением остатков основных аминокислот с С-конца пептидов предшественников.
В организме млекопитающих обнаружено несколько форм этих ферментов.
Сarboxypeptidase U (M14.009)
| Другие названия | HBCPB, TAFI, arginine carboxypeptidase, brain-specific carboxypeptidase B, carboxypeptidase R, plasma carboxypeptidase B, thrombin-activatable fibrinolysis inhibitor |
| Classification | Clan MC >> Subclan (none) >> Family M14 >> Subfamily A >> M14.009 |
| Activity | |
| Catalytic type | Металл |
| NC-IUBMB | Subclass 3.4 (Peptidases) >> Sub-subclass 3.4.17 (Metallocarboxypeptidases) (Metallocarboxypeptidases) >> Peptidase 3.4.17.2 |
| Activity status |
Человек: активна Крысы: активна |
| Physiology | Фибринолитическая активность. Деградация активных пептидов и возможно β–амилоида 1-42. |
| Human genetics | |
| Gene symbol | CPB2 |
| Locus | 13q14.11 |
| Mouse genetics | |
| Gene symbol | Cpb2 |
| Position | 14:D2 |
| Substrate |
Bz-Gly-Arg (hippuryl-Arg) Bz-Gly-Lys (hippuryl-Lys) coagulation factor X light chain coagulation factor X light chain fibrin derived peptide furylacryloyl-Ala-Arg (FAAR) furylacryloyl-Ala-Lys (FAAK) Protein S100-A10 |
M14.004: carboxypeptidase N
| Другие названия | CPN1 g.p. (Homo sapiens), anaphylatoxin inactivator, arginine carboxypeptidase, carboxypeptidase K, creatine kinase conversion factor, kininase I, lysine carboxypeptidase, plasma carboxypeptidase B |
| Classification | Clan MC >> Subclan (none) >> Family M14 >> Subfamily B >> M14.004 |
| Catalytic type | Metallo |
| NC-IUBMB | Subclass 3.4 (Peptidases) >> Sub-subclass 3.4.17 (Metallocarboxypeptidases) >> Peptidase 3.4.17.3 |
| Activity status |
Крыса: активна Человек: активна |
| Physiology | Деструкция вазоактивного пептида |
| Human genetics | |
| Gene symbol | CPN1 |
| Locus | 10 |
| Mouse genetics | |
| Gene symbol | Cpn |
| Position | 19:D2 |
| Substrate |
Dns-Ala-Arg Hemoglobin subunit alpha furylacryloyl-Ala-Lys Protein S100-A10 C3A anaphylotoxin C4A anaphylotoxin bradykinin |
S10.005: serine carboxypeptidase D
| Другие названия | carboxypeptidase D, serine, carboxypeptidase II, wheat, carboxypeptidase WII |
| Классификация | Clan SC >> Subclan (none) >> Family S10 >> Subfamily (none) >> S10.005 |
| Каталитический тип | Serine |
| NC-IUBMB | Subclass 3.4 (Peptidases) >> Sub-subclass 3.4.16 (Serine-type carboxypeptidases) >> Peptidase 3.4.16.6 |
| Substrate |
furylacryloyl-Ala-Lys furylacryloyl-Phe-Leu |
| Структура 3D |
|
M14.005: carboxypeptidase E
| Другие названия | carboxypeptidase H, cobalt-stimulated chromaffin granule carboxypeptidase, crino carboxypeptidase B, enkephalin convertase, insulin granule-associated carboxypeptidase |
| Классификация | Clan MC >> Subclan (none) >> Family M14 >> Subfamily B >> M14.005 |
| Каталитический центр | Металл |
| NC-IUBMB | Subclass 3.4 (Peptidases) >> Sub-subclass 3.4.17 (Metallocarboxypeptidases) >> Peptidase 3.4.17.10 |
| Физиология | Участвует в биосинтезе пептидных гормонов и нейротрансмиттеров |
| Human genetics | |
| Gene symbol | CPE |
| Locus | 4 |
| Mouse genetics | |
| Gene symbol | CPE |
| Position | 8:B3.1 |
Substrate
Ac-Tyr-Ala-Arg
Bz-Phe-Ala-Arg
Dns-Phe-Ala-Arg
M14.006: carboxypeptidase M
| Классификация | Clan MC >> Subclan (none) >> Family M14 >> Subfamily B >> M14.006 |
| Каталитический тип | Metallo |
| NC-IUBMB | Subclass 3.4 (Peptidases) >> Sub-subclass 3.4.17 (Metallocarboxypeptidases) >> Peptidase 3.4.17.12 |
| Физиология | Деградация биоактивных пептидов |
| Human genetics | |
| Gene symbol | CPM |
| Locus | 12q15 |
| Mouse genetics | |
| Gene symbol | 5730456K23Rik |
| Position | 10:D2 |
| Substrate |
Bz-Ala-Lys Bz-Gly-Arg Bz-Gly-Lys Dns-Ala-Arg dynorphin A1-13 [Leu5]-enkephalin-Arg [Met5]-enkephalin-Lys bradykinin |
PMSP-ингибируемая карбоксипептидаза
Пока ещё мало изученный фермент, который расщепляет dansyl-Phe-Leu-Arg и отличается по молекулярной массе (100-110 кДа) от других карбоксипептидаз. Он имеет близкий к КР Н оптимум pH = 5,6 – 6,0. Не является метало ферментом, т.к. не ингибируется ЭДТА. Возможная биологическая роль данного фермента, это процессинг нейропептидов, в частности энкефалинов, хотя и этот вопрос довольно спорный. В настоящее время ведутся работы по выделению и очистке этого фермента, с целью изучения кинетики его действия м активного центра.
Заключение
Пептиды — одна из важнейших систем регуляции ГОМЕОСТАЗА. Этот термин, введенный в 30-х годах американским физиологом У.Кенноном, означает жизненно важное равновесие всех систем организма. По мере усложнения наших представлений о нормальной, а тем более патологической, физиологии это понятие уточнили как ГОМЕОКИНЕЗ, т.е. подвижное равновесие, баланс постоянно меняющихся процессов. Организм соткан из миллионов “гомеокинезиков”. Эта огромная живая галактика определяет функциональный статус всех органов и клеток, которые связуются регуляторными пептидами. Как мировая экономическая и финансовая системы — множество фирм, производств, заводов, банков, бирж, рынков, магазинов... А между ними — “конвертируемая валюта” — нейропептиды.
Все клетки организма постоянно синтезируют и поддерживают определенный, функционально необходимый, уровень регуляторных пептидов. Но когда случаются отклонения от “стационарности”, их биосинтез (в организме в целом или в отдельных его “локусах”) либо усиливается, либо ослабевает. Такие колебания возникают постоянно, если речь идет об адаптивных реакциях (привыкании к новым условиям), выполнении работы (физических или эмоциональных действиях), состоянии предболезни — когда организм “включает” повышенную защиту от нарушения функционального баланса.
Говоря о заболеваниях мозга, следует заметить, что в последние годы снова появилась информация о пептидах, особо причастных к какой-либо центральной патологии. В этом перечне — аллергический энцефалитогенный пептид, β-амилоид болезни Альцгеймера, нейротрофический пептид поврежденного мозга и др. Все они выделены из мозга, который охвачен соответствующей патологией, и имитируют таковую при перенесении экспериментальным животным. Для каждого из них установлена точная химическая структура, выявлены специфические рецепторы; но речь не идет о каких-то особых субстанциях. Эти пептиды, как правило, “осколки” миэлина, основного белка мозга, необходимого для его нормальной работы. Их присутствие служит иллюстрацией, как при определенных заболеваниях, вероятно вследствие инверсии нормального биосинтеза пептидов, они становятся фактором “зла”, провоцирующим развитие болезни в новой и еще более пагубной форме. Однако их выявление помогает найти конкретные с точки зрения нейрохимии причины патологии и, значит, подойти к возможности ее предупреждения и лечения.
Таким образом, выявлена огромная, хотя еще почти не изученная роль пептидов в функционировании нервной системы. Они оказывают влияние на возбудимость нервной ткани, выполняя роль медиаторов и участвуя в возвратном ингибировании нейронов выступают в роли модуляторов различных процессов, участвуют в создании межнейрональной связи. Пептиды могут быть не только кратковременными медиаторами химической передачи, но и долговременными регуляторами свойств мембраны и синаптического действия. Их действие на нейрональную активность часто выражается в изменении поведенческих реакций животных. Влияние пептидов на различные функции организма — на сосудистые реакции, высвобождение моноаминов, болевые реакции организма, терморегуляцию и, наконец, на сон, память и т. д, позволило предположить регулирование важнейших функций животных пептидными факторами. Связь пептидов с трансмиттероактивными аминокислотами и с моноаминами открывает большие возможности для химического кодирования в нервной системе.
Приведенные характеристики биологической активности НП —представителей различный семейств — далеко не исчерпывают всего многообразия их функций.
В заключение хочется обратиться к перу нейрогистолога, нобелевского лауреата С. Рамон-и-Кахаля, мыслившего образно и точно: “...сад неврологии представляет исследователю захватывающий, ни с чем не сравнимый спектакль. В нем мои эстетические чувства находили полное удовлетворение. Как энтомолог, преследующий ярко окрашенных бабочек, я охотился в красочном саду серого вещества мозга за клетками с их тонкими элегантными формами, таинственными бабочками души, биение которых, быть может, когда-то — кто знает? — прояснит тайну духовной жизни”.
Литература
Malcolm Dixon, Edwin C. Webb “Enzymes” Longman Group Ltd. 1979.
Р. Шмидт, Г. Тевс «Физиология человека» Москва «Мир» 1996
Ferdinand Hucho “Neurochemistry. Fundamentals and Concepts” VCH Verlagsgesellschaft mbH, D-6940 Weinheim (Federal Republic of Germany), 1986
И. П. Ашмарин и соавт. «Нейрохимия» Москва Изд. Института биомедициеской химии РАМН, 1996.
М. И. Прохорова «Нейрохимия» Ленинград, 1979
А. Уайт, Ф. Хендлер, Э. Смит, Р. Хилл, И. Леман «Основы биохимии» Москва: «Мир», 1981
Albert L. Lehninger “Principles of biochemistry” Worth Puplishers, Inc 1982
В. К. Плакунов «Основы энзимологии» М.: Логос, 2001.
Дж. Г. Николс, А.Р. Мартин, Б. Дж. Валлас, П.А. Фукс «От нейрона к мозгу» М.: Едиториал УРСС, 2003.
О.А. Гомазков «Нейропептиды — универсальные регуляторы. Почему?» //Природа № 4, 1999.
Л.Ф. Панченко, Н.В. Митюшина, Н.В. Фирстова, М.Т. Генгин «Метаболизм энкефалинов при различных функциональных и патологических состояниях организма» medi/pbmc/8890401.htm
А.Н.Вернигора, Н.В. Щетинина, М.Т. Генгин «Исследование активности основных (отщепляющих остатки аргинина и лизина) карбоксипептидаз у крыс разного возраста» // «Биохимия» № 10 т. 61, вып. 10, 1996
Н. Грин, У. Стаут, Д. Тейлор «Биология» М.: Мир, 1996.
Марри Р., Греннер Д., Мейес П., Родуэлл В. «Биохимия человека» М.: Мир, 2004
A.N. Vernigora, N.N. Nikishin, M.T. Gengin “Proteolytic Enzymes and Regulation of the levels of Active Neuropeptides” //Biochmistry (Moscow), Vol. 60, No. 10, 1995
Walker,J.B. & Bajzar,L. Complete inhibition of fibrinolysis by sustained carboxypeptidase B activity. The role and requirement of plasmin inhibitors. J Thromb Haemost (2007)
Aviles,F.X. & Vendrell,J. Carboxypeptidase B. In Handbook of Proteolytic Enzymes, 2 edn (Barrett,A.J., Rawlings,N.D. & Woessner,J.F. eds), p.831-833, Elsevier, London (2004)
.N. Vernigora, M.T. Gengin «Proteolytic Enzymes: Subcellular Location, Properties, and involvement in Neuropeptide Turnover. A Review» // Biochemistry (Moscow) Vol. 61, No 5. 1996
Ferrer,M., Zuck,P., Kolodin,G., Mao,S.S., Peltier,R.R., Bailey,C., Gardell,S.J., Strulovici,B. & Inglese,J. Miniaturizable homogenous time-resolved fluorescence assay for carboxypeptidase B activity. Anal Biochem (2003) 317, 94-98
Muller,C.A., Appelros,S., Uhl,W., Buchler,M.W. & Borgstrom,A. Serum levels of procarboxypeptidase B and its activation peptide in patients with acute pancreatitis and non-pancreatic diseases. Gut (2002) 51, 229-235
Mock,W.L. & Xu,D.H. Catalytic activity of carboxypeptidase B and of carboxypeptidase Y with anisylazoformyl substrates. Bioorg Med Chem Lett (1999) 9, 187-192
А.Н. Вернигора, М.Т. Генгин «Частичная характеристика основной фенилметилсульфонилфторид-ингибируемой карбоксипептидазы из головного мозга кошки» //Биохимия т. 60, вып 11, 1995
A.N. Vernigora, N.N. Nikishin, M.T. Gengin «On the interaction between the activities of carboxypeptidase H and angiotensin-converting enzyme» // Biochemistry (Moscow) Vol. 60, No 1, 1995
Marzban,L., Soukhatcheva,G. & Verchere,C.B. Role of carboxypeptidase E in processing of pro-islet amyloid polypeptide in {beta}-cells. Endocrinology (2005) 146, 1808-1817
Fricker,L.D. Carboxypeptidase E. In Handbook of Proteolytic Enzymes, 2 edn (Barrett,A.J., Rawlings,N.D. & Woessner,J.F. eds), p.840-844, Elsevier, London (2004)
Fricker,L.D., Plummer,T.H., Jr. & Snyder,S.H. Enkephalin convertase: potent, selective, and irreversible inhibitors. Biochem Biophys Res Commun (1983) 111, 994-1000
Fricker,L.D. & Snyder,S.H. Purification and characterization of enkephalin convertase, an enkephalin-synthesizing carboxypeptidase. J Biol Chem (1983) 258, 10950-10955
Fricker,L.D. & Snyder,S.H. Enkephalin convertase: purification and characterization of a specific enkephalin-synthesizing carboxypeptidase localized to adrenal chromaffin granules. Proc Natl Acad Sci U S A (1982) 79, 3886-3890.