Белки и нуклеиновые кислоты
2. НУКЛЕИНОВЫЕ КИСЛОТЫ
Нуклеиновые кислоты были открыты в 1868г. швейцарским врачом Ф. Мишером. Биологическая функция этого вещества оставалась неизвестной еще в течение почти столетия, и только в 40-х годах прошлого века Эвери, Маклеод и Маккарти установили, что нуклеиновые кислоты, отвечают за хранение, репликацию (воспроизведение), транскрипцию (передачу) и трансляцию (воспроизведение на белок) генетической (наследственной) информации. Короче, именно нуклеиновые кислоты определяют вид, форму, химический состав и функции живой клетки и всего организма в целом.
В 1953 г. Уотсон и Крик сообщили о расшифровке молекулярной структуры ДНК. В каждом живом организме присутствуют два типа нуклеиновых кислот: рибонуклеиновая кислота (РНК) и дезоксирибонуклеиновая кислота (ДНК). В то же время вирусы содержат только один какой-нибудь тип нуклеиновых кислот: либо РНК, либо ДНК.
Нуклеиновые кислоты – это высокомолекулярные соединения, размер которых сильно варьирует. Молярная масса транспортной РНК составляет 25000, тогда как отдельные молекулы ДНК обладают массой от 1 000 000 до 1 000 000 000.
Количественное содержание ДНК в клетках одного и того же организма постоянно и исчисляется несколькими пикограммами, однако в клетках разных видов живых организмов имеются существенные количественные различия в содержании ДНК. ДНК преимущественно сосредоточено в ядре, митохондриях и хлоропластах. РНК большей частью содержится в цитоплазме клеток. Содержание РНК, как правило, в 5-10 раз больше, чем ДНК. Соотношение РНК/ДНК в клетках тем выше, чем интенсивнее в них синтез белка.
Нуклеиновые кислоты обладают сильно выраженными кислотными свойствами и при физиологических значениях рН несут высокий отрицательный заряд. В связи с этим в клетках организмов они легко взаимодействуют с различными катионами и прежде всего с основными белками, образуя нуклеопротеины.
Состав нуклеиновых кислот
Нуклеиновые кислоты при полном их гидролизе распадаются на три типа веществ – азотистые основания (пуриновые и пиримидиновые основания), сахара (пентозы) и фосфорную кислоту.
Пентозы нуклеиновых кислот представлены D-рибозой или 2-D-дезоксирибозой. Оба эти сахара содержатся в составе нуклеиновых кислот в фуранозной форме и имеют b-конфигурацию:
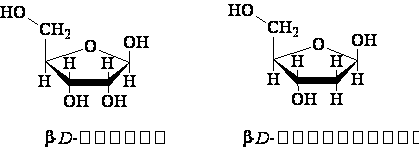
Нуклеиновая кислота называется рибонуклеиновой (РНК), если в ее состав входит рибоза, или дезоксирибонуклеиновой (ДНК), если в ее состав входит дезоксирибоза. Недавно установлено, что рибоза и дезоксирибоза не являются единственными углеводами, входящими в состав нуклеиновых кислот: в ряде фаговых ДНК и РНК некоторых видов раковых клеток найдена глюкоза.
Азотистые основания, которые обычно встречаются в нуклеиновых кислотах – это производные пурина аденин ( А) и гуанин (G)-и производные пиримидина – цитозин (С), тимин (Т) и урацил (U). Сами пурин и пиримидин в состав нуклеиновых кислот не входят.
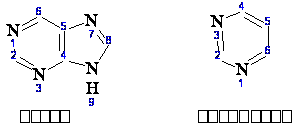
Строение основных азотистых оснований-компонентов нуклеиновых кислот:
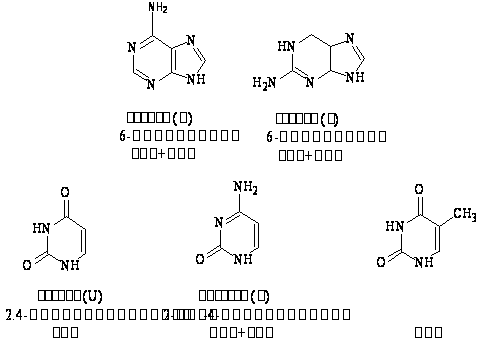
Цитозин, аденин, гуанин содержатся в нуклеиновых кислотах обоих типов, урацил входит только в состав РНК, а тимин в ДНК.
Для гуанина, цитозина, тимина и урацила известна кето-енольная таутомерия, однако кетоструктуры гораздо более стабильны и доминируют при физиологических условиях.
Таутомерия
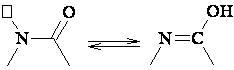
В нуклеиновых кислотах все оксосодержащие азотистые основания присутствуют в кетоформе.
В составе ДНК и РНК встречаются так называемые необычные или «минорные» азотистые основания. К ним относятся, например, 5-метилцитозин, 4-тиоурацил, дигидроурацил и др.
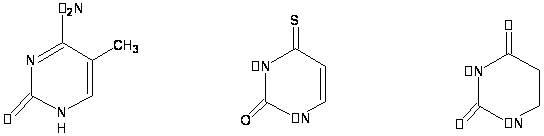
5- метилцитозин - тиоурацил дигидроурацил
( в ДНК) ( в тРНК) (в тРНК)
Рассмотренные пуриновые и пиримидиновые основания, а так же некоторые другие производные пурина и пиримидина, которые не входят в состав нуклеиновых кислот, часто содержатся в растениях в значительном количестве в свободном состоянии. Наиболее часто в свободном состоянии в растениях встречаются гипоксантин (6-гидроксиоксипурин), найденный в семенах горчицы и люпина. Ксантин (2,6-дигидроксиоксипурин) и аллонтоин очень широко распространены в растениях. В форме этих оснований, как и в форме амидов аминокислот, происходит запасание и транспорт азота в растениях.
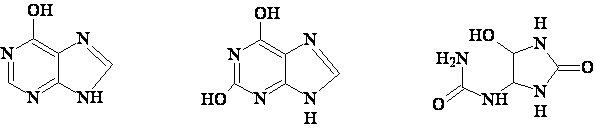
гипоксантин ксантин аллантоин
Пурины и пиримидины поглощают электромагнитную энергию в ультрафиолетовом (УФ) диапазоне, причем каждое соединение имеет характеристический спектр поглощения, однако для всех этих соединений максимум поглощения наблюдается вблизи 260 нм. Нуклеиновые кислоты так же поглощают в УФ-области. На этом свойстве основаны методы количественного определения нуклеиновых кислот.
В процессе обмена веществ у животных и растений пуриновые основания образуют такие продукты, как мочевая кислота, кофеин, теобромин, последние используются как лекарства.
Нуклеозиды
Азотистое основание с присоединенным к нему углеводным остатком, называют нуклеозидом. В нуклеозидах ковалентная связь образована С1-атом сахара и N1- атомом пиримидина или N9- атомом пурина, такая связь называется гликозидной. Что бы избежать путаницы в нумерации, атомы углеводной части отличают штрихом. Для наиболее распространенных нуклеозидов приняты тривиальные названия: аденозин, гуанозин, уридин и цитидин. Дезоксирибонуклеозиды называются дезоксиаденозин, дезоксигуанозин, дезоксицитидин и тимидин.
Например:
Пиримидиновый Пуриновый
рибонуклеозид дезоксирибонуклеозид
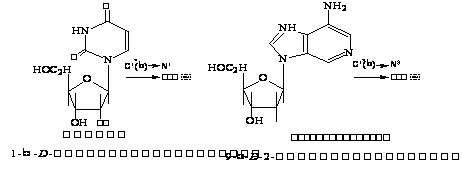
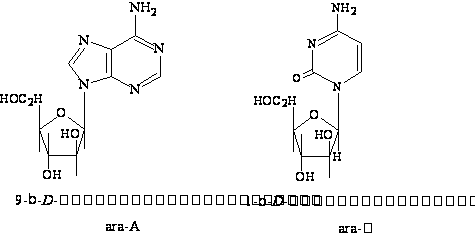
Нуклеозиды являются фрагментом структуры нуклеотидов; однако многие нуклеозиды встречаются в свободном состоянии. Некоторые из них обладают лечебными свойствами. Различные микроорганизмы выделяют арабинозилцитозин и арабинозиладенин, в состав которых входит b-D-арабиноза вместо рибозы. Эти вещества используются в качестве мощных антивирусных и антигрибковых агентов и против некоторых видов рака. Механизм действия ara-А и ara-С основан на ингибирование биосинтеза ДНК.
Нуклеотиды
Нуклеотиды – это фосфорные эфиры нуклеозидов. В образовании связи участвует 51-углеродный атом пентозы. В зависимости от строения пентозы все нуклеотиды можно разделить на рибонуклеотиды и дезоксирибонуклеотиды.
В зависимости от числа имеющихся остатков фосфорной кислоты различают нуклеозидмонофосфаты, нуклеозиддифосфаты и нуклеозидтрифосфаты. Все эти три вида нуклеотидов постоянно присутствуют в клетках.
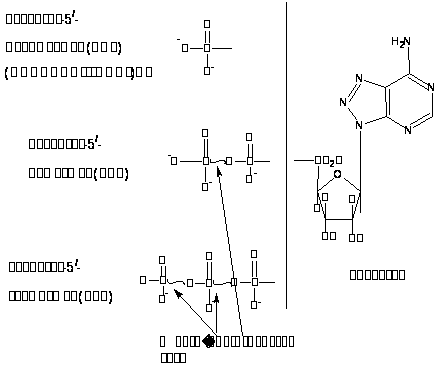
Рисунок 3 – моно-, ди- и трифосфонуклеотиды (51) аденозина.
Названия отдельных нуклеотидов часто обозначают сокращенно большими первыми буквами названий соответствующих оснований. Ниже приведены нуклеотиды, входящие в состав нуклеиновых кислот, и даны их условные сокращенные обозначения.
Таблица 2 – Сокращенные названия отдельных нуклеотидов
| Основание |
Нуклеотиды в составе РНК |
Нуклеотиды в составе ДНК |
Сокращенное обозначение |
|
Аденин Гуанин Цитозин Урацил Тимин |
Адениловая кислота Гуаниловая кислота Цитидиловая кислота Урациловая кислота Тиминовая кислота |
Дезоксиадениловая кислота Дезоксигуаниловая кислота Дезоксицитидиловая кислота Дезоксиуридиловая кислота Дезокситимидиловая кислота |
А G С U Т |
Нуклеотиды – это сильные кислоты, так как остаток фосфорной кислоты, входящий в их состав, сильно ионизирован.
Главная функция нуклеотидов в клетке состоит в том, что они являются составными частями нуклеиновых кислот.
Все нуклеозиддифосфаты и нуклеозидтрифосфаты содержат высокоэнергетические связи (обозначены значком «»»). При гидролизе этой связи освобождается от 30 до 50 кДж/моль энергии, в то время как при гидролизе обычной сложноэфирной фосфатной связи освобождается энергия равная 8-12 кДж/моль.
Под влиянием соответствующих ферментов фосфатные группы содержащие высокоэнергетические связи, могут быть перенесены на другие вещества. Таким образом энергия, накопившаяся в высокоэнергетических соединениях, может быть использована далее в обмене веществ. Например: АДФ и АТФ принимают участие в биосинтезе белка. Уридинтрифосфат (UТФ) и уридиндифосфат (UДФ) необходимы для действия ферментов, катализирующих превращения и синтез сахаров (СДФ и СТФ) цитидиндифосфат и цитидинтрифосфат принимают участие в биосинтезе фосфолипидов.
Циклические нуклеотиды были выделены в 1959г. Сазерлендом ( лауреат Нобелевской премии 1971г.) при изучении механизма действия некоторых гормонов при регулировании метаболизма углеводов. В циклических нуклеотидах фосфорная кислота связывает два атома кислорода пентозного остатка в одном и том же нуклеотиде. Известны три циклических нуклеотида – циклический аденозинмонофосфат (с АМФ), циклический гуанозинмонофосфат (с GМФ) и циклический цитозинмонофосфат ( с СМФ).
Эти нуклеотиды образуются из соответствующих нуклеозидтри-фосфатов под действием ферментов аденилатциклазы и гуанилатциклазы. В биологических процессах они выступают в качестве промежуточного посредственника регуляторного действия гормонов.
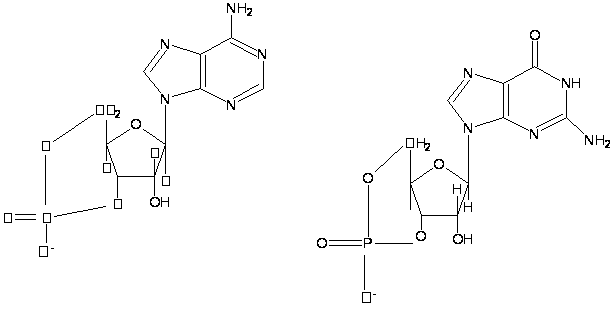
аденозин-3/,5/-цикломонофосфат гуанозин-3/,5/-цикломонофосфат
(3/,5/- сАМФ) (3/,5/-сGМФ)
Фосфатные остатки могут образовывать друг с другом кислотные ангидриды. Поэтому у нуклеотидов имеется возможность связываться друг с другом через фосфатные остатки. При этом возникают динуклеотиды с фосфоангидридной структурой.
К этой группе относятся некоторые кофакторы ферментов – НАД+ и НАДФ+ ( никотинамидадениндинуклеотид ), ФАД ( флавинадениндинуклео-тидфосфат) и т. д.
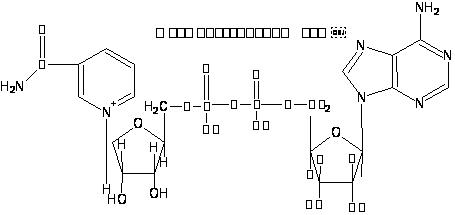
НАД+
Первичная структура нуклеиновых кислот
Нуклеиновые кислоты это полимеры, состоящие из нуклеозидмонофосфатов, соединенных фосфодиэфирными связями. Поскольку фосфатная группа участвует в образовании двух эфирных связей с участием 3/-и 5/-углеродных атомов сахарных остатков двух соседних нуклеотидов эту связь называют 3/- и 5/-фосфодиэфирной связью.
Ниже изображены короткие структурные фрагменты цепей РНК и ДНК, позволяющие представить соединение отдельных нуклеотидов в цепи.
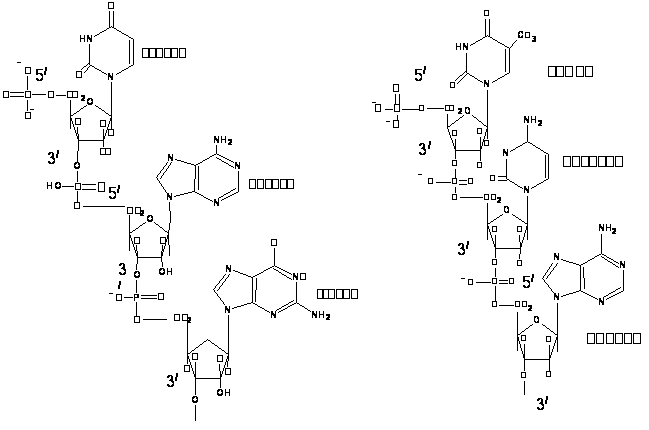
Рис. фрагмент РНК фрагмент ДНК
У полинуклеотида имеется 5/-конец со свободной фосфатной группой и 3/-конец со свободной ОН-группой. Фосфатные группы в этих цепях обладают сильнокислотными свойствами. При рН~7 фосфатная группа ионизирована полностью, поэтому в естественных условиях нуклеиновые кислоты существуют в виде полианинов (несут множество отрицательных зарядов).
Нуклеиновые кислоты отличаются друг от друга числом мононуклеотидных остатков в молекуле, нуклеотидным составом и порядком чередования нуклеитидных остатков, фактически оснований, поскольку пентозофосфатные части у всех мономеров одинаковы. Для краткого изображения первичной структуры нуклеиновых кислот пользуются однобуквенными символами нуклеозидов.
Поэтому первичная структура фрагмента РНК может быть представлена такой записью UAГААССЧЧЧЧЧЧЧЧ Запись структуры ДНК отличается приставкой « g» ( дезокси-);
g (ТСАГТГ –)-эти две записи, помимо символа «g» различаются еще тем, что в первой (РНК) не встречается символ Т ( тимин), а во второй (ДНК) не встречается символ U (урацил).
Таким образом, полинуклеотид записывается как последовательный набор конкретных нуклеотидных остатков от 5/-конца к 3/-концу.
Вторичная и третичная структуры ДНК.
Нуклеотидный состав ДНК (независимо от источников ее выделения) имеет общие закономерности, которые известны как правила Чаргаффа (по имени ученого, сформулировавшего эти правила).
1. Число пуриновых оснований (А+G) равно числу пиримидиновых оснований ( Т+С), т. е. отношение пуринов к пиримидинам равно единице.
2. Число остатков аденина равно числу остатков тимина, т.е. отношение аденина к тимину равно единице (А/Т = 1,0)
Эти количественные соотношения были подтверждены исследованиями других ученых и стали важной предпосылкой при установлении трехмерной структуры ДНК и помогли понять каким образом генетическая информация кодируется в ДНК и передается от одного поколения к другому.
Базируясь на данных рентгеноструктурного анализа и правилах Чаргаффа Дж. Уотсон и Ф. Крик в 1953г. предложили следующую модель строения ДНК. Согласно этой модели, молекула ДНК состоит из двух полинуклеотидных антипараллельных цепей (5/®3/)(3/®5/) спирально право-закрученных одна относительно другой таким образом, что углеводнофосфатная цепь находится снаружи, а пуриновые и пиримидиновые основания внутри перпендикулярно центральной оси схема ДНК. Эти две цепи соединяются между собой водородными связями, возникающими между пуриновыми и пиримидиновыми основаниями отдельных нуклеотидов, образуя специфические пары.
Тимин связан тремя водородными связями с аденином ТєА, цитозин двумя водородными связями с гуанином G = С. Эти пары оснований называются комплементарными парами оснований. Благодаря этому нуклеотидная последовательность одной цепи полностью комплементарна последовательности другой.
Парные основания могут охватывать миллионы оснований в ДНК. Это возможно только тогда, когда полярность обоих нитей различна, т.е, когда нити имеют различное направление (различную ориентацию). Кроме того, обе нити должны быть скручены друг вокруг друга в виде двойной спирали. РНК не может образовывать из-за стерических помех, благодаря 2/ - ОН групп рибозных остатков, подобную двойную спираль. Поэтому в РНК попарное соединение азотистых оснований находят только в пределах коротких участков одной и той же нити, и структура в целом менее регулярна, чем для ДНК.
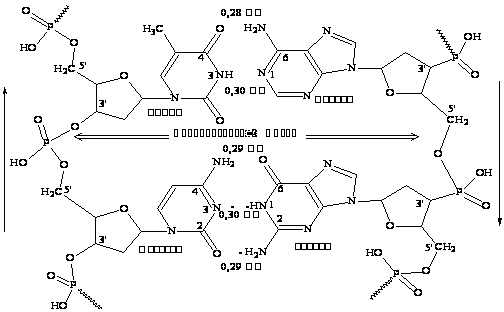
Рисунок 4 – Схема образования водородных связей между комплементарными азотистыми основаниями
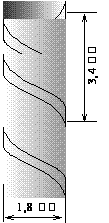
Рисунок 5 – Схематическое изображение двойной спирали ДНК
Водородные связи между парами оснований – не единственный вид взаимодействий, стабилизирующих двухцепочечную структуру. Молекула ДНК – полианион, и на ее поверхности локализовано множество отрицательных зарядов, что обеспечивает стабилизацию путем электростатических взаимодействий с неорганическими противоионами, например с Mg+2,или белками, содержащими большое количество положительно заряженных боковых цепей аминокислот – гистонами. Третий стабилизирующий фактор возникает благодаря гидрофобным взаимодействиям между азотистыми основаниями, которые уложены стопкой внутри спирали. Между нитями по всей длине ДНК лежат углубления – маленькая и большая бороздки.
Так как обе нити удерживаются вместе благодаря нековалентным взаимодействиям, то двойную спираль можно разделить нагреванием (денатурацией) на одиночные нити (рисунок 5). При медленном охлаждении структура двойной спирали снова восстанавливается. Денатурация ДНК играет важную роль в генной инженерии. В зависимости от рН среды, ионной силы раствора, концентрации воды и т.п. конфигурация двойной спирали может меняться. Методами рентгеноструктурного анализа доказано существование более десяти форм ДНК, которые различаются количеством пар оснований приходящихся на один виток, углом наклона оснований к вертикальной оси. Наиболее изучены А-, В-, С- и Т-формы ДНК. Предполагают, что каждая форма ДНК приспособлена для выполнения определенной биологической функции. А-форма ДНК с передачей информации от ДНК к РНК, В-форма – с биосинтезом ДНК и С-форма с хранением, упаковкой ДНК.
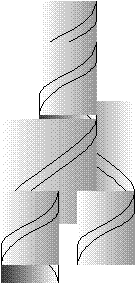
Рисунок 6 – разделение двойной спирали ДНК на одиночные нити
В последние годы появились данные о возможности существования левозакрученной биспиральной молекулы ДНК-Z-формы и SBS формы ДНК, у которой полидезоксирибонуклеотидные цепи располагаются бок о бок (лесенкой, без закручивания). Такая форма ДНК обеспечивает легкое распаривание и расхождение цепей ДНК, что очень важно при биосинтезе ДНК.
ДНК обладает специфической третичной структурой. Двухцепочечная спираль ДНК на отдльных участках может подвергаться дальнейшей укладке в суперспираль. Может приобретать кольцевую форму, или свертываться в клубок. Суперскрученная структура обеспечивает экономную упаковку огромной молекулы ДНК в хромосоме. Суперспирали соединяются с белками (гистонами), упакованными в бороздах, обеспечивая тем самым стабильность третичной структуры ДНК.
Структура РНК
В клетках любых биологических объектов содержаться три основных вида РНК: рибосомальная РНК(рРНК), транспортная РНК(тРНК) и информационная или матричная РНК(мРНК). Они являются одноцепочечными молекулами различной длины, различаются по локализации, свойствам, строении., функциям. В большинстве клеток содержание РНК в 5-10 раз превышает содержание ДНК. Основная часть РНК клетки–70-80% приходится на долю рРНК, которая содержится в рибосомах-внутриклеточных частицах, принимающих участие в биосинтезе белка рРНК образует каркас, к которому прикрепляются белки, образуя плотноупакованный рибонуклеопротеин. Нуклеотидный состав рРНК из разных источников сходен.
Существование матричной или информативной РНК (РНК-посредника передачи информации от ДНК в белоксинтезирующий аппарат клетки) было предсказано в 1957г., а выделена мРНК в 1962г. Содержание матричной РНК в клетке от 3% до 7% от общей суммы содержания РНК. Строение матричной РНК несколько специфично. В ее составе есть информативные участки, т.е. работающие как матрицы в процессе биосинтеза белка и неинформативные зоны. Предполагается, что неинформативные участки являются акцепторными при взаимодействии матричной РНК с рибосомой или отдельными белковыми факторами.
На 5/-конце молекулы РНК имеется участок, содержащий минорные нуклеотиды. Это часть так же неинформативна и называется «шапочка» или «кэп». Предполагают, что «кэп» защищает мРНК от разрушительного действия ферментов экзонуклеаз. На 3/-конце мРНК находится участок, содержащий от 50 до 400 остатков аденозинмонофосфата. Предполагают, что полиадениловый участок определяет время жизни мРНК, а так же участвует в процессе созревания и переноса м РНК из ядра в цитоплазму.
Название матричной РНК связано с функцией, которую она выполняет. Она служит матрицей, на которой синтезируется полипептидная цепь в рибосоме. Так же ее называют информационной так как она содержит информацию о том, какие аминокислоты и в какой последовательности, располагаются в белке. Эта информация представляет тройной нуклеотид, который называется кодоном. Каждый последовательно присоединенный набор из трех нуклеотидов (кодон) обеспечивает информацию для последовательного (упорядоченного) присоединения аминокислот при биосинтезе полипептида. Например, АИА-изолейцина, GAU-аспарагиновой кислоты и т.д. Последовательность UUUAUAGAU (читается по три нуклеотида UUU-AUA-GAU) определяет фрагмент трипептида фен-им-асп. В клетках синтезируются тысячи различных белков, поэтому существуют тысячи матричных РНК по структуре своей комплементарных отдельным участкам ДНК.
Содержание транспортной РНК 10% от общего содержания РНК, это самые малые по размеру молекулы РНК. Транспортная РНК не связана с клеточными структурами и находится в клетке в растворенном виде. Ее функция состоит в переносе, транспорте аминокислот к месту белкового синтеза – в рибосомы. Каждая тРНК переносит определенную аминокислоту. тРНК богаты минорными нуклеотидами.
Молекулы РНК, в отличие от молекул ДНК построены из одной нуклеотидной цепи, однако в этой цепи имеются комплементарные друг другу участки, которые могут взаимодействовать, образуя двойные спирали. При этом соединяются следующие нуклеотидные пары: Аденин-Урацил, Гуанин-Цитозин. Такие спирализованные участки (шпильки) обычно содержат небольшое число нуклеотидных пар и чередуются с неспаренными участками. Характерную вторичную структуру имеет транспортная РНК. Она имеет 4 спирализованные участка, и на плоскости эта структура напоминает фигуру клеверного листа. Кроме этого, имеется участок, содержащий нуклеотид комплементарный кодону матричной РНК, он называется антикодоном. С его помощью транспортная РНК прикрепляется к кодону матричной РНК. Имеется конец, который содержит остаток аденозинмонофосфата, к которому присоединяется соответствующая аминокислота. Третичная структура всех транспортных РНК схожа. Это позволяет всем им взаимодействовать с рибосомой. Незначительные отличия в пространственной структуре позволяет им взаимодействовать со специфическими ферментами тРНК синтезами, участвующими в биосинтезе белка. Третичная структура других видов РНК пока точно не установлена.
Рекомендуемая литература
Березов Т.Т., Коровкин Б.Ф. Биологическая химия.-М.: Медицина, 1998.-704 с.
Филиппович Ю.Б. Основы биохимии.-М.: ИзD-во «Ангар», 1999–512 с.
Жеребцов Н.А., Попова Т.Н., Артюхов В.Г. Биохимия-Воронеж; Издательство ВГУ, 2002-696 с.
Биохимия растительного сырья. /Под. ред. В.Г. Щербакова.-М.: Колос, 1999.-376 с.
Ленинджер А. Биохимия.-М.: Мир, 1999 Т 1-3.
Основы биохимии / Под ред. А.А. Анисимова.-М.: Высшая школа, 1986.-551 с.
Кретович В.Л. Биохимия растений М.: Высш. школа, 1986.-503 с.
Химия и биохимия аминокислот и полипептидов. Методические указания для студентов технологических специальностей 49 01 01, 49 01 02, 91 01 01,48 01 02 по дисциплинам «Органическая химия», «Биологческая химия» и «Химия природных волокнообразующих полимеров». МГУП, Могилев, 2003 – 43 с.