Билатеральные комплексы бочонковых колонок первичной соматосенсорной коры мозга являются модулями восприятия пространства
Полученные результаты могут свидетельствовать о том, что в пространстве бочонковой колонки, как и во всем поле бочонков, имеет место топическое представительство рецепторов фолликула соответст-вующей данной колонке вибриссы. На афферентном уровне, в слое 4, избирательность к определенному направлению отклонения вибриссы обеспечивается, главным образом, топикой представительства сферической рецепторной поверхности фолликула в цилиндрическом пространстве бочонковой колонки.
К такому представлению о механизме дирекциональной избира-тельности входных нейронов колонки склоняют данные о преобладании на входном уровне Ш-нейронов, а также слабая структурированность их фазических реакций на адекватные стимулы. Более острая настройка У-нейронов, которые в большинстве своем находятся на эфферентном уровне, обеспечивается, по-видимому, системой вставочных тормозных нейронов, влияние которых, согласно литературным данным, направлены преимущественно на выходные нейроны колонки.
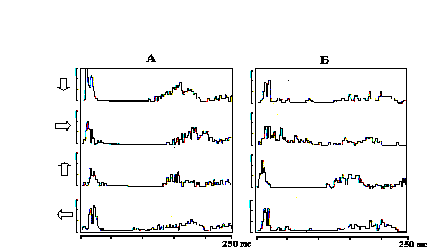
Рис. 11. Зависимость дирекциональной избирательности нейронов от их положения в бочонковой колонке С1 коры мозга крысы.
А - ПСГ фазических В-реакций нейрона из каудо-латеральной стенки бочонка С3; Б - ПСГ фазических В-реакций нейрона из ростро-медиальной стенки бочонка С3. Стрелками показано направление отклонения центральной в РП вибриссы. Калибровка по вертикали - 5 импульсов
Построение суммарных диаграмм настройки для разных бочонковых колонок обнаружило их определенную специализацию: нейроны передних колонок были настроены на отклонение соответствующих им вибрисс назад, задних - на отклонение вперед, нижних - на отклонение вверх и верхних - на отклонение вниз. Для соответствующих вибрисс именно эти направления при исследовательском поведении крысы являются наиболее часто реализуемыми. Эти "привычные" направления есть основания рассматривать в качестве диссимметризирующих факторов, вызвавших специализацию корковых модулей к определенным пространственным параметрам тактильных стимулов.
Таким образом, показано, что бочонковые колонки включают в свой состав миниколонки нейронов, настроенных на отклонение вибриссы в одном из направлений. Получено подтверждение высказанному ранее предположению о том, что расположение дирекциональных миниколонок в пределах коркового проекционного модуля задано топикой представительства в бочонке рецепторов фолликула и соответствует радиальной симметрии рецептируемого вибриссой пространства. Это означает, что дирекциональная настройка корковых нейронов ориентирована в общей схеме тела относительно плоскости его симметрии.
Получило определенное подтверждение представление, согласно которому кодирование дирекциональности в корковом модуле топического представительства вибрисс осуществляется за счет диссимметризации его исходного сбалансированного по возбуждению состояния, что, по-видимому, приводит к формированию дипольной структуры с соответствующим дирекциональности вектором активности, который служит нейронной моделью направления движения стимула.
Выводы
Совпадение центров РП нейронов, зарегистрированных в отдельном бочонке на уровне слоя 4, а также в его проекции на ниже- и вышележащие слои коры, подтверждают представление о колончатом принципе организации ПМСБ.
Показана специализация бочонковых колонок, обеспечивающая более высокую их чувствительность к экологически наиболее часто реализуемым направлениям отклонения соответствующих им вибрисс. Асимметричная структура РП нейронов разных уровней, лежащая в основе их пространственной избирательности, в целом по колонке проявляется в ориентированности ее суммарного РП вдоль траектории ощупывающих движений вибрисс, т.е. вдоль одноименного ряда вибрисс. Бочонковая колонка является композитным модулем, Она включают в свой состав миниколонки нейронов, настроенных на отклонение соответствующей вибриссы в одном из направлений. Расположение дирекциональных миниколонок соответствует радиальной симметрии рецептируемого вибриссой пространства. Есть основание полагать, что дирекциональная избирательность нейронов в соответствующих миниколонках обеспечивается на уровне 4 слоя топикой представительства рецепторов фолликулов, а на выходном уровне - также и системой вставочных тормозных нейронов.
РП в проекции латеральных вибрисс - унилатеральны и представлены контралатеральным полем вибрисс. В представительстве медиальных вибрисс имеются, наряду с унилатеральными, также и билатеральные РП. Ипсилатеральное субполе билатеральных РП содержит только медиальные вибриссы рядов А и В, а в контралатеральном субполе - не включены в состав только самые латеральные вибриссы рядов D и Е. Это свидетельствует о том, что прямые двусторонние транскаллозальные проекции имеются только в представительстве медиальных вибрисс. Они связывают пары гомотопных бочонковых колонок, объединяя их в БК, которые и реализуют эффекты бигаптического восприятия пространства. В колонках представительства латеральных вибрисс лишь около 50% нейронов, при отсутствии прямых связей с противоположным полушарием, вовлечены в обработку каллозальной информации. Высказано предположение, что эти взаимодействия опосредованы системой интракортикальных межколонковых связей. Как было показано ранее, ЛП транскаллозального ответа (ТКО) и, сопряженных с ним импульсных реакций нейронов на транскаллозальную стимуляцию, увеличиваются по направлению от медиальных к все более латеральным колонкам. Поэтому есть основания полагать, что в колонках представительства латеральных вибрисс таким способом может кодироваться информацию о степени латерализации тактильных стимулов.
Подтверждены данные о том, что на бочонковых колонках медиальной и латеральной проекции рецепторной периферии представлены в топическом порядке дистантные рецепторы вибрисс с полным перекрестом афферентных путей и рецепторы волосков шерсти под вибриссами, которые дают проекции к гомотопным колонкам обоих полушарий. Ипсилатеральные фокальные ВП и, сопряженные с ними, импульсные реакции нейронов бочонковых колонок имеют достоверно более высокую латентность и отличающееся послойное распределение, по сравнению с таковыми в ответ на контралатеральную стимуляцию шерсти и вибрисс.
В связи с этим есть основания считать, что в БК гомотопных колонок нейронные коды пространственного бигаптического восприятия реализуются на основе разложения пространственных параметров стимулов во временной ряд, который представляет собой различающиеся по ЛП В-реакции нейронов с их специфической локализацией в БК. В межстимульных тактах восприятия межнейронные связи БК являются более сильными, чем влияния по "молчащим" афферентным входам, что обеспечивает их сбалансированность по возбудительно-тормозным взаимовлияниям. Тактильный стимул разбалансирует структуру межнейронных связей соответствующих колонок, вследствие чего в БК создаются локальные очаги возбуждения, которые по усилившимся от них связям формируют градиенты активности, своеобразные векторные неоднородности в пределах функционального диполя, что и является, как мы полагаем, нейронной моделью бигаптического стимула.
Специфичность паттернов ВП в БК бочонковых колонок при различных положениях билатеральных и унилатеральных тактильных стимулов, свидетельствует об их кодовом назначении. На основании этого можно рассматривать БК бочонковых колонок в качестве специализированного сенсорного органа восприятия пространства. БК в представительстве медиальных вибрисс, кроме того, объединяют два сенсорных поля, левое и правое, в единую панораму, обеспечивая тем самым целостность восприятия.
В недавних исследованиях, проведенных на морских свинках, было показано /29,32/, что корковые нейронные модули, подобные колонкам в ПМСБ С1 коры мозга крыс, обнаруживаются по всему плащу коры и не только в проекционных зонах: зрительной, слуховой и соматосенсорной, но также в моторной, премоторной и ассоциативных зонах (поля 5 и 7). Обосновано предположение, что выявленные структуры являются частными случаями базовых интегративных модулей неокортекса. В более ранних работах /30,31/ было обосновано представление, что базовой функцией базового интегративного модуля в разных зонах неокортекса является выявление вектора внешнего воздействия. Представленные нами данные не противоречат такому представлению, а в определенной мере подтверждают его. В связи с этим можно надеяться, что сделанное нами по итогам данной работы заключение, касающееся особенностей функциональной организации БК бочонковых колонок С1 коры мозга крыс и механизмов кодирования пространственных параметров тактильных стимулов, имеет более общее теоретическое значение.
Список литературы
Айрапетьянц Э.Ш., Ананьев Б.Г. Мозговые механизмы и эволюция восприятия пространства //Восприятие пространства и времени.- Л.: Наука, 1969.- С.5-11.
Мосидзе В.М., Эзрохи В.Л. Взаимоотношения полушарий мозга.- Тбилиси, 1986.- 158 с.
Бианки В.Л. Механизмы парного мозга.- Л.: Наука, 1989.- 264 с.
Хьюбел Д. Глаз, мозг, зрение.- М.: Мир, 1990.- 239 с.
Альтман Я.А., Дубровский Н.А. Пространственный слух //Физиология сенсорных систем. Ч.2 (Руководство по физиологии). - Л.: Наука, 1972.- С.398-426.
Ласков В.Н. Динамические нейронные ансамбли межполушарного взаимодействия сенсорной системы вибрисс крысы //Проблемы нейрокибернетики.- Ростов н/Д: Изд-во РГУ, 1983.- С.29.
Laskov V.N. Bilateral column complex in the rat primary somatosensory cortex: discrete system of spatial integration //The RNNS/IEEE Symposium on Neuroinformatics and Neurocomputers.- Rostov-on-Don, Russia, Oktober 7-10, 1992.- V.2.- P.679-683.
Ласков В.Н. Кодирование амплитуды тактильного стимула ансамблями нейронов соматосенсорной коры крысы // Нейрофизиология (Neurophysiology).- 1995, -27, N2.- C. 83-92.
Гусельников В.И. Электрофизиология головного мозга (Курс лекций).- М.: Просвещение, 1976.- 423 с.
Соколов В.Е., Куликов В.Ф. Функция вибрисс некоторых грызунов //Зоологический журнал.- 1976.- Т.55, N 10.- С.1506-1514.
Соколов В.Е., Скурат Л.Н., Чурова-Чураева С.Р. Роль верхнегубных вибрисс в поведении некоторых грызунов //Управление поведением животных.- М.: Наука, 1977.- С.274-276.
Vincent S.B. The taktile hair of the white rat //J.Comp.Neurol.- 1913.-V.23, N 1.- Р.1-36.
13. Schifman H.R., Lore R., Passafiume J., Neeb R. Role of vibrissae for depth perception in the rat (Rattus Norvegicus) //Anim.behav.- 1970.- V.18, N 2.- P.290-292.
Мешкова Н.Н. Познавательная функция манипуляторной активности серой крысы //Вестник МГУ. Психология.- 1981.- N 3.- С.31-42.
Сухов А.Г. Нейронная организация тактильного анализатора крысы.- Ростов н/Д: Изд-во РГУ, 1992.- 104 с.
16. Wise S.P., Jones E.G. The organization and postnatal development of the commissural projection of the rat somatic sensory cortex //J.Comp.Neurol.- 1976.- V.168, N3.- P.313-343.
White E.L., De Amicis R.A. Afferent and efferent projections of the region in mouse Sm1 cortex which contains the posteromedial barrel subfield //J.Comp.Neurol.- 1977.- V.175, N4.- P.455-482.
Jacobson S., Marcus E.M. The laminar distribution of fibers of the corpus callosum: a comparative study in the rat, cat, rhesus monkey and chimpanzee //Brain Res.- 1970.- V.24, N3.- P.517-520.
Killackey H.P. Anatomical evidence for cortical subdivisios based on vertically discrete thalamic projections from the ventral posterior nucleus to cortical barrels in the rat //Brain Res.- 1973- V.51 (complete).- P.326-331.
Welker C. Receptive fields of barrels in the somatosensory neocortex of the rat //J.Comp.Neurol.- 1976.- V.166, N 2.- P.173-190.
Jorke C., Caviness V. Interhemispheric neocortical connections of the corpus callosum in the normal mouse: a study based on anterograde and retrograde metods //J.Comp.Neurol.- 1975.- V.164, N 2.- P.233-245.
Исследовать ассоциативные процессы, их медиаторное и структурное обеспечение в распределенной системе межнейронных связей коркового модуля при разном уровне функционального состояния и при эмоциональных расстройствах. Отчет о НИР (заключительный)/ ВНТИЦ; Руководитель Ласков В.Н., N гос.рег.0110044514. - Ростов н/Д.- 1993.- Библиогр. 90 источников, 23 илл.- 101 с.
Swadlow H.A. Efferent neurons and suspected interneurons in S1 vibrissa cortex of the awake rabbit: receptive fields and axonal properties //J.Neurophysiol.- 1989- V. 62, N 1.- P. 288-308.
Орликов А.Б., Лапин И.Б. Исследование механизмов тревоги с помощью анксиогенов (клинико- экспериментальные данные) //Эксперим. и клинич. фармакология.- 1993.- Т.56, N 5.- С.59-64.
Лиманский Ю.П. Структура и функции системы тройничного нерва.- Киев: Наукова думка, 1976.- 225 с.
Сентаготаи Я., Арбиб М. Концептуальные модели нервной системы.- М.: Мир, 1976.- 198 с.
Ласков В.Н., Чебкасов С.А. Методика множественного вживления полумикроэлектродов в мозг мелких животных для исследований в свободном поведении. // Журн. высш. нерв. деятельности.- 1995.-45, N 5.- С. 1051-1056.
Стадников Е.Н. Способ резания коры мозга крысы в плоскости, параллельной мягкой оболочке. - Ростов-на-Дону, 1986. - Деп. ВИНИТИ N 6107-В86, 1986, 5 с.
Чебкасов С.А., Кондратьева Л.А., Корзак В.М. Базовый интегративный модуль неокортекса. Проблема и решение. - Дополнительный подход. Ростов-на-Дону, Изд-во ООО "ЦВВР", 2003 г., 30 с.
Чебкасов С.А. Базовая функция базовых интегративных модулей зрительной коры. - Ростов-на-Дону, 2000. Деп. ВИНИТИ. - 2000. N1319 - В00. - 21 с.
Чебкасов С.А. Базовая функция базовых интегративных модулей//Материалы конф. "Организация и пластичность коры больших полушарий головного мозга". - М., Ин-т Мозга АМН, 2001. - С.98.
Чебкасов С.А., Кондратьева Л.А., Корзак В.М. Базовый интегративный модуль неокортекса. Проблема и решение. - Дополнительный подход.
http: //www. laboratory/articl/biol/ab050r.htm