Закономерности и факторы устойчивости пресноводных экосистем к антропогенному загрязнению
В экспериментах на D. magna изучено влияние гидрохимического класса вод на ПК реагентов. Модельную фоновую среду создавали добавлением гидрокарбоната, сульфата и хлорида натрия к воде из Урозера до общей минерализации 200 мг/л. Полученные результаты указывают на существенную зависимости токсичности веществ различной природы от анионного состава среды, причем, эта зависимость неодинакова для изученных реагентов (табл. 1). Следовательно, при разработке токсикологических нормативов целесообразно учитывать химический класс вод.
Таблица 1 Влияние гидрохимического класса водной среды на токсичность реагентов для Daphnia magna (экспозиция 30 суток)
|
Класс вод |
Пороговая концентрация, мг/л |
|||||||
|
Медь |
Цинк |
Свинец |
Никель |
Солярка |
Бензин А-76 |
ДДВФ |
Промет- рин |
|
|
Гидрокарбонатный |
0.0100 |
0.050 |
1.82 |
0.069 |
7.80 |
324 |
0.00020 |
1.38 |
|
Сульфатный |
0.0004 |
0.010 |
0.09 |
0.052 |
0.26 |
166 |
0.00001 |
0.29 |
|
Хлоридный |
0.0040 |
0.004 |
2.00 |
0.038 |
1.20 |
65 |
0.00001 |
0.33 |
Также экспериментально показано, что на фоне воды с более высоким содержанием гуминовых веществ (ГВ) возрастает доля связанных форм меди и цинка и обнаруживается меньшая токсичность, чем на воде, обедненной гумусом. Комплексообразующая способность ГВ должна учитываться при разработке ПДК для металлов.
2.3 Зональная характеристика токсикорезистентности пресноводных биоценозов
О безусловной зависимости функционального состояния биоценозов озерных экосистем от природной климатической зоны свидетельствуют данные собственного расчета токсобности и сведения других авторов [Борисов, 1975; Будыко, 1977; Китаев, 1984], представленные на рис. 2. От тундры к степной зоне увеличивается не только биомасса, биопродуктивность и сапробность гидробионтов, но и их эврибионтность, а также преадаптивно связанная с ней токосбность. С севера на юг наблюдается снижение почти до полного исчезновения в составе ихтиофауны и руководящих комплексах зоопланктона доли олиготоксобных видов при увеличении в- и б-мезотоксобов, характеризующихся повышенной устойчивостью к загрязнению.
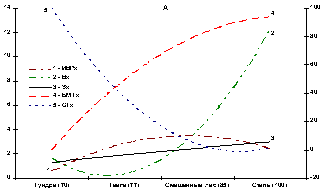
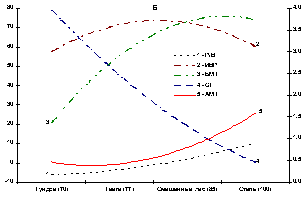
Рис. 2. Экологическая характеристика биоценозов озер различных природно-климатических зон (полиномиальные тренды): А - зоопланктоценоз: по левой оси ординат - биомасса (Вз), г/м3, индекс видового разнообразия (ИВРз), индекс сапробности (Sз); по правой оси ординат - биомасса олиготоксобов и в-мезотоксобов (ОТз и БМТз, %). Б - ихтиоценоз: по левой оси ординат - ихтиомасса олиготоксобов, в- и б-мезотоксобов (ОТ, БМТ и АМТ, %); по правой оси ординат - ИВР и Р/В коэффициент. По оси абсцисс - природная зона (суммарная радиация, ккал/см2)
Для экологической оценки ихтиоценозов водохранилищ по литературным данным рассчитаны ИВР и токсобность руководящих комплексов. Корреляционный анализ выявил статистически значимую зависимость токсобности ихтиологических комплексов от географической широты расположения водоемов (положительную – для олиготоксобных и отрицательную – для в- и б-мезотоксобных видов рыб).
Изменение экологических показателей ихтиоценоза водохранилищ по градиенту зональных значений суммарной радиации и географической широты иллюстрируют данные рис. 3. Достоверность аппроксимации для трендов зависимости всех параметров ихтиоценоза от теплового баланса достаточно велика (R2 0.85-0.99) По градиенту широты коэффициент детерминации (R2) равен для рыбопродукции 0.71, для показателей токсобности - 0.58-0.95, а для ИВР составляет всего 0.17, т.е. суммарная радиация является более существенным фактором, определяющим функциональное состояние ихтиоценоза водохранилищ, чем географическая широта.
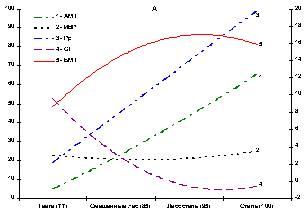
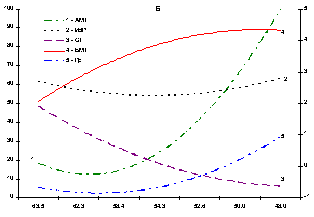
Рис. 3. Тренды связи параметров ихтиоценоза водохранилищ различных природных зон с суммарной радиацией (А) и географической широтой (Б): А: по оси абсцисс - природная зона (суммарная радиация, ккал/см2); по левой оси ординат - ихтиомасса олиготоксобов и в-мезотоксобов (ОТ и БМТ), %; по правой оси ординат - рыбопродукция (Рр), кг/га, ИВР, ихтиомасса б-мезотоксобов (АМТ), %. Б: по оси абсцисс - широта, град. с. ш.; по левой оси ординат - рыбопродукция (Рр), кг/га, ихтиомасса ОТ и БМТ, %; по правой оси ординат - ИВР, ихтиомасса АМТ, %
Сравнение экологических характеристик 14 озер Карелии, расположенных в зоне северной тайги, показало, что при рассмотрении конкретных водоемов одной природной зоны на первое место выступают региональные экологические факторы их забуференности. Выявлена достоверная связь токсобности ихтиологического комплекса с прозрачностью воды, перманганатной окисляемостью, термическим режимом, максимальной и средней глубиной, численностью зоопланктона, биомассой бентоса и рыбопродукцией. Напротив, ИВР ихтиоценоза не коррелирует ни с одним из 13 параметров, отражающих географическое положение, морфометрию, физико-химическое и биологическое состояние озер Карелии. Полученные результаты свидетельствуют о низкой региональной значимости показателя ИВР.
Следует особо отметить тесную связанность токсобности озерных ихтиоценозов с прозрачностью воды, что достоверно подтверждают результаты регрессионного (R2 = 0.75, р << 0.01), корреляционного (r = 0.86) и трендового анализа (R2 тренда = 0.85). По мере повышения прозрачности озер наблюдается увеличение в составе ихтиоценоза доли олиготоксобных видов рыб, т.е снижается его токсикорезистентность. С увеличением прозрачности воды наблюдается также достоверное снижение и таких биотических факторов забуференности озерных экосистем, как численность зоопланктона, биомасса бентоса, величина общей рыбопродукции (р = 0.01-0.02). Следовательно, в регионе Карелии прозрачность воды может являться косвенным показателем, характеризующим устойчивость пресноводных биоценозов к антропогенному загрязнению. В целом, весь изложенный материал свидетельствует об экологической опасности системы единых токсикологических регламентов без учета зональной и региональной нормы реакции биоты, а также биотической и абиотической забуференности пресноводных экосистем.
3. Хронобиологические закономерности устойчивости пресноводных экосистем к антропогенной токсикологической нагрузке
3.1 Окологодовые (сезонные) ритмы и токсикорезистентность водных биоценозов
На основании обзора литературных данных показано, что хронобиологические ритмы в значительной степени определяют устойчивость биосистем к неблагоприятным факторам среды на всех уровнях структурной организации. Водные экосистемы в разные сезоны года по-разному реагируют на негативное воздействие внешней среды. Влияние антропогенных факторов может привести к различным последствиям в зависимости от стадии сезонной сукцессии природного ценоза. Несмотря на то, что вопрос об экологической целесообразности учета сезонной динамики функционального состояния водных биоценозов при разработке научных основ нормирования токсикологической нагрузки поставлен достаточно давно [Строганов, 1979; Абакумов, 1988, 1993; Абакумов, Курилова, 1989, 1991], сезонные изменения токсикорезистентности пресноводных экосистем и зональные особенности этого процесса практически не изучены (Волков, Заличева и др., 1996; Шурганова, Макеев и др., 2001; Домнин, Корсак и др., 2005].
3.2 Возрастная и сезонная резистентность гидробионтов к токсическому воздействию в онтогенезе
Анализ результатов собственных исследований и данных аннотационных карт разработчиков рыбохозяйственных ПДК показал, что токсикорезистентность рыб зависит как от химической природы реагента, так и их физиологического состояния, которое в значительной степени определяется возрастом, этапом, стадией развития организма, а также сезоном года. Учитывая пониженную устойчивость рыб к интоксикации веществами любой химической природы на личиночных и мальковых этапах развития, приуроченных, как правило, к весне и началу лета, этот период года можно считать наиболее критическим по отношению к токсикологической нагрузке на пресноводные ихтиоценозы.
Изучение возрастной и сезонной динамики нормы реакции зоопланктонных организмов (на примере D. pulex) к острой интоксикации медным купоросом, бихроматом калия и гербицидом Ситовит также выявило ряд закономерностей. Минимальная токсикорезистентность, независимо от действующего реагента, со стопроцентной вероятностью во все исследованные месяцы (с февраля по сентябрь) отмечена для односуточных рачков, максимальная, в большинстве случаев – для десятисуточных самок. Частота достоверных различий в устойчивости между отдельными возрастными группами достаточно велика как по отдельным месяцам, так и по сезонам года (67-87 %). При действии изученных реагентов различия в токсикорезистентности со всеми возрастными группами с вероятностью 100 % достоверны для односуточных и половозрелых рачков, а степень возрастных различий нормы реакции D. pulex зависит от химической природы реагента.
В сезонном аспекте наиболее зависима токсикорезистентность младших возрастов D. pulex. Так, при острой интоксикации бихроматом калия межсезонные различия устойчивости у одно-трехсуточных дафний достоверны в 83-х %, у четырехсуточных – в 50-ти, а у пяти- и десятисуточных – в 67-ми % случаев. При воздействии медным купоросом и гербицидом Ситовит частота достоверных межсезонных различий в токсикорезистентности одно-четырехсуточных рачков составила 67, пятисуточных – 33 %, а для десятисуточных все межсезонные различия в их резистентности были недостоверны. Минимальная устойчивость к интоксикации практически во всех возрастных группах наблюдается осенью.
3.3 Сезонная динамика популяционной токсикорезистентности гидробионтов
Сопоставление максимальных и минимальных значений морфофизиологических параметров односуточной молоди гуппи в чистой воде и при хроническом действии сублетальной концентрации никеля показало, что максимальная величина межсезонных достоверных различий (p ≤ 0.5) составляет по массе 1.2 и 1.1 раза, по длине тела – 1.5, а по интенсивности дыхания – 2.5 и 1.8 раз соответственно. Достоверные различия в токсикорезистентности, установленной по выживаемости на весеннем пике устойчивости молоди и при ее минимуме в осенний сезон, достигают 11 раз. Это закономерно, т.к. при интоксикации выживаемость является интегральным показателем функционального состояния подопытных.
Результаты экспериментов на планктонных организмах также свидетельствуют о значительной сезонной изменчивости их функционального состояния и устойчивости к интоксикации (табл. 2).
Таблица 2 Устойчивость модельных популяций лабораторных культур планктонных организмов к хронической интоксикации металлами в разные сезоны года
|
Сезон |
Фитопланктон |
Зоопланктон (D. magna) |
||||
|
года (световой |
ПК, мкгCu/л |
Биомасса (juv + ad) в чистой воде, мг |
ПК, мкгNi/л |
|||
|
день, час) |
S. quadricauda |
Ch. vulgaris |
карельская |
московская |
карельская |
московская |
|
Зима (6.7) |
120 ± 6 |
367 ± 24 |
57.3 ± 9.7 |
47.2 ± 2.1 |
53 ± 3 |
33 ± 6 |
|
Весна (14.6) |
147 ± 22 |
383 ± 44 |
80.9 ± 5.5 |
28.8 ± 3.6 |
223 ± 33 |
92 ± 5 |
|
Лето (18.1) |
330 ± 35 |
183 ± 22 |
77.3 ± 5.3 |
34.9 ± 8.2 |
387 ± 32 |
120 ± 7 |
|
Осень (10.1) |
163 ± 18 |
247 ± 50 |
47.3 ± 4.9 |
32.3 ± 3.3 |
142 ± 20 |
34 ± 12 |
Ярко выраженные сезонные различия и межвидовые особенности токсикорезистентности отмечены для Ch. vulgaris и S. quadricauda. Популяционная устойчивость сценедесмуса к воздействию меди тесно связана с длительностью светового дня (r = 0.81) и достигает своего максимума в летний период, а токсикорезистентность хлореллы изменяется в противофазе с фотопериодом (r = -0.51), в летний сезон ее устойчивость к меди минимальна. Сезонная динамика токсикорезистентности двух популяций D. magna идентична и тесно коррелирует с длительностью светового дня (r = 0.96-0.98, p < 0.05). Достоверные различия максимальной устойчивости, характерной для лета, и минимальной, отмеченной зимой, составляют для карельских дафний 7.3, для московских – 3.6 раза. Сезонные изменения суммарной биомассы обеих популяций рачков, развивающихся в чистой воде, не столь существенны. Для "диких" видов Cladocera максимальные межсезонные различия достаточно велики по всем показателям, что, вероятно, обусловлено, большей по сравнению с лабораторными культурами разнокачественностью природных сообществ. Наибольшая сезонная вариабельность также отмечена для их токсикорезистентности: различия по ПК никеля в разные сезоны года достигают для S. vetulus 5.6, а для D. pulex – 8.8 раз. Следует обратить внимание на некоторые особенности сезонной динамики функционального состояния двух видов Cladocera (рис. 4).
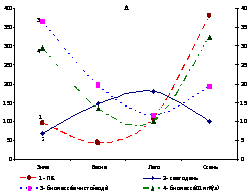
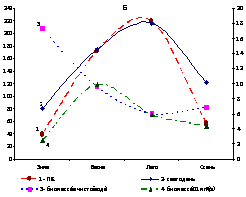
Рис. 4. Сезонная динамика устойчивости природных популяций Cladocera к хронической интоксикации никелем: А - Daphnia pulex, Б - Simocephalus vetulus. По левой оси ординат - пороговая концентрация (ПК) никеля, мкг/л; по правой оси ординат - суммарная биомасса, мг и среднесезонная длительность светового дня, час
Суммарная биомасса модельной популяции D. pulex в норме и при интоксикации никелем изменяется четко в противофазе с длительностью светового дня (r = -0.89 и -0.91 соответственно, p > 0.05), а ее минимальная токсикорезистентность отмечена весной, максимальная – осенью. Корреляция между ПК никеля и фотопериодом незначительна (r = -0.31, p >> 0.05). Для S. vetulus, напротив, характерна тесная достоверная положительная корреляция между популяционной токсикорезистентностью и среднесезонной длительностью светового дня (r = 0.98, p = 0.05) с максимальным пиком в летний период и минимальными значениями зимой. Приведенные данные говорят о видовой специфичности сезонной динамики функционального состояния исследованных природных популяций Cladocera в норме и при хронической интоксикации.
Стабильные условия содержания лабораторных культур и проведения всех экспериментов свидетельствуют о том, что цирканнуальные биоритмы, в частности, динамика токсикорезистентности, имеют наследственно закрепленную норму реакции.
3.4 Сезонные аспекты токсикорезистентности гидробионтов на ценотическом уровне
Для характеристики сезонной динамики экологических параметров зоопланктоценозов в вегетационный период были обработаны опубликованные данные исследований 8 озер разных природных зон: северной тайги (Сямозеро, оз. Онежское и Северная Ладога), южной тайги (оз. Красное), высотной тайги (оз. Байкал), смешанного леса (оз. Нарочь), горного ландшафта (оз. Севан) и 4 водохранилищ, расположенных в зоне смешанного леса (Рыбинское, Иваньковское), широколиственного леса (Киевское) и лесостепи (Волгоградское). Несмотря на то, что сезонная вариабельность токсобности зоопланктонных сообществ рассмотренных водоемов характеризуется индивидуальными особенностями, в целом, в летнее-осенний сезон наблюдается снижение токсикорезистентности всех руководящих комплексов зоопланктона за счет увеличения доли олиготоксобных видов при противофазном изменении биомассы более резистентных в-мезотоксобов и очень устойчивых к интоксикации б-мезотоксобов. Очевидно, что мы имеем дело с функциональными интерзональными закономерностями общего порядка, связанными с сезонной динамикой энергетических абиотических факторов. В качестве примера приведем данные по водохранилищам (рис. 5).
Следует отметить, что изменения токсикорезистентности планктонных ценозов в сезонном аспекте более значительны, чем динамика видового разнообразия сообщества, а индекс сапробности для доминирующих видов зоопланктоценозов всех исследованных водоемов изменяется в разные сезоны года в очень узком диапазоне (10-30 %) в пределах одного и того же класса сапробности вод.
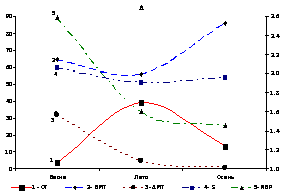
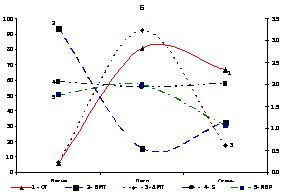
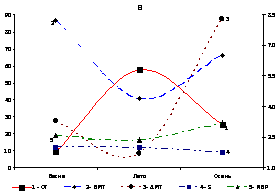
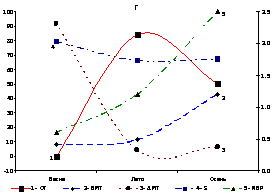
Рис. 5. Сезонная динамика параметров зоопланктоценоза водохранилищ в вегетационный период [рассчитаны по данным: Мордухай-Болтовская, 1955; Луферова, Монаков, 1966; Цееб, Травянко и др., 1972; Вьюшкова, Белова, 1977; Ривьер, 1978]: водохранилища: А - Рыбинское, Б - Иваньковское, В - Киевское, Г - Волгоградское. По левой оси ордина: А и Г - биомасса олиготоксобов, в-мезотоксобов, б-мезотоксобов (ОТ, БМТ, АМТ соответственно), %; Б и В - биомасса ОТ, БМТ, %. По правой оси ординат: А и Г – индекс сапробности (S) и ИВР; Б и В – S, ИВР, биомасса АМТ, %
Сравнение сезонной динамики экологических параметров зоопланктона в условиях различного уровня антропогенного загрязнения представляет особый интерес. С этой целью проведен анализ изменения токсобности и сапробности зоопланктонных комплексов на разных акваториях северной части Выгозерского водохранилища, подверженных многолетнему действию сбросов и выбросов Сегежского ЦБК (СЦБК), и на условно чистом участке Северного Выгозера. Экологические параметры зоопланктоценозов рассчитаны по опубликованным материалам [Куликова, 1984; Лозовик, Пальшин и др., 1989]. Приведенные на рис. 6 А-В данные показывают, что динамика показателей токсобности планктонных комплексов с марта по октябрь в зоне сброса неочищенных сточных вод СЦБК и в зоне выпуска стоков после биологической очистки значительно отличается от данных по акваториям вторичного загрязнения, которые приближаются по сезонной динамике токсобности к зоопланктону условно чистой акватории.
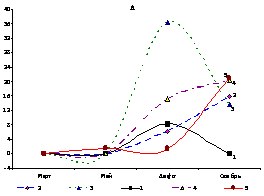
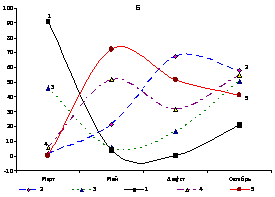
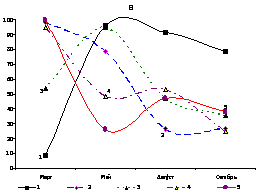
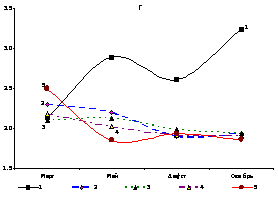
Рис. 6. Сезонная динамика экологических параметров зоопланктоценозов Северного Выгозера в различных условиях загрязнения сточными водами С ЦБК. Акватории: 1 - зона сброса неочищенных отходов (СНО), 2 - зона вторичного разбавления СНО, 3 - зона сброса после биологической очистки (СБО), 4 - зона вторичного разбавления сбросов СБО, 5 - условно чистая зона. Параметры: А - биомасса олиготоксобов, %; Б - биомасса в-мезотоксобов, %; В - биомасса б-мезотоксобов, %; Г - индекс сапробности.
Сезонная динамика показателей токсобности на наиболее загрязненных акваториях (СНО и после СБО) проходит в четкой противофазе с изменением токсобности зоопланктона условно чистой зоны. Динамика индекса сапробности, отображенная на рис. 6 Г, также достаточно близка по своему характеру на условно чистой акватории и в зонах вторичного разбавления очищенных и неочищенных сточных вод СЦБК и отлична для сильнозагрязненных участков, однако, ценотическая токсикорезистентность зоопланктона изменяется в более широком диапазоне, чем показатель сапробности.
4. Популяционный уровень адаптационной пластичности гидробионтов в условиях антропогенного изменения абиотических факторов водной среды
4.1 Адаптационные возможности гидробионтов к токсификации водной среды
В литературном обзоре обоснована актуальность проблемы, показано, что при постепенном увеличении антропогенных нагрузок у различных организмов, как правило, происходит адаптация к изменяющимся условиям среды и увеличение их резистентности в направлении, адекватном внешнему воздействию. Приведены данные полевых и лабораторных исследований, свидетельствующие о высокой адаптационной способности к токсическим веществам у водных животных. Дана характеристика генотипической и фенотипической адаптации. Рассмотрены различные точки зрения на возможность фенотипических адаптаций к токсическим агентам. Отмечена зависимость адаптационной способности гидробионтов от химической природы действующего реагента. Показано, что при взаимодействии гидробионтов с токсикантами приспособленность организмов достигается, прежде всего, на основе генетически закрепленной нормы реакции.
4.2 Формирование популяционной нормы реакции планктонных организмов на закисление водной среды
Исследования на организмах с коротким жизненным циклом позволили в лабораторных условиях проследить за формированием популяционной нормы реакции при различных уровнях негативного воздействия рН водной среды. Показано, что в процессе длительного воздействия закисления в диапазоне слабокислых рН на популяционном уровне включаются компенсаторные механизмы поддержания устойчивости, что со временем приводит к расширению нормы реакции на действующий фактор и сдвигает порог ацидорезистентности популяций в более кислую сторону. Динамику ацидорезистентности модельных популяций при хроническом закислении хорошо иллюстрируют рассчитанные по результатам экспериментов индексы численности и биомассы (рис. 7).
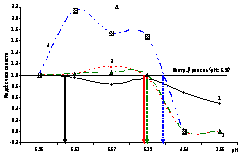
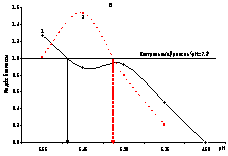
Рис. 7. Динамика популяционной ацидорезистентности Scenedesmus quadricauda (А) и Daphnia pulex (Б) при хроническом закислении водной среды: экспозиция – А: 1 – 5-е сутки, 2 – 10-е сутки, 3 – 15-е сутки, 4 – 20-е сутки опыта; Б: 1 – 14-е сутки, 2 – 28-е сутки опыта. Стрелками указано начало угнетающего воздействия рН
Наблюдаемые закономерности формирования популяционной нормы реакции планктонных сообществ обусловлены, по нашему мнению, сочетанием гено- и фенотипических приспособлений, когда наряду с отбором на ацидорезистентность могут проявляться и защитные метаболические реакции организмов на молекулярном уровне (физиологическая адаптация).
4.3 Популяционный адаптивный потенциал зоопланктонных организмов к токсическому воздействию металлов
Содержание модельных популяций D. pulex на протяжении 1 года в условиях постоянного действия концентраций меди или свинца в диапазоне 0.005-0.05 и 0.1-0.8 мг/л соответственно не привело к угнетению биологически значимых параметров, в том числе - репродуктивных возможностей, являющихся ключевым фактором, определяющим жизнеспособность популяций при антропогенной деградации среды обитания. Для оценки адаптационного эффекта изучена устойчивость неадаптированных и адаптированных модельных популяций D. pulex в режиме острой и хронической интоксикации металлами (табл. 3).
Выявленная в результате корреляционного и регрессионного анализа достоверная зависимость параметров КТН50 и ПК от величины адаптационных концентраций металлов свидетельствует о том, что популяционная норма реакции адаптированных популяций формировалась под непосредственным воздействием их фоновых концентраций в среде обитания. Следует отметить, что постоянное содержание меди в среде обитания на уровне 0.05 мг/л является фактором, лимитирующим резистентность дафний по отношению к остролетальному воздействию (по КТН50), в то время как адаптационный резерв дафниевых популяций в изученных концентрациях свинца не исчерпан, т.е верхний порог толерантного диапазона D. pulex к токсическому воздействию этого металла лежит выше концентрации 0.8 мг/л.
Таблица 3 Устойчивость адаптированных и неадаптированных модельных популяций Daphnia pulex к интоксикации металлами
|
Адаптацион- |
КТН50, мг /л*час |
Пороговая концентрация (ПК), мг/л |
||||||
|
ная концен- |
надфоновая |
абсолютная |
надфоновая |
абсолютная |
||||
|
трация, мг/л |
M |
±m |
M |
±m |
M |
±m |
M |
±m |
|
Медь |
||||||||
|
Контроль 0.005 |
0.196 0.255* |
0.018 0.017 |
0.196 0.268* |
0.018 0.017 |
0.025 0.040* |
0.001 0.002 |
0.025 0.045* |
0.001 0.002 |
|
Контроль 0.01 |
0.183 0.323* |
0.019 0.027 |
0.183 0.356* |
0.019 0.030 |
0.024 0.059* |
0.002 0.003 |
0.024 0.069* |
0.002 0.003 |
|
Контроль 0.02 |
0.192 0.235 |
0.016 0.019 |
0.192 0.282* |
0.016 0.023 |
0.023 0.033* |
0.001 0.001 |
0.023 0.053* |
0.001 0.001 |
|
Контроль 0.03 |
0.204 0.186 |
0.013 0.020 |
0.204 0.242 |
0.013 0.025 |
0.028 0.025 |
0.002 0.002 |
0.028 0.055* |
0.002 0.002 |
|
Контроль 0.04 |
0.173 0.132* |
0.016 0.009 |
0.173 0.185 |
0.016 0.013 |
0.030 0.015* |
0.001 0.002 |
0.030 0.055* |
0.001 0.002 |
|
Контроль 0.05 |
0.198 0.056* |
0.020 0.008 |
0.198 0.084* |
0.020 0.013 |
0.033 0.003* |
0.003 0.001 |
0.033 0.053* |
0.003 0.001 |
|
Свинец |
||||||||
|
Контроль 0.1 0.2 |
0.52 0.67* 0.81* |
0.03 0.04 0.05 |
0.52 0.74* 0.97* |
0.03 0.04 0.06 |
0.18 0.25 0.37* |
0.01 0.03 0.02 |
0.18 0.35* 0.57* |
0.01 0.03 0.02 |
|
Контроль 0.4 |
0.59 0.92* |
0.07 0.12 |
0.59 1.28* |
0.07 0.17 |
0.23 0.51* |
0.02 0.03 |
0.23 0.91* |
0.02 0.03 |
|
Контроль 0.6 |
0.68 1.28* |
0.10 0.23 |
0.68 2.05* |
0.10 0.37 |
0.25 0.64* |
0.02 0.05 |
0.25 1.24* |
0.02 0.05 |
|
Контроль 0.8 |
0.76 1.21* |
0.12 0.15 |
0.76 2.17* |
0.12 0.27 |
0.31 0.58* |
0.02 0.04 |
0.31 1.38* |
0.02 0.04 |
|
Примечание. * - достоверное отличие от контроля (р ≤ 0.05); надфоновая - концентрация металла, дополнительно вносимая в опытную и контрольную среду, абсолютная - сумма надфоновой и постоянно действующей адаптационной концентрации. |
||||||||
Таким образом, исходная природная популяция D. pulex, несмотря на партеногенетическое размножение, благодаря высокому полиморфизму характеризуется существенной адаптационной пластичностью, которая обеспечила длительное стабильное функционирование модельных популяций при постоянном воздействии исследованного диапазона концентраций металлов и обусловила увеличение популяционной токсикорезистентности.
4.4 Оценка популяционной адаптации гидробионтов к интоксикации металлами на уровне межвидовых биотических связей с использованием показателя конкурентоспособности
Дополнительная оценка популяционной адаптации D. pulex к интоксикации металлами в поликультуре с ветвистоусым рачком Simocephalus vetulus показала, что длительное содержание дафниевых популяций при постоянных концентрациях меди или свинца в диапазоне 0.005-0.05 мг/л и 0.1-0.8 мг/л соответственно привело к адекватному увеличению не только их токсикорезистентности, но и конкурентоспособности. В качестве примера приведем данные по тестированию популяций дафний, адаптированных к меди. При сравнении функционального состояния популяций Cladocera в поликультуре за контрольный уровень, равный 1, приняты параметры соответствующих монокультур. Культивирование неадаптированных и адаптированных к меди популяций D. pulex совместно с S. vetulus на фоне чистой воды сопровождалось стимулированием их развития, причем, превышение биомассы насыщения адаптированных популяций в поликультуре относительно монокультуры существеннее, чем в вариантах с неадаптированными дафниями (рис. 8 А). Подавление развития модельных популяций S. vetulus также было наибольшим со стороны адаптированных D. pulex (рис. 8 В).
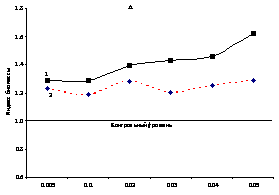
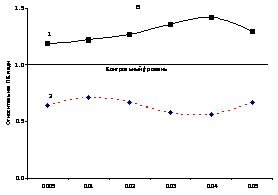
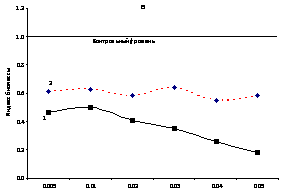
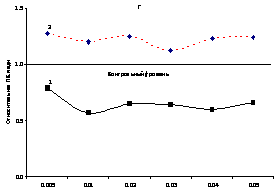
Рис. 8. Функциональное состояние модельных популяций Cladocera в поликультуре на фоне чистой воды и их устойчивость к хронической интоксикации медью: А и Б - параметры D. pulex в поликультуре с S. vetulus , В и Г - параметры S. vetulus в поликультуре с D. pulex; 1 - поликультура с адаптированной D. pulex, 2 - поликультура с неадаптированной D. pulex. По оси абсцисс - вариант адаптации D. pulex к меди (цифры соответствуют адаптационной концентрации, мг/л)
Сравнение относительных ПК меди показало, что токсикорезистентность адаптированных популяций D. pulex в поликультуре с S. vetulus повышается, а неадаптированных снижается по сравнению с устойчивостью соответствующих монокультур (рис. 4.8 Б). Совместное существование S. vetulus в поликультуре с адаптированной D. pulex обусловливает значительное уменьшение его токсикорезистентности, а в поликультуре с неадаптированными дафниями резистентность S. vetulus к интоксикации медью выше, чем в монокультуре (рис. 4.8 Г). При тестировании на конкурентоспособность популяций дафний, адаптированных к свинцу, выявлены аналогичные закономерности. Результаты исследований показали, что использование конкурирующего вида в качестве биотической функциональной нагрузки может способствовать повышению экологической значимости результатов лабораторных токсикологических экспериментов.
4.5 Азональные факторы устойчивости природных популяций к токсическому воздействию металлов
Из азональных факторов, обусловливающих различия в токсикорезистентности биоценозов, наиболее примечательными являются биогеохимические провинции, играющие роль вектора в эволюции региональной биоты.
Вследствие сопряженности биологической эволюции с неравномерным распределением микроэлементов, биогеохимические провинции характеризуются популяциями гидробионтов, адаптированными к региональному уровню их концентраций. При этом, даже в пределах одного региона межпопуляционные различия в токсикорезистентности к природным химическим элементам весьма существенны. Об этом свидетельствуют результаты наших исследований по сравнительной устойчивости к хронической интоксикации металлами гидробионтов, представительных для Восточно-Казахстанской области и Южного Урала. Так, в реках ВКО гаммариды различаются по ПК Zn в 55, Pb – в 158, Cu – в 110 раз; турбеллярии – соответственно в 695, 65 и 220 раз; планорбиды – в 32, 2.3 и 6 раз соответственно. В регионе Южного Урала ПК Cu отличается в 117 раз для дафний и в 234 раза – для гаммарид; Ni – соответственно в 36 и 164 раза. Отмеченные внутривидовые различия популяционной токсикорезистентности вносят значительное разнообразие в их реакцию на антропогенное загрязнение металлами.
4.6 Закономерности и особенности формирования региональной нормы реакции гидробионтов к природным компонентам антропогенного загрязнения (на примере металлов)
Исследования по токсикорезистентности природных популяций представительных гидробионтов Карелии, Хакасии, Приморского края, Южного Урала и ВКО показали, что региональная норма реакции к интоксикации металлами формируется под непосредственным влиянием их естественного содержания в водоемах, а ее проявление в различных гидрохимических условиях имеет количественные и качественные межпопуляционные и межвидовые различия.
Так, выживаемость гидробионтов, представительных для Хакасии, в остротоксичных концентрациях молибдена повышается с увеличением его природного содержания в маточном водоеме: КТН50 для Gammarus lacustris из водоемов с концентрацией молибдена 0.016 и 2.0 мг/л составляет соответственно 0.25 и 8.4 г/л*сут, для Diura bicaudata - 0.8 и 21.8 г/л*сут (при содержании молибдена в маточных водоемах 0.02 и 0.12 мг/л соответственно), для Ciclops strenuus - 4.2 и 20.0 г/л*сут (концентрация молибдена в маточных водоемах - соответственно 0.016 и 1.7 мг/л). Интегральная оценка по наименее устойчивому виду свидетельствует о том, что с повышением природного содержания молибдена от 0.0008 мг/л (Карелия) до 0.174 мг/л (Хакасия) его абсолютная ПК при хроническом воздействии для представительных гидробионтов повышается с 0.0065 до 2.0 мг/л.
Проведенные исследования на Южном Урале показали, что абсолютная ПК меди для местных популяций Gammarus lacustris может быть рассчитана по формуле (р = 0.05):
ПК = 1.75 + 4.07 . С, мкг/л, (1)
где С - фоновая концентрация меди в водоеме.
Коэффициент детерминации равен 0.72, следовательно, число неучтенных факторов составляет всего 28 %. Эмпирически выявленное превышение пороговой концентрации меди над фоновой находится в пределах 4.25-6.00.
Данные по токсикорезистентности к меди представительных популяций гаммарид из водоемов ВКО свидетельствуют о наличии региональных особенностей по сравнению с гидробионтами Южного Урала. С увеличением природного содержания меди в поверхностных водах ВКО устойчивость гаммарид к хронической интоксикации металлом остается надфоновой, однако коэффициент превышения абсолютной ПК над фоном равен в среднем двум. Токсикорезистентность к меди гидробионтов Южного Урала выше, чем у изученных популяций региона ВКО, несмотря на то, что природная концентрация меди по обследованным водоемам Урала составляет в среднем 0.018 мг/л, а по водоемам ВКО - 0.032 мг/л. Отмеченные различия мы склонны отнести за счет особенностей гидрохимического режима водоемов: минерализация, жесткость и рН озер Южного Урала существенно выше, чем обследованных водоемов ВКО.
Аналогичные исследования токсикорезистентности к вольфраму гидробионтов, представительных для биогеохимических провинций с его низким и повышенным природным содержанием в поверхностных водах (Карелия и Приморский край) также выявили зависимость нормы реакции водных организмов от содержания металла в маточных водоемах: абсолютная ПК W6+ для гидробионтов бассейна Онежского озера (фоновое содержание вольфрама 0.00003 мг/л) составила 0.0013 мг/л, а для представительных гидробионтов Приморского края (природная концентрация вольфрама в среднем 0.022 мг/л) - 0.123 мг/л.
Таким образом, при обосновании региональных токсикологических нормативов для всех природных компонентов, в частности, для металлов, основным направлением исследований должно быть выявление характера связи между природным содержанием элемента в среде обитания и токсикорезистентностью к нему аборигенных популяций гидробионтов.
5. Эколого-токсикологические аспекты ацидификации водоемов таежной природно-климатической зоны (на примере Карелии)
5.1 Анализ современного состояния проблемы ацидификации водных экосистем
По литературным материалам проведен анализ современной концепции ацидификации пресноводных экосистем, выделены зональные и азональные факторы, определяющие возникновение и протекание процессов ацидификации в природе, приведена география распространения закисленных водоемов в различных регионах мира. Дана комплексная характеристика абиотических и биотических факторов устойчивости водных экосистем Европейского Севера к антропогенному закислению. Показано, что специфической особенностью поверхностных вод зоны тайги является широкое распространение гумифицированных озер с низкой минерализацией, водосборы которых сильно заболочены и природа их закисления имеет двойную природу: антропогенную и естественную, за счет притока органических кислот с водосбора. Высокие