Біологічна продуктивність як основа функціонування різних екосистем та біотопів
Вода. Вода є важливим фактором біопродукційного процесу рослин та тварин. Рослинам потрібно дуже багато води для процесу фотосинтезу, вода в них не стільки ресурс живлення, скільки речовина, за допомогою якої регулюється температура тіла шляхом випаровування з поверхні листків досить великої кількості води.
Рослини використовують воду на випаровування дуже неекономно. Продуктивність транспірації, тобто співвідношення кількості утвореної за одиницю часу органічної речовини до кількості води, що витрачається на випаровування, складає у рослин величину порядку 1/200-1/1000. Іншими словами, на утворення 1 г органічної речовини витрачається в середньому 300-500 г води. Щодо цього суттєвим є контроль біопродукції вологістю ґрунту та відносною вологістю повітря.
На формування біопродукції рослин впливає не тільки режим опадів, але і їх форма. Для багаторічних рослин особливо важливе значення має сніг. Узимку в Північній півкулі випадає 13,5 млрд. тонн снігу. Але розподіляється він украй нерівномірно. Сніг - найкраща «ковдра» для озимих злаків та всіх багатолітніх рослин. Користь снігу полягає не лише в захисті рослин та їхніх кореневих систем від сильних морозів, сніг - це ще й своєрідне підживлення. І.В. Вернадський показав [7], що разом зі снігом до рослин надходить широкий набір мікроелементів. Та хоча їхня концентрація в сніжній масі всього 0,001-0,005%, тала вода є добрим стимулятором росту рослин.
Біопродукційний процес тварин також залежить від режиму вологості. У посушливих біотопах ряд видів через нестачу води впадає в літню сплячку (естивація).
Способи отримання води можуть бути досить цікавими. Більшість видів отримує воду з водойм, звідки вони її просто п'ють. Інші види всмоктують воду через зовнішні покриви тіла (більшість земноводних). Треті повністю задовольняють свої потреби у воді за рахунок їжі. Домашні коти майже не п'ють води при нормальному раціоні. Є види тварин (верблюд, одежна міль), які отримують воду метаболічним шляхом, окислюючи жирові речовини свого тіла.
М.С. Гіляров (1970) [8] з'ясував, що деякі види комах лісової зони живуть на поверхні ґрунту, а в лісостепу та степу вони ж мешкають у товщі ґрунту. Таким чином вони обирають оптимальний режим вологості, і, власне, у різних зонах комахи живуть фактично в одному й тому ж мікрокліматі. Відомо, що в комах кладка яєць відбувається лише при певній вологості повітря. Комахи не кусаються, якщо вологість повітря менша 40%.
Вуглекислий газ та кисень. У сучасній атмосфері загальні умови наявності ресурсів для автотрофних рослин не оптимальні і не можуть забезпечити генетично допустиму продуктивність. Концентрація вуглекислого газу в атмосфері, що дорівнює 0,03%, нижча тієї концентрації, при якій фотосинтез найбільш продуктивний. У більшості зелених рослин оптимум фотосинтезу спостерігається при концентрації СО2, рівній 0,1%. У рослинних угрупованнях у шарі розміщення зелених частин рослин вуглекислий газ взагалі дуже швидко «вичерпується» листям, і його концентрація в денні години тут знижується до 0,01%, що в 10 разів нижче оптимуму. Та й використовується вуглекислий газ, як показали дослідження В.М. Любименка (1925) та М.І. Будика (1977), з низькою ефективністю. Із загального дифузного потоку вуглекислого газу листки рослин поглинають його тільки на 10%.
Концентрація кисню в атмосфері також не оптимальна для зелених рослин. Вона вища тих значень, при яких фотосинтез максимальний. Очевидно, що сучасна біосфера розбалансована у співвідношенні СО2/О2. Однією з причин такого розбалансування є неоптимальне співвідношення в біосфері автотрофних та гетеротрофних організмів. Інша причина розбалансування полягає в змінах газового складу атмосфери під впливом промислового та сільськогосподарського виробництва.
Усі тварини набагато більше, ніж рослини, чутливі до газового складу атмосфери. Аеробним тваринам кисень потрібен для дихання, а для анаеробів кисень, навпаки, отруйний.
Сонячна радіація. Біопродукція зелених рослин значною мірою залежить від надходження сонячної радіації. Для гетеротрофних організмів прямої необхідності у світлі немає. Гриби та бактерії часто добре ростуть у темряві. Але високоорганізовані тварини потребують світла, оскільки зір у них є важливим фактором при добуванні їжі. Щодо яскравості освітлення тварини чітко підрозділяються на денних (наприклад, горобинні птахи) та нічних (кажани). Добова періодичність освітлення в багатьох видів тварин служить сигналом початку розмноження. Довгий день у північних широтах (до 18-24 годин) забезпечує можливість більш тривалого періоду пошуку та добування їжі. Саме тому більшість видів птахів переміщуються на північ на період розмноження, оскільки їхні потреби в їжі різко зростають під час вигодовування пташенят.
Ґрунт. Для автотрофних рослин важливим фактором їхньої життєдіяльності є родючість ґрунту. Це досить містке поняття, але в більшості випадків родючість визначається наявністю в ґрунті достатньої кількості макро- та мікроелементів мінерального живлення рослин. Виснаженню ґрунту сприяють деякі природні явища, наприклад, водна та вітрова ерозія, але найчастіше на площах, що використовуються людиною для отримання сільськогосподарської продукції, ґрунти виснажуються під впливом непомірної експлуатації [4].
Територія. Своєрідним екологічним фактором контролю продуктивності є простір. Він необхідний і для рослин, і для тварин. У тварин біомасу чітко визначає розмір кормової ділянки. Окремим видам тварин у період розмноження властива вузька територіальність, коли кожна сім'я або група сімей здобувають їжу на ділянках, що належать їм. Такі ділянки ретельно охороняються від вторгнення особин свого виду. Для цього застосовуються голосові засоби (птахи), пахучі мітки (ссавці) і т.п.
Розміри кормових ділянок звичайно пов'язані з величиною тіла тварин. Наприклад, полівка, яка має вагу тіла 27 г, потребує на добу всього 2,4 г сухого корму. Вона може зібрати його з ділянки лише в кілька квадратних метрів. Для лося з масою тіла 200 кг або слона з масою тіла 4 т їжі потрібно декілька десятків кілограмів і кормові ділянки будуть відповідно більшими. У Карпатах для життєзабезпечення однієї особини карпатської сарни потрібно 7-10 га, та стійкою буде тільки популяція з 800-1600 особин, якій, таким чином, потрібно 12-15'тисяч га території. Є територіальний контроль і в хижаків. Кормові ділянки левів складають 25-50 км2. Але розміри таких ділянок завжди залежать і від кількості на них кормових ресурсів.
Не менш важлива і якість їжі. Так, якщо самки колорадського жука отримують в їжу старі листки картоплі, то через 11 діб у них повністю припиняється відкладання яєць. При годуванні самок молодими листками кладка триватиме більше місяця. Коли вівцям замість потрібного їм сіна пропонуються в їжу соковиті корми - кормова капуста, коренеплоди, зменшується не тільки приріст, стає неможливим також і розмноження. Відсутність їжі потрібної якості скорочує тривалість життя. З цієї причини дощові черв'яки не можуть жити в посадках з вільхи або акації. Для них несприятливий хімічний склад листків цих рослин.
Нормальний біопродукційний процес у тварин пов'язаний з певними ландшафтними особливостями території: наявністю лісу, водойм, галявин та ін. Так, граки - мешканці лісів, що перемежовуються з перелісками, лелека може селитися лише в тих місцях, де поблизу водойм є великі дерева, я,кі необхідні їм для гніздування. Хоча лелеки в умовах антропогенного ландшафту навчилися класти гнізда й на телеграфні стовпи, і на опори ліній електропередач.
Ландшафтне різноманіття є важливим фактором життя багатьох тварин. Ті ж граки можуть добувати їжу тільки в травостої висотою не більше ніж 15 см. Тому весною вони живляться на ланах. Як тільки трава підростає і досягає критичної для них висоти, граки переміщуються на пасовища, до середини літа вони годуються на сіножатях, а наприкінці літа після збирання врожаю знову переміщаються на поля.
У цілому вплив абіотичних факторів на утворення біопродукції має комплексний характер. Визначає можливості біопродукції не один, хоча й важливий фактор, а їх сполучення. В екології цей факт відомий як закон А. Мітчерліха - Б. Бауле. Так, наприклад, коефіцієнти використання рослинами сонячної енергії, вуглекислого газу та води не є постійними. Вони змінюються і набувають більших значень у сприятливих для рослин природних комплексах, де значення інших абіотичних параметрів близькі до оптимуму, і нижчих значень - у несприятливих умовах. В Україні коефіцієнт використання сонячної радіації рослинами закономірно змінюється з півдня на північ від 0,6 до 1,0% паралельно зростанню кількості опадів та підвищенню гуміфікованості ґрунтів. Поєднання окремих абіотичних факторів і умов формує такі середовищні комплекси, як тривалість вегетативного періоду, клімат місцевості, конкретний режим погоди, тип ґрунтового покриву. Тому географічні карти первинної продукції рослинного покриву принципово збігаються з картами клімату та з ґрунтовими картами.
Якщо клімат для живих організмів є певною абстракцією, погодні умови виступають як повсякденний фон реалізації біопродукційного процесу. При вирощуванні культурних рослин навіть вживається поняття метеотропного ризику, що включає в себе всю сукупність відхилень погоди, які перешкоджають отриманню оптимального врожаю.
Екологічні зв'язки тварин зростають завдяки їхній рухомості. Звісно, є й нерухомі тварини (корали), а в багатьох видів осілих тварин спостерігається прив'язаність до певної, часто досить невеликої, ділянки території. Але багато видів тварин широко мігрують і на різних фазах розвитку можуть займати різноманітні біотопи. Деякі водяні та суходільні тварини можуть пересуватися на віддалі до 10 тис. км. Такі міграції пов'язані з динамікою використання їжі. Так, на великі віддалі в пошуках місць, багатих на зоо- та фітопланктон, переміщуються кити. У лососевих риб та вугрів молодь та дорослі особини мешкають в надзвичайно віддалених одна від одної ділянках водойм. На багато тисяч кілометрів перелітають птахи, залишаючи негостинні для них узимку помірні широти, але повертаються сюди знову навесні, коли спостерігається пік зростання біомаси рослин та тварин, які є їхньою їжею [9].
Поєднання екологічних факторів відрізняються в різних регіонах планети. Тому є чітка відмінність у біопродукції на континентах (табл. 1), яка зумовлена їхнім географічним положенням та пануючим кліматом. Оцінка такого роду даних дозволяє зробити висновок, що в глобальному масштабі біопродукцію контролюють тепло та вологість. Очевидні зниження біопродукції в тих регіонах, де великі території відрізняються низьким водозабезпеченням (пустелі) або мають холодний клімат. За даними Ю.М. Куражсковського (1969), біологічна продуктивність природних одиниць пов'язана з типом природної зони. Для природних зон України вона становить (ц/га на рік): у лісовій зоні - 75, у лісостеповій зоні - 125, у степу - 85, у сухих степах - 50.
Таблиця 1. Продукція природного рослинного покриву [8]
|
Територія |
Продуктивність в г/м на рік |
|
Європа |
850 |
|
Азія |
980 |
|
Африка |
1030 |
|
Північна Америка |
820 |
|
Південна Америка |
2090 |
|
Австралія та Океанія |
860 |
|
Континенти в середньому |
950 |
|
Океани в середньому |
150 |
|
Земна куля в середньому |
400 |
Максимальна біопродукція властива лісостеповій зоні. Лісостепова зона України - це її головне природне багатство. Відповідно до наведених показників знаходиться і зональна зміна продукції сільськогосподарських тварин, що відображає кількість та якість кормів.
Важлива сторона екологічного контролю продукційного процесу - це нестабільність абіотичних факторів. Рослини та тварини змушені витрачати енергію на пристосування до коливань екологічного режиму, і біопродукція падає.
Деякі коливання погоди мають суто стохастичний характер, інші - виражену циклічність. Спостереження, що виявили циклічність екологічного режиму, проводили ще С.П. Крашенінніков (1745-1755) та М.В. Ломоносов (1750-1765) [8]. У наш час відоме існування циклів зміни клімату різної тривалості. Циклічним змінам екологічних режимів відповідають цикли розміру первинної біопродукції автотрофних рослин.
За А.С. Мончадським (1958), екологічні фактори поділяються на три основні групи за рівнем періодичності:
а) первинні періодичні фактори з добовою, сезонною та річною ритмікою - температура, освітленість; усі живі організми порівняно легко адаптуються до них;
б) вторинні періодичні фактори характеризуються періодичністю, що пов'язана з режимом первинних факторів; це вологість повітря, концентрація в повітрі вуглекислого газу; адаптація до них у живих організмів менша;
в) неперіодичні фактори, мінливість яких має стихійний характер, це штормові вітри, пожежі, виверження вулканів; адаптування живих істот до них найнижче.
2.3 Ценотичний контроль продуктивності, біопродукція в різних біомах
Оточення будь-якого живого організму, який бере участь у біопродукційному процесі та розмноженні, включає в себе не лише абіотичні фактори навколишнього середовища, до нього також входять й інші живі організми цього ж або іншого виду. Жити та формувати біопродукцію кожній живій істоті доводиться в умовах того чи іншого біоценозу в тісній взаємодії з іншими організмами. Такі ценотичні зв'язки інколи настільки важливі, що як фактор контролю розміру та якості біопродукції вони перекривають за силою дії абіотичні фактори. Кожен живий організм не тільки відчуває певний вплив з боку своїх співмешканців у ценозі, але й сам впливає на них. Такі впливи можуть поділятися на три типи: позитивні, нейтральні та негативні. Це веде до виникнення між організмами ряду специфічних форм взаємодії.
Основні з них такі:
нейтралізм - при сумісному проживанні організми не чинять один на одного ні позитивного, ні негативного впливу;
конкуренція - два види організмів або особини одного виду використовують один і той же подільний ресурс або намагаються витіснити один одного;
паразитизм та хижацтво - один із видів використовує організми іншого виду як трофічний ресурс;
мутуалізм або співробітництво - при сумісному проживанні організми сприяють один одному;
аменсалізм - взаємозв'язок між організмами має односторонній характер: для одного партнера він сприятливий, а для іншого нейтральний.
Одним із дуже поширених механізмів ценотичного контролю продукційного процесу є конкуренція. Форми конкурентних взаємозв'язків надзвичайно різноманітні. Види рослин і тварин конкурують за їжу, за оптимальні умови існування, за простір.
Цілком очевидною є конкуренція рослин за світло, коли вони тягнуться вгору, намагаючись перерости сусідів та перехопити більшу частину сонячної радіації. У посівах культурних рослин відбувається активна конкуренція, з бур'янами не лише за світло, але й за воду та мінеральні речовини ґрунту. У випадку сильного конкурентного впливу бур'янів урожай культурних рослин може сильно зменшуватися. Птахи активно конкурують за місця гніздувань. У хижих ссавців (соболь, куниця, ласка) чітко проявляється конкуренція за територію, де вони добувають собі їжу. В усіх цих випадках конкурентно пригноблений вид знижує свою біопродукцію, може навіть бути повністю витісненим з даного екотопу.
Досить сильно впливають на рівень біопродукційного процесу паразитизм та хижацтво. Але в природних умовах, як правило, відносини даного типу не ведуть до повного зникнення особин хазяїна або жертви. Відбувається хвилеподібне коливання розміру сумарної біомаси та чисельності цих організмів (рис. 2). Під впливом хижацтва або паразитизму біомаса популяції жертви сильно знижується, що призводить до зниження чисельності та біомаси хижака або паразита. За цим починається нова хвиля збільшення чисельності хазяїна і т.д.
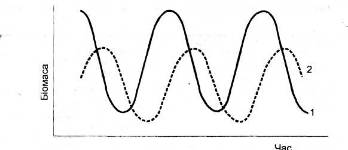
Рис. 2. Взаємозумовлений хвилеподібний тип динаміки біомаси жертви та хижака: 1 - жертва, 2 - хижак.
Піки біомаси хижака завжди нижчі, ніж у жертви та запізнюються у часі відносно піків біомаси жертви.
Описаний тип стосунків організмів принципово відрізняється від типу використання природних ресурсів людиною, коли ресурс знищується або повністю, або до такого рівня, що він уже не спроможний до самопоновлення. Саме таким чином був знищений бізон у преріях Північної Америки, морська корова Стеллера біля берегів Камчатки та ряд інших видів. Публіцисти називають такий тип використання біологічних ресурсів хижацьким, але як літературне порівняння це невірно. При справжньому хижацтві популяція жертви ніколи повністю не знищується. У Канаді, наприклад, при чисельності лосів менше ніж 0,2 особин/ км2 вовки взагалі не заселяють біотоп, що сприяє нормальному розмноженню та виживанню молодняку лосів.
У природі дуже поширені й мутуалістичні стосунки. Найкращим прикладом чіткого мутуалізму є лишайники, організм яких сформований із грибів та водоростей. Кожен із компонентів такого псевдоорганізму отримує з сумісного життя користь. Мутуалістичний характер мають симбіотичні взаємозв'язки бобових рослин та бульбочкових азотфіксуючих бактерій. Збільшення біопродуктивності під впливом такого симбіозу давно відоме на практиці в сільському господарстві. Жуйні тварини перетравлюють клітковину за допомогою бактерій, які розкладають целюлозу і живуть у кишечнику тварин. Раки-самітники полюбляють жити разом з актиніями, які використовують залишки їхньої їжі, а від самого рака-самітника відлякують багатьох хижаків.
Одним із найбільш яскравих випадків взаємодопомоги в рослин є сприяння дорослих особин одного виду приживлюваності й розвитку сходів іншого виду.
Власне механізми і позитивних, і негативних зв'язків між живими істотами можуть бути дуже тонкими і зовні непомітними.
Взаємозв'язки між організмами, зумовлені такими виділеннями, отримали назву алелопатичних, а галузь науки, яка їх вивчає, алелопатії. Алелопатичні відносини помітно впливають на розмір біопродуктивності культурних та дикорослих рослин.
Роль ценотичних факторів у біопродуктивному процесі виявляється в тому, що різні сполучення живих організмів - біоми - відрізняються один від одного і розміром первинної продукції, і запасами біомаси. Так, у помірній зоні за принципово подібних режимів абіотичних факторів рівень біопродукції відрізняється залежно від того, в оточенні яких живих організмів, в яких комплексах здійснюється біопродукційний процес.
Система взаємодії живих організмів настільки значуща для природних систем, що дозволила Д. Лавлоку та Л. Маргулісу в 70-х роках XX століття запропонувати так звану гіпотезу Геї (Гея - давньогрецька богиня Землі). Відповідно до цієї гіпотези система взаємодії між живими організмами Землі настільки єдина та потужна, що перетворює біосферу в цілісну кібернетичну систему, наділену здатністю до саморегуляції. Метою цієї саморегуляції є підтримка на Землі умов, сприятливих для життя.
ВИСНОВКИ
В природі існують два основні докорінно різні типи живлення - автотрофне та гетеротрофне. Організми з автотрофним типом живлення використовують для побудови свого тіла неорганічні речовини, перетворюючи їх в органічні сполуки за рахунок зовнішніх джерел енергії. Організми з гетеротрофним живленням не здатні до самостійного синтезу органічних речовин, вони отримують їх у готовому вигляді. Гетеротрофи тільки перетворюють їх у специфічні органічні речовини свого тіла. Автотрофне живлення за формами його реалізації порівняно однорідне, а гетеротрофне - різнорідне. Гетеротрофне живлення тварин пов'язане зі швидким «виїданням» їжі в безпосередній близькості від даної особини. Людина за типом харчування є гетеротрофною. За формами харчування вона займає проміжне положення між фітофагами та м'ясоїдними організмами.
Процес продукування живої речовини, що здійснюється в ході живлення, є центральною екосистемною функцією життя, її прийнято називати біологічною продуктивністю. У біологічній продуктивності беруть участь усі живі організми, і цим вони здійснюють свій внесок у підтримку існування біосфери. Мірою біологічної продуктивності служить величина продукції біомаси, яка створюється за одиницю часу, віднесеної до одиниці площі або об'єму простору (м3 та м2). З урахуванням основної екосистемної функції живі організми об'єднуються в три важливі групи: продуценти, консументи та редуценти. Групу консументів поділяють на кілька підгруп: первинні, вторинні і т.д.
Продукція, що створюється тим чи іншим живим організмом, залежить від двох генетично зумовлених факторів: 1) інтенсивності біопродукційного процесу; 2) темпів розмноження. Загальна зумовленість біопродукції екологічними факторами підпорядковується закону толерантності. На продуктивність впливають: температура, вода, вуглекислий газ та кисень, сонячна радіація, грунт, сонячна радіація, територія. Одним із дуже поширених механізмів ценотичного контролю продукційного процесу є конкуренція. Форми конкурентних взаємозв'язків надзвичайно різноманітні. Види рослин і тварин конкурують за їжу, за оптимальні умови існування, за простір. Досить сильно впливають на рівень біопродукційного процесу паразитизм та хижацтво. У природі дуже поширені й мутуалістичні стосунки. Роль ценотичних факторів у біопродуктивному процесі виявляється в тому, що різні сполучення живих організмів - біоми - відрізняються один від одного і розміром первинної продукції, і запасами біомаси.
СПИСОК ВИКОРИСТАНИХ ДЖЕРЕЛ
Білявський Г.О. Основи екології. – К.: Вища шк., 2004. - 289 с.
Білявський Г.О. та інші. Основи екологічних знань: Навч. посібник. – К.: Либідь, 2002. – 346 с.
Бойчук Ю.Д., Солошенко Е.М., Бугай О.В. Екологія і охорона навколишнього природного середовища: навчальний посібник. – Суми, 2002. – 284 с.
Гайнріх Д., Гергт М. Екологія. - К.: Знання-прес, 2001. – 287 с.
Голубець М.А., Кучерявий В.П., Генсірук С.А. та ін. Конспект лекцій з курсу "Екологія і охорона природи". - К., 1990.
Джигирей В.С. Екологія та охорона навколишнього природного середовища. – К.: Т-во „Знання”, КОО, 2000. – 203 с.
Запольський А.К., Салюк А.І. Основи екології. – К.: Вища школа, 2003. – 358 с.
Злобін Ю.А., Кочубей Н.В. Загальна екологія: Навч.посібник. – Суми: ВТД «Університетська книга», 2003. – 416 с.
Злобін Ю.Л. Основи екології. - К.: Лібра, 1998. - 248 с.
Кучерявий В.П. Екологія. – Львів: Світ, 2001. – 500 с.
Новиков Г.А. Основи общей экологии. Л., 1979.
Новиков Ю.В. Природа и человек. – М.: Просвещение, 1991. – 223 с.
Новиков Ю.В. Экология, окружающая среда и человек. - М.: ФАИР, 1998. - 320 с.
Одум Ю. Экология. В 2 т., М., 1986., Т 1,2.
Степановских А.С. Экология. - М.: ЮНИТИ, 2001. - 703 с.