Компьютерное моделирование в экологии
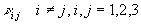 –
частота диссоциативных
переходов.
Важным
фактором баланса
роста клеток
являются затраты
энергии на их
поддержание.
Эти затраты
складываются
из расходов
на повторный
синтез нестабильных
макромолекул
и клеточных
структур, на
поддержание
градиентов
веществ между
клеткой и окружающей
средой, а также
между компартментами
клетки, на
подвижность
клеток (если
они ею обладают),
процесс сброса
избыточной
энергии, поступающей
в клетки (Минкевич
и др., 1998). Удельная
скорость затрат
энергии на
поддержание
 зависит
от вида микроорганизмов,
субстрата,
температуры,
возможно, и от
других факторов.
Влияние концентраций
ингибирующих
субстратов
этанола и цинка
на величину
клеток
этанолассимилирующих
дрожжей Candida
valida изучалось
в работе И.Г.Минкевича
с соавторами.
В результате
исследования
были получены
формулы для
скорости потребления
энергетического
субстрата qS
и удельной
скорости роста
 ,
которые отражают
качественные
особенности
влияния данных
субстратов
на рост культуры
– лимитирования,
существования
наклонного
плато и субстратного
ингибирования:
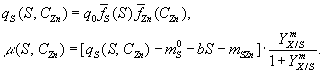
Член
 ,
описывающий
влияние этанола,
имеет вид
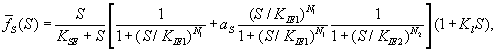
член
 ,
описывающий
влияние цинка
на скорость
потребления
энергетического
субстрата qS
, записывают
как
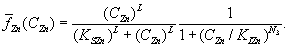
Влияние
концентрации
цинка в окружении
клеток на удельную
скорость затрат
энергии на
 описывают
выражениями
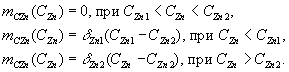
В
приведенных
формулах CZn
обозначает
внешнюю концентрацию
цинка, CZn1
и CZn2
– внутреннюю
концентрацию
цинка, S
– концентрацию
этанола;
 –
максимальный
выход роста;
b – константа;
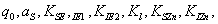
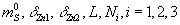 –
физиологические
параметры
культуры Candida
valida.
Предлагаемая модель обеспечивает высокую степень соответствия экспериментальным данным и объясняет многие особенности поведения культуры. По мнению авторов, описанные зависимости могут применяться ко многим органическим и минеральным субстратам, в том числе обладающим токсическим действием на микроорганизмы.4
Заключение
 Таким
образом, ситуация
сосуществования
видов возможна
только, когда
точка (
 )
лежит в секторе
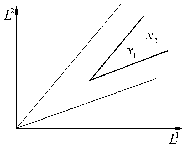
II. На плоскости
 область
значений L1
и L2,
при которых
виды могут
сосуществовать,
задается сектором
с вершиной в
точке ()
и сторонами,
параллельными
сторонам сектора
II (рис. ).
Рис.
В области x1, x2 сосуществуют два вида. L1, L2 – общие запасы питательных веществ
В итоге, можно
выделить 12 различных
способов заполнения
плоскости
биогенов (три
варианта
принадлежности
точки ()
одному из секторов,
каждый из которых
делится на
четыре по положению
значений
 на
оси L1 и
 на
оси L2). Причем,
кроме случаев,
когда области
доминирования
прилегают друг
к другу, существуют
варианты наложений
различных
исходов (в этой
ситуации результат
зависит от
начального
значения биомасс),
а также разрывы,
внутри которых
происходят
колебания.
Безусловно, можно сказать, что привлечение компьютеров существенно раздвинуло границы моделирования экологических процессов. С одной стороны, появилась возможность всесторонней реализации сложных математических моделей, не допускающих аналитического исследования, с другой – возникли принципиально новые направления, и, прежде всего, – имитационное моделирование.
Список литературы:
1. Бигон М., Харпер Дж., Таусенд К. Экология: В 2 т. М.: Мир, 1989.
Бродский А.К. Краткий курс общей экологии. СПб.: Изд-во СПбГУ, 1992.
3. В.П.Зайцева, А.В.Паялов. В помощь учителю. Мурманск, 1999
4. Хованов Н.В. Биометрия. СПб., 1994.
5. Гублер Е.В. Вычислительные методы анализа и распознавания патологических процессов. М.: Медицина, 1978.
6. Акоев И.Г., Максимов Г.К., Малышев В.М. Лучевое поражение млекопитающих и статистическое моделирование. М., 1972.
1 Хованов Н.В. Биометрия. СПб., 1994, 54 с.; Бигон М., Харпер Дж., Таусенд К. Экология: В 2 т. М.: Мир, 1989, 2 т. 87 с.
2 Бродский А.К. Краткий курс общей экологии. СПб.: Изд-во СПбГУ, 1992., 96 с.
1. Бигон М., Харпер Дж., Таусенд К. Экология: В 2 т. М.: Мир, 1989, 1 т. 76 с.
3 Бродский А.К. Краткий курс общей экологии. СПб.: Изд-во СПбГУ, 1992., с 23
4 Бродский А.К. Краткий курс общей экологии. СПб.: Изд-во СпбГУ, 1992, с 103