Кинетические методы определения загрязнителей в различных природных средах
К третьей группе можно отнести количественные способы выражения степени токсичности природных вод. Наибольшее распространение среди них получил способ оценки токсичности в баллах с помощью так называемой формулы "суммарной токсичности" [1]:
tХ = 1T(i)/(tT(i)·n), (2)
где tХ - "суммарная токсичность"; 1T(i) - условный балл класса реакций тест-организмов; tT(i)- время проявления реакции тест-организма; n - число тест-организмов, у которых отмечена соответствующая реакция.
Согласно (2), чем больше значение tХ, тем выше балл токсичности, и по этому критерию уровень токсичности природной воды изменяется от нетоксичной (балл токсичности = 0) до чрезвычайно токсичной (балл токсичности = 500). Следовательно, критерий tХ, также как и ПДК, "признает" существование нижнего порога действия токсичного вещества. Бальную систему используют также при ранжировании токсичности по кратности разбавления (при нормировании сброса сточных вод) и при оценке экологического статуса водоема в терминах "олиго-политоксичность" (при классификации вод по сапробности).
Особо следует сказать о прогностических возможностях существующих критериев оценки токсичности природных вод. Критерии (1) и (2), фиксируя физиолого-морфологические реакции тест-организма, с той или иной степени достоверности отражают состояние природных вод в данный момент времени, но они не могут быть использованы для ранней диагностики токсического воздействия того или иного вещества. Между тем, в условиях все возрастающего антропогенного воздействия на окружающую среду, вопросы раннего прогнозирования устойчивости природных экосистем становятся приоритетными. Иными словами, речь идет об оценке изменений, происходящих в экосистеме до проявления морфологических, физиологических, популяционных и других отклонений от нормы и их использования для предсказания возможных путей развития экосистемы.
Это обстоятельство вынуждает перенести акцент мониторинговых исследований природных вод на изучение биохимических процессов, происходящих в тест-организма при воздействии токсичного вещества. Надо заметить, что проблемам биохимии водных организмов в последнее время уделяется огромное внимание, однако при попытке использовать их в прогностических целях возникают существенные, предопределенные сложностью и многообразием биохимических процессов, трудности.
Предлагается иной подход к оценке токсичности природных вод. Он основан на: а) абстрагировании от механизма биохимического воздействия загрязняющего вещества на тест-организм и б) использовании для описания реакции тест-организма на загрязняющее вещество представлений формальной химической кинетики, основанных на принципе лимитирующей (или скорость определяющей) стадии сложных процессов. Действительно, любой отклик тест-объекта на токсичное вещество можно представить, как результатом химической реакции между "активными центрами" тест-организма и токсичным веществом. Тогда формально кинетика отклика тест-организма на токсичное вещество можно записать в виде:
±dZ/dt = k·C1·C2 = k·a·C1·C3, (4)
где Z - положительный (+) или отрицательный (-) отклик тест-организма; t - время; C1 - концентрация активных центров тест-организма; C2 - концентрация токсиканта в фазе тест-организма; C3 - концентрация токсиканта в водной фазе; a - коэффициент пропорциональности между С2 и С3; k - константа скорости реакции отклика тест-организма. Ясно, что в качестве количественного критерия степени токсичности природных вод здесь выступает параметр k.
Распространение представлений формальной химической кинетики на биотестирование, проведя при этом некоторую аналогию между сорбционными свойствами полимерных и биологических мембран, позволяет предвидеть два крайних случая: С1=k1C2 и C2>>C1. Тогда уравнение (4) можно переписать в виде
±dZ/dt = k1·C22, (5)
или в виде
±dZ/dt = k2·C1, (6)
где k1 = k·С1; k2 = k·C2 = k·a·C3.
Из последних выражений следует, что в зависимости от соотношения концентраций активных центров тест-организма и токсичного вещества, реакция отклика тест-организма может быть как бимолекулярной, так и мономолекулярной.
С целью апробирования предлагаемого подхода для мониторинговых исследований изучалось воздействие нефтяного загрязнения на сеголетки русского осетра. В качестве тест-реакции на нефтяные углеводороды (НУ) было использовано изменение концентрации суммарных сульфгидрильных групп в тканях сеголеток. Для этого по 12 экземпляров сеголетки русского осетра длиной тела 6-8 см помещали в аквариумы объемом 20 л с различным содержанием сырой нефти. Предварительно нефть эмульгировали перемешиванием механической мешалкой в течение 10 минут при комнатной температуре. Смена раствора проводили через каждые 3 суток. По истечении заданного времени рыбы извлекали из аквариума и подвергались биохимическому анализу. Параллельные измерения проводили на контрольных рыбах, содержащих в аквариуме без нефти. В процессе опыта рыб кормили живым трубочником.
Сульфгидрильные группы в тканях сеголеток, солюбилизированных додецилсульфатом натрия, определяли методом амперометрического титрования, в качестве титранта использовали нитрат серебра.
Выбор в качестве тест-реакции изменение содержания SH-групп в тканях сеголеток обусловлен следующим. Сульфгидрильные группы выделяются среди других функциональных групп рыб высокой реакционной способностью и многообразием химических реакций, в которые они вступают - алкилирование, ацилирование, окисление, тиолдисульфидный обмен, образование меркаптидов, полумеркаптилий, меркапталов, водородных связей и комплексов с переносом заряда. Во многих реакциях SH-группы принимают участие в форме меркаптидного иона, обладающего высокой нуклеоофильной способностью, они легко окисляются молекулярным кислородом, его радикалами, перекисью водорода. Среди процессов, протекающих в организме с участием SH-групп белковой и небелковой природы, следует отметить ферментативные реакции - в настоящее время насчитывается около 100 ферментов, в активности которых принимают участие SH-групп. SH-групп играют важную роль в ряде физиологических и биохимических процессов - в нервной деятельности, мышечном сокращении, делении клеток, регуляции проницаемости мембран митохондрий, окислительном декарбоксилировании a-кетакислот, окислительном фосфолировании, фотосинтезе, механизме радиационных поражений и при действии токсичных веществ. Из сказанного следует, что концентрация SH-групп должна тонко реагировать на присутствие в природной воде токсичного вещества.
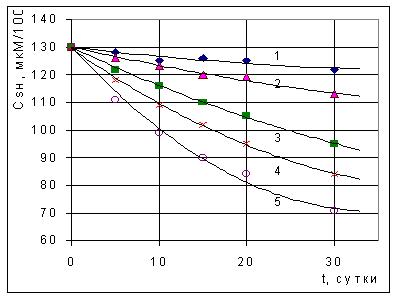
Рис. 1. Изменение концентрации сульфгидрильных групп в теле личинок русского осетра при их экспозиции в воде, содержащей O.05 (1), 0.25 (2), 0.50 (3), 0.75 (4) и 1.00 (5) мг/л нефти. Точки - экспериментальные данные, сплошные линии - расчет по уравнению (14).
Полученные экспериментальные данные приведены на рис. 1. Они показывают, что выдерживание рыб в воде, содержащей нефть, приводит к уменьшению концентрации SH-групп белков и низкомолекулярных тиоловых соединений сеголеток русского осетра. Для краткости назовем этот процесс дезактивацией SH-групп, и применительно к нему перепишем уравнения (5) и (6) в виде:
-dCSH/dt = k1C2SH, (7)
-dCSH/dt = k2CSH. (8)
Решение последних двух уравнений при начальных условиях, t = 0, CSH = C0SH, дает соответственно (9) и (10):
CSH = C0SH/(1+k1tC0SH), (9)
CSH = C0SH[1-exp(-k2t)], (10)
где C0SH и CSH - концентрация сульфгидрильных групп в теле сеголеток до и после воздействия НУ в течение времени t.
Построение анаморфоз уравнений (9) и (10) показала (рис. 2), что кинетика процесса дезактивации сульфгидрильных групп сеголеток лучше подчиняется уравнению реакции второго порядка, чем уравнению реакции первого порядка. Найденные по тангенсу угла наклона прямых 1/CSH=f(t) значения величин k1 приведены в табл. 1.
Таблица 1. Константы скорости дезактивации SH-групп сеголеток русского осетра при их экспозиции в воде, содержащей нефть
| Содержание нефти в воде, мг/л | k1, мкмоль/100 г в сутки |
|
0.05 0.25 0.50 0.75 1.00 |
1.7 3.9 9.3 14.1 21.7 |
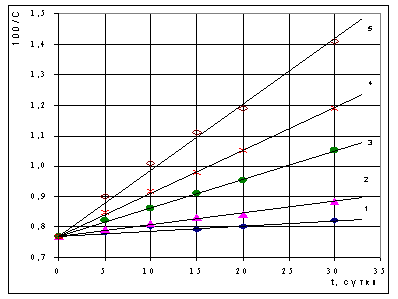
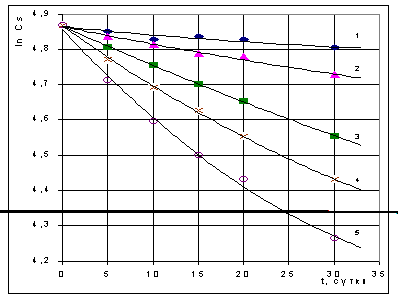
Рис. 2. К проверке выполнимости уравнений (9) и (10) для описания кинетики изменения концентрации SH-групп в теле сеголеток русского осетра. Обозначения, как на рис. 1.
Полученные данные не позволяют однозначно подтвердить или однозначно опровергнуть вопрос о пороге токсического воздействия нефти на гидробионты. В пределах точности эксперимента зависимость константы скорости дезактивации SH-групп от концентрации нефти в воде (Сну) может носить либо линейный
k1=20,23·Cну, (11)
либо нелинейный
k1=1,30+9,28·Cну+11,04·С2ну (12)
характер (рис. 3). Очевидно, при оценке токсического воздействия нефтяных углеводородов на гидробионты необходимо исходить не из общего их содержания в воде, а из концентрации растворенных (активных) форм. Однако на практике не будет большой ошибкой, если исходить из предположения о беспороговом влиянии нефтяного загрязнения и принять, что
k1 = b·Cну, (13)
где b - коэффициент пропорциональности; Сну - содержание нефтяных углеводородов в воде, мг/л.
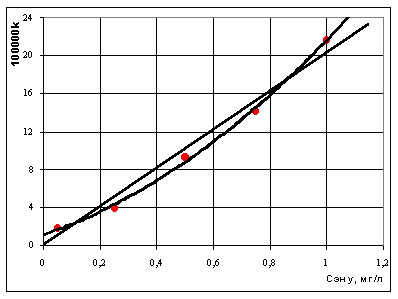
Рис. 3. Связь между константой скорости реакции дезактивации SH-групп сеголеток русского осетра и содержания нефти в воде. Точки – экспериментальные данные, сплошные линии - расчет по уравнениям (11) и (12).
Если это предположение верно, то, объединив уравнения (9) и (13), получим выражение
CSH = C0SH/(1+b·Cну·C0SH·t), (14)
которое позволяет прогнозировать воздействие нефтяных углеводородов на концентрацию SH-групп в тканях сеголеток при любых значениях нефтяного загрязнения и при любых длительностях экспозиции. О точности выполнимости уравнения (14) можно судить по данным рис. 1, где сопоставлены экспериментальные значения SH-групп в тканях сеголеток с теоретически рассчитанными кривыми.
В заключение отметим, что уравнение (12) позволяет решить и обратную задачу. Например, зная концентрацию SH-групп в тканях рыб, обитающих в загрязненной нефтью природной воде, можно найти время их пребывания в такой воде, а зная концентрацию SH-групп в тканях рыб и их возраст можно оценить "интегральное биологическое воздействие" нефтяного загрязнения природных вод на гидробионты.
Кинетический метод определения йода в пищевых продуктах и продовольственном сырье
Среди каталитических методов получил применение рода-нидно-нитритный метод. Он основан на реакции окисления роданид-иона смесью нитрат- и нитрит-ионов, катализируемой йодид-ионами. Предел обнаружения - 0,5-1,0 мкг в 100 г продукта.
Среди различных методов определения йода в кормах и растениях (кинетический роданидно-нитрит-ный, кинетический церий-мышьяковистый, фотометрический с бриллиантовым зеленым, объемный йод-крахмальный) наибольшую чувствительность и воспроизводимость результатов дают кинетические рода-нидно-нитритный и церий-мышьяковистый методы. Первый из них рекомендован также для нужд агрохимической службы. Наряду с этим описан простой метод количественного определения общего йода в пищевых продуктах, основанный на каталитической деструкции тиоционата нитритом в присутствии йодида и последующем фотометрическом определении при длине волны 450 нм. Предел определения метода -1 мкг йода в 100 г продукта, правильность - 90%, стандартное отклонение - 10%. Колориметрический метод определения йодидов был оптимизирован для рутинного анализа йода в пищевых продуктах, подвергнутых кулинарной обработке и содержащих большое количество соли. Метод основан на деструкции ферро-тиоцианатного комплекса нитритом, катализируемым йодидом. Предел обнаружения - 2,5 мкг/л, интервал линейности аналитического сигнала - 2,5-12 мкг/л, возврат йодида и йодата -100±10%. По сравнению с МС-ИСП-методом установлено небольшое расхождение результатов (не более 5%).
ГЛАВА 4. ОБОРУДОВАНИЕ ДЛЯ КИНЕТИЧЕСКИХ МЕТОДОВ АНАЛИЗА
ФЛЮОРАТ®-02-АБФФ-Т – полуавтоматический фотометрический анализатор биожидкостей
Общее описание
Выпускается по лицензии Министерства Здравоохранения Российской Федерации серии М № 011373 и имеет регистрационный № 29/07020299/0182-00
Лицензия № 64/2003-0280-0309 от 11 июля 2003 года
Анализатор Флюорат®-02-АБФФ-Т - первый отечественный полуавтоматический фотометр медицинского назначения для определения биохимических показателей в биопробах. Анализаторы представляют собой открытую систему, т.е. предоставляет пользователю возможность работать с наборами реагентов любых фирм изготовителей.
Анализаторы позволяют работать со следующими типами биохимических реакций:
А) Реакции по конечной точке – это тип реакций, в которых измерение оптической плотности рабочего раствора проводится после полного завершения химической реакции.
Б) Кинетические реакции – тип реакций, в которых измерение оптической плотности рабочего раствора проводится в ходе протекания химической реакции.
Кинетические методы анализа являются более точными и правильными, чем методы по конечной точке. В настоящее время эти методы все более широко используются в медицинской практике в России. В тоже время для реализации кинетических методов анализа требует специализированного оборудования, наличие в котором термостатирования измерительной кюветы с точностью не хуже ± 0,2 Со и специальной программы расчета - обязательное условие.
Традиционно используемые в российских медицинских учреждениях фотометры общего назначения отечественного производства не дают возможности пользователям работать кинетическими методами.
Анализатор Флюорат®-02-АБФФ-Т представляет собой фотометр и обеспечивает измерение основных типов реакций, применяемых в медицинской лабораторной практике:
Фотометрия по конечной точке со стандартом и холостой пробой по реагенту.
Фотометрия по конечной точке, по коэффициенту пересчета (фактору) и холостой пробой по реагенту.
Фотометрия по конечной точке со стандартом и холостой пробой по образцу.
Фотометрия по конечной точке, по коэффициенту пересчета (фактору) и холостой пробой по образцу.
Фотометрия, кривая калибровки по стандартам (до семи) с холостой пробой по реагенту.
Фотометрия. Кинетика (две точки) со стандартом.
Фотометрия. Кинетика (две точки) со стандартам и холостой пробой по реагенту.
Фотометрия. Кинетика. Фактор.
Оптическая плотность.
Бихроматика. Конечная точка по стандарту с холостой пробой по реагенту.
Отличительные особенности:
Работа в диалоговом режиме (вопрос - ответ)
Автоматическая смена светофильтров при выборе методики измерения
Автоматическая загрузка в оперативную память калибровочной зависимости (калибровки) при смене методики измерения
Мембранный насос и проточная микрокювета (для фотометрических методик)
Малый расход реагентов 400 мкл – 1000 мкл на 1 анализ
Встроенный термостат измерительной кюветы. Температуры стабилизации 25, 30, 37 оС
Хранение в памяти 40 методик анализа
Автоматический анализ результата на попадание в диапазон нормы
Печать протокола выполнения анализов на принтере
Производительность выполнения анализов до 100 анализов в час методом по конечной точке
НПФ АП «Люмэкс»® выпустила уже второе поколение полуавтоматических биохимических анализаторов - «Фотометр®-АБФ-100»
Принцип метода
Измерение оптической плотности и автоматический расчет концентрации определяемого компонента.
Анализаторы предназначены для работы с унифицированными в медицине фотометрическими методиками анализа для определения: общего белка, альбумина, общего и прямого билирубина, холестерина, триглицеридов, мочевины, АлТ, АсТ, ЛДГ, a-амилазы, 17- КС, 17- ОКС, кислой и щелочной фосфатазы и т.п., макроэлементов и электролитов.
Процедура работы
Алгоритм выполнения анализов предполагает сначала проведение специфической химической реакции (или ее начала) вне прибора (в пробирке). Для выполнения анализа используются специальные наборы реагентов, а в качестве пробы - соответствующий биологический материал. Далее: перенос рабочего раствора в кюветное отделение анализатора, измерение оптической плотности (интенсивности люминесценции) рабочего раствора, расчет концентрации, анализ результата на попадание в диапазон нормы, вывод результата и необходимых комментариев на экран и принтер. Все этапы работы анализатора кроме первых двух выполняются автоматически.
Диалоговый режим работы, использованный в анализаторе - это наиболее удобный для пользователя режим, позволяющий максимально упростить работу оператора. В случае работы в этом режиме оператор просто выбирает необходимый пункт из меню, предлагаемого анализатором, или непосредственно выполняет инструкцию, которая в виде текста отображается на дисплее.
Перед началом измерений в анализатор с клавиатуры необходимо ввести программу для выполнения анализа, в соответствии с инструкцией к используемому набору реагентов. Этот процесс также выполняется в диалоговом режиме.
Области применения
Анализ компонентов биопроб в клинико-диагностических лабораториях лечебных, профилактических, научно-исследовательских медицинских учреждениях.
Области нибольшей эффективности работы прибора:
Малые и средние клинико-диагностические лаборатории медицинских учреждений или как второй фотометр в крупных лабораториях.
Рекомендуемый комплект поставки
Основной блок анализатора
Стандартная кварцевая кювета К10 или блок проточной кюветы
Инструкция по эксплуатации
Сетевой предохранитель
ЛИТЕРАТУРА
Золотов Ю.А., Дорохова Е.Н., Фадеева В.И. и др. Основы аналитической химии. В 2 кн. Кн. 2. Методы химического анализа. / Под ред. Ю.А. Золотова. М.: Высш. шк., 1996.
Основы аналитической химии. Практическое руководство. / Под ред. Ю.А. Золотова. М.: Высш. шк., 2001.
Крейнгольд С.У. Каталиметрия в анализе реактивов и веществ особой чистоты. М.: Химия, 1983.
Марк Г., Рехниц Г. Кинетика в аналитической химии. / Пер. с англ. Под. ред. К.Б. Яцимирского. М.: Мир, 1972.
Яцимирский К.Б. Кинетические методы анализа. Изд. 2-е. М.: Химия. 1967.
Номенклатура кинетических методов анализа. (Рекомендации ИЮПАК, 1993). // Журн. аналит. химии. 1998. Т. 53, № 1. С. 110–126.
Мюллер Х., Отто М., Вернер Г. Каталитические методы в следовом анализе. / Пер. с нем. Под ред. К.Б. Яцимирского. М.: Мир, 1982.
Сычев А.Я. Окислительно-восстановительный катализ комплексами металлов. Кишинев: Штиинца, 1976.
Набиванец Б.И., Линник П.Н., Калабина Л.В. Кинетические методы анализа природных вод. Киев: Наукова думка, 1981.
Бончев П. Комплексообразование и каталитическая активность. / Пер. с болг. Под ред. К.Б. Яцимирского. М.: Мир, 1975.
Каталог химических реактивов и особо чистых химических веществ. М.: Химия, 1983.
Крейнгольд С.У., Божевольнов Е.А., Драпкина Д.А. // Журн. аналит. химии. 1967. Т. 22, № 3. С. 218.
Диксон М., Уэбб Э. Ферменты. М.: Мир, 1982. Т. 1. 389 с.
Фершт Э. Структура и механизм действия ферментов. М.: Мир, 1980. Т. 1. 432 с.
Клячко Н.Л. Ферменты - биологические катализаторы: Основные принципы действия // Соросовский Образовательный Журнал. 1997. № 3. С. 58-63.
Келети Т. Основы ферментативной кинетики. М.: Мир, 1990. 350 с.