Траловый лов минтая в Баренцевом море
Скорости приливных течений, как правило, превышают скорости постоянных. Их наибольшее значение (около 154 см/с) отмечается в поверхностном слое. Большими скоростями характеризуются приливные течения вдоль Мурманского берега, при входе в Воронку Белого моря, в Канинско-Колгуевском районе и на Южно-Шпицбергенском мелководье, что связано с особенностями движения приливной волны. Кроме сильных течений приливы вызывают значительные изменения уровня Баренцева моря. Высота подъема уровня при приливе у Мурманских берегов достигает 3 м. На севере и северо-востоке высота приливов. уменьшается и у берегов Шпицбергена равна 1-2 м, а у южных берегов Земли Франца-Иосифа всего 40-50 см. Это объясняется особенностями рельефа дна, конфигурацией берегов и интерференцией приливных волн, приходящих из Атлантического и Северного Ледовитого океанов, которые в одних районах увеличивают, а в других уменьшают величину прилива.
Кроме приливных колебаний в Баренцевом море прослеживаются и сезонные изменения уровня, вызванные главным образом совокупным воздействием атмосферного давления и ветров, а также внутригодовым ходом температуры и солености воды. По классификации А.И. Дуванина, здесь наблюдается зональный режим сезонного хода уровня. Для него характерно смещение максимума положения уровня на зиму (ноябрь-декабрь), а минимума на весну (май-июнь), что, согласно представлениям о статическом воздействии атмосферного давления на водную поверхность, объясняется повышением уровня при пониженном давлении, и наоборот. Такая барическая обстановка и соответствующее ей положение уровня наблюдаются в Баренцевом море зимой и весной. Разница между максимальным и минимальным положением среднего уровня в Мурманске может достигать 40-50 см.
Сильные и продолжительные ветры вызывают сгонно-нагонные колебания уровня в разных районах Баренцева моря. Они наиболее значительны (до 3 м) у Кольского побережья и у Шпицбергена (порядка 1 м), меньшие величины (до 0,5 м) наблюдаются у берегов Новой Земли и в юго-восточной части моря.
Большие пространства чистой воды, частые и сильные ветры благоприятствуют развитию волнения в Баренцевом море. Особенно сильное волнение наблюдается зимой, когда при устойчивых (не менее 16-18 ч) западных и юго-западных ветрах до 20-25 м/с в центральных районах моря наиболее развитые волны могут достигать высоты 10-11 м. В прибрежной зоне волнение менее развито, что связано с преобладанием ветров, дующих с берега. При продолжительных северо-западных штормовых ветрах высота волн достигает 7-8 м. Начиная с апреля интенсивность волнения уменьшается. Волны высотой 5 м и более повторяются редко. Наиболее спокойно море в летние месяцы, повторяемость штормовых волн высотой 5-6 м не превышает 1-3%. Осенью интенсивность волнения увеличивается и в ноябре приближается к зимней.
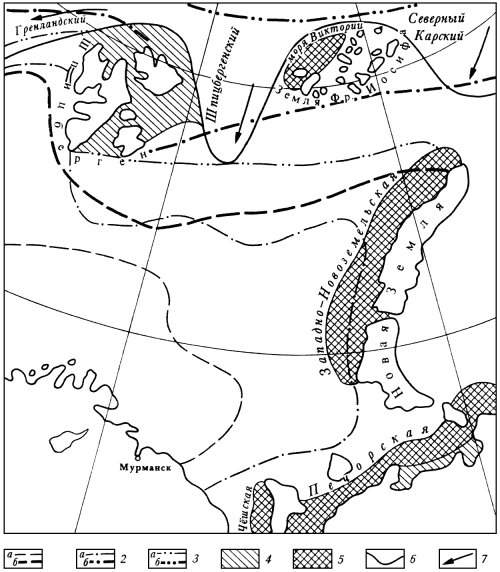
Рис. Границы распространения льдов в Баренцевом море: 1 - максимальная в феврале (а) и августе (б); 2 - средняя в феврале (а) и августе (б); 3 - минимальная в феврале (а) и августе (б); 4 - припай; 5 - полыньи; 6 - граница отрогов ледяных массивов; 7 - преобладающее направление дрейфа
Баренцево море относится к числу ледовитых, но это единственное из арктических морей, которое никогда полностью не замерзает (рис). Ежегодно около 1/4 его поверхности не покрывается льдом в течение круглого года. Это объясняется притоком в его юго-западную часть теплых атлантических вод, не позволяющих воде охлаждаться до температуры замерзания и служащих своеобразным барьером для льдов, надвигающихся с севера. Вследствие слабых течений из Карского моря в Баренцево принос льдов оттуда незначителен. Таким образом, в Баренцевом море наблюдаются льды местного происхождения. В центральной части и на юго-востоке моря это однолетние льды, которые образуются осенью и зимой, а весной и летом растаивают. Лишь на крайнем севере и северо-востоке, куда спускаются отроги океанического ледяного массива, встречаются старые льды, в том числе и арктический пак.
Льдообразование в море начинается на севере в сентябре, в центральных районах в октябре и на юго-востоке в ноябре. В море преобладают плавучие льды, среди которых встречаются айсберги. Обычно они встречаются у Новой Земли, Земли Франца-Иосифа и у Шпицбергена, так как айсберги образуются от ледников, спускающихся к морю с этих островов. Изредка айсберги течениями выносятся далеко к югу, вплоть до Мурманского побережья. Обычно айсберги не превышают 25 м в высоту и 600 м в длину.
Припай в Баренцевом море развит слабо. Сравнительно небольшие площади он занимает в Канинско-Печорском районе и у Новой Земли, а у Мурманских берегов встречается только в губах. В юго-восточной части моря и у западных берегов Новой Земли всю зиму сохраняются заприпайные полыньи. Наибольшее распространение льдов в море наблюдается в апреле. В этом месяце они покрывают до 75% его площади. Толщина ровного морского льда местного происхождения в большинстве районов не превышает 0,7-1,0 м. Наиболее толстые льды (до 150 см) встречаются на северо-востоке, в районе м. Желания.
В весенне-летнее время однолетние льды быстро тают. В мае южные и юго-восточные районы освобождаются ото льдов, а к концу лета почти все море очищается ото льдов, за исключением районов, прилегающих к Новой Земле, к Земле Франца-Иосифа и восточным берегам Шпицбергена. Ледовитость Баренцева моря изменяется от года к году, что связано с различной интенсивностью Нордкапского течения, характером крупномасштабной атмосферной циркуляции, общим потеплением или похолоданием Арктики в целом.
Гидрохимические условия. Хорошая связь Баренцева моря с Атлантическим и Северным Ледовитым океанами при относительно небольшом и локализованном речном стоке делает химический состав баренцевоморской воды чрезвычайно близким к океаническим водам. Общие гидрохимические условия Баренцева моря во многом определяются его окраинным положением и особенностями гидрологических процессов, в частности хорошим перемешиванием водных слоев. С ним тесно связано содержание и распределение растворенных в воде газов и биогенных веществ. Воды моря хорошо аэрированы. Содержание кислорода в толще воды по всей площади моря близко к насыщению. Максимальные величины в верхних 25 м в течение лета достигают 130%. Минимальное значение 70-75% обнаружено в глубоких частях Медвежинской впадины и на севере Печорского моря. Пониженное содержание кислорода наблюдается на горизонте 50 м, над которым обычно расположен слой воды с развитым фитопланктоном. Количество растворенных в воде нитратов возрастает от материка к северу и от поверхности ко дну. Летом количество нитратов в поверхностном (0-25 м) слое уменьшается и к концу сезона они почти полностью потреблены фитопланктоном. Осенью с развитием вертикальной, циркуляции содержание нитратов на поверхности начинает повышаться за счет поступления из нижележащих слоев.
Фосфаты обнаруживают такой же годовой ход стратификации, как нитраты. Следует отметить, что в районах распространения холодного промежуточного слоя последний замедляет обмен газами и питательными солями между поверхностными и глубинными слоями. Запас биогенных веществ в поверхностном слое пополняется летом за счет воды, образованной при таянии льда. Этим объясняется вспышка развития фитопланктона у кромки льдов.
Хозяйственное использование. Географическое положение и особенности природных условий Баренцева моря предопределяют основные направления его хозяйственного использования. С давних пор здесь развито рыболовство, причем оно базируется на добыче главным образом донных рыб (трески, пикши, палтуса, морского окуня), в меньших размерах вылавливается сельдь. В настоящее время в связи с истощением запасов этих рыб в уловах преобладает мойва, а традиционные виды рыб добываются в меньших количествах.
В губе Кислой (возле Мурманска) действует первая в стране опытно-промышленная приливная электростанция мощностью 450 кВт.
Баренцево море - важная транспортная магистраль с единственным в стране незамерзающим заполярным портом - Мурманском, через который осуществляются морские сообщения с разными странами и отправляются грузы по Северному морскому пути.
Дальнейшее хозяйственное освоение Баренцева моря связано с развитием исследований в нем. Среди различных проблем следует отметить изучение количественных характеристик водообмена с соседними бассейнами в зависимости от атмосферных воздействий, пространственно-временной изменчивости термохалинных показателей и течений, внутренних волн, мелкомасштабной структуры вод, колебания ледовитости, природных особенностей шельфовой зоны и т.п. На их решение направлены усилия исследователей этого моря.
Видовой состав водорослей Баренцева моря
По видовому составу флора макроводорослей Баренцева моря представляет собой обедненную флору Северной Атлантики (Зинова, 1974; Виноградова, 1986 а; Vinogradova, 1995). Эндемичных родов и видов здесь нет. В пределах Баренцева моря выделяется две фитогеографические зоны: бореальная и арктическая. Фитогеографическая граница между зонами проходит от мыса Святой Нос на северо-запад к Шпицбергену (Виноградова, 1984). Мурманское побережье Баренцева моря входит в состав высокобореальной подзоны. Юго-восточное побережье Баренцева моря и северные архипелаги - Шпицберген, Земля Франца Иосифа, Новая Земля относятся к арктической зоне.
Наиболее разнообразным по видовому составу макроводорослей является Мурманское побережье Баренцева моря. Всего на Мурманском побережье Баренцева моря обитает 194 вида макрофитов, из них 39 зеленых, 80 бурых и 75 видов красных водорослей (Зинова, 1962). Этот список видов ждет своей ревизии, так как изменились представления о систематике целого ряда таксонов, отмечены новые для региона виды, некоторые весьма распространенные группы, например, красные известковые водоросли остаются недостаточно изученными до сих пор.
Наиболее изученным является видовой состав водорослей в районе губы Дальнезеленецкой и прилегающих губах - Ярнышная, Зеленецкая, Большие и Плохие Чевры - в районе размещения Мурманского морского биологического института. Всего в этом районе отмечено 116 видов макрофитов: 43 бурых, 41 красных и 32 вида зеленых водорослей (приложение 1). Список составлен в соответствии c литературными данными (Виноградова, 1961, 1963, 1964 б, 1974, 986 б; Перестенко, 1963, 1964, 1965 б; Гринталь, 1965; Петров, 1965, 1974; Ефимова, 1988, 1990, 1995) и материалами собственных исследований (Аверинцева, Шошина, 1990; Шошина и др., 1994; Schoschina, 1997, неопубликованные данные).
В районе исследования, находящемся в северной части высокобореальной подзоны, отмечено меньше видов, чем в других районах этой подзоны на побережье Европы - фиордах Северной Норвегии, где отмечено 208 видов водорослей (104 бурых, 73 красных и 31 зеленых водорослей) (Jorde, Klavestad, 1963; Jaasund, 1965) или на побережье Северной Америки - например в районе Ньюфаунленда - 219 видов (76 бурых, 81 красных и 62 зеленых) (South, Hooper, 1980).
При движении от Мурманского побережья на север и северо-восток Баренцева моря, а также на юг к Белому морю идет обеднение видового состава, прежде всего за счет выпадения бореальных форм, а также наблюдается опускание литоральных форм в сублиторальную зону. Флора водорослей архипелага Шпицберген насчитывает 142 вида, включая 37 видов зеленых, 53 бурых и 51 вид красных водорослей (Vinogradova, 1995). Для флоры водорослей архипелага Земля Франца Иосифа известно 63 вида, из них 18 зеленых, 25 бурых и 30 красных (Виноградова, 1986 а). Эти данные отражают хорошо известный факт об уменьшении числа видов водорослей при движении с юга на север бореальной подзоны в Северной Атлантике и далее к арктической зоне
Соотношение географических элементов
Географический анализ водорослей в районе губы Ярнышной и Дальнезеленецкой (таблица 2) показывает, что преобладающей по числу видов является группа бореально-арктических видов - 72 водоросли (64%), из них высокобореально-арктические составляют большинство - 40 (36%), широко распространенных бореально-арктических несколько меньше - 32. Широко распространенные бореально-арктические и высокобореально-арктические виды в условиях Мурмана являются основными массовыми видами, создающими наибольшие биомассы и формирующие облик ассоциаций. Высокобореальных и широко бореальных водорослей насчитывается 25 вида (22%). Широко распространенных мультизональных видов отмечено 11. Тепловодных (бореально-тропических) немного - всего 3. По географическому составу флору водорослей губы Ярнышной можно охарактеризовать как высокобореальную.
Примечание. Географические группы: а - арктические, б - бореальные, вб - высокобореальные, б-а - бореально-арктические, б-на - борельно-низкоарктические, вб-а - высокобореально-арктические, вб-на - высокобореально-низкоаркические, б-ст - бореально-субтропические, б-т - бореально-тропические, а-б-ст - аркто-бореально-субтропические, а-б-т - аркто-бореально-тропические виды. Географический анализ проведен без учета Lithothamnion spр., ряда микроскопических водорослей с неясным распространением и ряда видов (Codiolum gregarium и Chlorochytrium inclusum), которые являются формами развития видов родов Urospora, Acrosiphonia, Ulothrix.
Распределение ассоциаций
Верхний горизонт литорали и супралиторальная кайма в губе заняты биоценозами Littorina saxatilis и Semibalanus balanoides. В этих биоценозах водоросли немногочисленны, встречаются только в местах, наиболее подверженной действию прибоя. Растительность в них представлена ассоциациями Porphyra umbilicalis (приурочена к открытым скалам) и Blidingia minima + Capsosiphon groenlandicus (приурочена к трещинам в скалах). Поселения водорослей сильно разрежены, водоросли растут отдельными небольшими пятнами, биомасса их незначительна: P. umbilicalis - 18,5-37,4 г/м2, зеленых еще меньше - 0,75-3,0 г/м2. Часто встречается в этих поселениях Ulothrix flacca.
Весной и начале лета в верхнем горизонте литорали (заходит и в средний горизонт) формируется ассоциация сезонных зеленых водорослей, представленная главным образом Blidingia minima, Capsosiphon groenlandicus, Urospora penicilliformis, видами Ulothrix, которые покрывают в это время все верхушки валунов, ко второй половине лета их вегетация заканчивается.
В нижнем этаже верхнего горизонта литорали при небольшом снижении прибойности развивается вдоль всей губы четко выраженный пояс Fucus vesiculosus. Обычно фукус образует чистые заросли (ассоциация Fucus vesiculosus) без примеси других водорослей, иногда это довольно густые заросли с биомассой до 12 кг/2.
Выше пояса Fucus vesiculosus на прибойных скалах иногда встречаются поселения Fucus spiralis.
В верхнем горизонте литорали, опускаясь и в средний горизонт, в центральных частях губ распространена ассоциация Fucus vesiculosus + Ascophyllum nodosum. Ассоциация неоднородна на своем протяжении из-за пятнистого распространения участков с разной степенью обилия F. vesiculosus и A. nodosum. Общая биомасса водорослей колеблется до 7 кг/м2. На фукусах многочисленны эпифиты - Elachista fucicola, Pilayella litoralis, Isthmoplea sphaerophora, Ulothrix flaccа. В ассоциации довольно много встречается зеленых водорослей - Monostroma grevillei, Acrosiphonia flagellata, A. arcta.
На валунных россыпях распространена ассоциация F. vesiculosus+Palmaria palmata (масса водорослей 1,7-15,3 кг/м2). В ее состав входят Ascophyllum nodosum, F. distichus, эпифитно растут Elachista fucicola, Phloeospora brachiata, из зеленых встречаются Monostroma grevillei, Acrosiphonia sonderi, A. flagellata.
В куту Fucus vesiculosus является ведущим на всей литорали от верхней границы распространения растительности до 0 глубин.
Ниже пояса Fucus vesiculosus располагается пояс F. distichus. В верхнем и среднем этажах среднего горизонта литорали ведущей является ассоциация F. distichus + Palmaria palmata с общей массой 14,4 кг/м2. Ядро ассоциации составляют F. vesiculosus, виды Acrosiphonia, Pilayella litoralis, Elachista fucicola, Phloeospora brachiata, характерна красная корковая водоросль Hildenbrandtia prototypus.
В центральной части губ пояс Fucus distichus становится шире и занимает весь средний горизонт литорали. Здесь выделена ассоциация F. distichus + F. vesiculosus. В ассоциации встречается много бурых нитчаток - Pilayella litoralis, Dictyosiphon foeniculaceus, Chordaria flagelliformis, Ploeospora brachiata, Ectocarpus sp.; из красных - Palmaria palmata и Devaleraea ramentacea, из зеленых - виды рода Acrosiphonia, Monostroma grevillei, Protomonostroma undulatum, Ulvaria obscura, Spongomorpha lanosa и другие.
В нижнем этаже среднего горизонта и в нижнем горизонте глубже пояса Fucus distichus развивается пояс F. serratus. В губе заросли F. serratus тянутся узкой прерывистой полосой, достигая наибольшего развития в слабо защищенных условиях на каменисто-валунном грунте, где можно встретить ассоциацию F. serratus+Devaleraea ramentacea.
В нижнем этаже в открытых частях губ ниже пояса фукоидов располагается пояс красных водорослей Devaleraea ramentacea и Palmaria palmata. Ядро ассоциации составляют Fucus distichus, Acrosiphonia sp. и Palmaria palmata, из бурых относительно много Scytosiphon lomentaria, Pilayella litoralis, из зеленых - Monostroma grevillei, Capsosiphon groenlandica.
Ближе к куту нижний горизонт и частично нижний этаж среднего горизонта литорали занимает биоценоз Mytilus edulis, в котором можно выделить полидоминантную ассоциацию P. palmata + H. ramentaceum + Laminaria saccharina. Эти ассоциациа наиболее богата по видовому составу водорослей. Они включают до 28 видов водорослей с общей массой 2,5-3,6 кг/м2 Постоянными видами, составляющими ядро ассоциации являются Palmaria palmata, Devaleraea ramentacea, Rhodomela lycopodioides, Porphyra sp., Rhodochorton penicilliforme, Fucus vesiculosus, Pilayella litoralis, Elachista fucicola, Sphacelaria arcta, S. plumosa, Chordaria flagelliformis, Ulvaria obscura, Capsosiphon groenlandicus.
В куту губы пояс красных водорослей отсутствует.
На литорали песчаные грунты с мелкой галькой заняты ассоциацией зеленых водорослей Rhizoclonium riparium + Cladophora sericea, для нее также характерны Еnteromorpha prolifera и Dictуosiphon foeniculaceus (биомасса водорослей очень низкая - всего 5 г/м2).
Сублитораль. Пояс ламинариевых тянется вдоль всей губы. В центральной части губы Ярнышной (в условиях слабо защищенного побережья) пояс ламинариевых начинается на высоте +0,9 м (над 0 глубин) и распространяется до 20-25 м глубины. На открытом побережье этот пояс поднимается еще выше на литорали и начинается на высоте +0,9 - +1,2 м, занимая весь нижний горизонт литорали; в сублиторали идет обычно до 20-25 м глубины, на открытых скалистых мысах - до 10-15 м. В куту губы он начинается на литорали на высоте +0,2-0 м и идет до глубины 8-12 м (до нижней границы распространения твердых грунтов).
В распределении ламинариевых в губе Ярнышной наблюдается определенная поясность. Можно выделить следующие пояса: пояс Laminaria saccharina, занимающий нижний горизонт литорали и сублиторальную кайму (около 0 глубин), пояс L. digitata, развивающийся на глубинах от 0 до 3-5 м (на выходе из губы он идет до глубины 15-20 м) и снова пояс L. saccharina на глубинах от 3-5 до 15-25 м.
В открытых частях губ в условиях интенсивного движения воды формирует мощный пояс L. hyperborea на глубине от 3-5 до 15 м, с биомассой около до 19,2 кг/м2. На нижней литорали и в сублиторали до глубины 3-5 м в открытых частях губы идут заросли Alaria esculenta и L. digitata. Глубже 15 м и в центральных частях губы имеются сильно разреженные заросли L. hyperborea. Во внутренних частях губы в этой зоне сублиторали доминируют L. saccharina и L. digitata.
Основными ассоциациями пояса Laminaria saccharina на литорали в губе являются L. saccharina, L. saccharina + Alaria esculenta и L. saccharina + Devaleraea ramentacea + Palmaria palmata. На открытых участках побережья увеличивается роль видов L. digitata и A. esculenta и на скалах, где сильный прибой, ассоциация L. saccharina замещается ассоциацией A. esculenta + L. digitata, в которой L. saccharina практически отсутствует.
В ассоциации L. saccharina на литорали видовое разнообразие довольно высокое (21 вид), а биомасса - средняя (2,9 кг/м2). Здесь встречаются Devaleraea ramentacea, Acrosiphonia arcta, Palmaria palmata, Pylaiella litoralis; весьма характерны также виды, встречающиеся в небольших количествах - Membranoptera alata, Rhodochorton penicilliforme, Cladophora rupestris, Antithamnion floccossum, Porphyra sp., Polysiphonia urceolata.
Ассоциация Laminaria saccharina+Alaria esculenta характерна для центральной части губы (слабо защищенные от прибоя условия). В составе ее отмечено 16 видов, биомасса водорослей довольно высокая - 5,9 кг/м2. Здесь отмечены Saccorhiza dermatodea, Devaleraea ramentacea, виды Acrosiphonia, Pilayella litoralis, Rhodomela lycopodioides, Chordaria flagelliformis, Palmaria palmata, Polysiphonia urceolata, Ulvaria obscura, Chaetomorpha melagonium и другие. В составе этой ассоциации начинают встречаться водоросли сублиторального комплекса - Odonthalia dentata и Ptilota plumosa. Для этой ассоциации характерны корковые известковые красные водоросли.
Основной ассоциацией пояса Laminaria digitata в губе является асс. L. digitata + L. saccharina+Desmarestia aculeata. На прибойных открытых участках побережья развивается асс. L. digitata + Ptilota plumosa. Состав сопутствующих видов в первой ассоциации в разных частях губы несколько различен. В центральной части губы ближе к устью встречаются, главным образом, Alaria esculenta, Ptilota plumosa, Phycodrys rubens, Odonthalia dentata, Fimbriofolium dichotomum, Callophyllis cristata, Turnerella pennyi, Antithamnion pylaise, корковые известковые водоросли. Биомасса водорослей довольно высокая - 5,7 кг/м2.
На границе между сублиторальными поясами Laminaria digitata и L. saccharina развивается иногда в значительных количествах Alaria esculenta. A. esculenta и L. saccharina формируют ассоциацию переходного типа. Нижний ярус ассоциации образуют Odonthalia dentata, Ptilota plumosa, Phycodrys rubens, Turnerella pennie, Callophyllis cristata, Polysiphonia urceolata, Antithamnion boreale, Pilayella litoralis, встречается Desmarestia viridis. Камни и валуны покрытыизвестковыми красными водорослями.
На глубине 10-20 м заросли водорослей сильно разреженные. Доминирующей в центральной части губы является асс. Laminaria saccharina + Desmarestia aculeata. Ламинариевые - L. saccharina, L. digitata, Alaria esculenta встречаются в виде отдельных мелких растений или проростков. Это весьма разнообразная ассоциация (11-25 видов), но с низкой биомассой водорослей (5-790 г/м2). Нижний ярус формируют Phycodrys rubens, Polysiphonia urceolata, P. arctica, Odonthalia dentata, Phyllophora truncata, Sphacelaria arcta, Antithamnion pylaisei, Ptilota plumosa, Chaetopteris plumosa, Fimbriopholium dichotoma.
В куту губы в сублиторали развивается ассоциация Laminaria saccharina + Desmarestia aculeata+бурые нитчатки (грунт - камни, гравий на заиленном песке). Водоросли L. saccharina и Desmarestia aculeata растут отдельными экземплярами. На песке и мелких камнях между ламинарией и десмарестией растут нитчатые водоросли - Acrosiphonia flagellata, Enteromorpha prolifera, Pilaytlla litoralis, Stictyosiophon tortilis, Ectocarpus sp.,Rhizoclonium riparium. На мягких грунтах, где ламинария и десмарестия отсутствуют, нитчатки формируют самостоятельную ассоциацию, которая приурочена к биоценозу Macoma baltica + Mytilus edulis. Это разнообразная по видовому составу ассоциация (24 вида), но с очень низкой биомассой водорослей (28 г/м2). Кроме вышеперечисленных видов в ней встречаются также Chorda filum, Polyides caprinus, Monostroma grevillei, Eudesme virescens и другие.
Глубже пояса ламинариевых в устье губы и на открытых участках побережья на глубинах 15-32 м развивается пояс красных водорослей, в котором выделено две ассоциации - асс. корковых известковых водорослей и асс. Phycodrys rubens + Ptilota plumosa. Это довольно разнообразные ассоциации по видовому составу (11-15 видов) с небольшой биомассой водорослей (342-230 г/м2). Они близки по видовому составу. В них встречаются, главным образом, Phycodrys rubens, Ptilota plumosa, Fimbriopholium dichotoma, Turnerella pennie, Antithamnion pylaise, Polysiphonia urceolata, Callophyllis cristata, Derbesia marina; отмечены проростки Laminaria saccharina, Desmarestia aculeata.
Биологическая характеристика Минтая
Минтай (Theragra chalcogramma) - пpидонная пелагическая холодолюбивая рыба сeмейства тресковых, рода минтаев (theragra). Наиболее распространённая тресковая рыба в сeверной части Тихого океана. Является одной из главных промысловых рыб России.
Минтай - Theragra halcogramma (Pallas) относится к семейству тресковых (Gadidaе) отличительным признаком которого является наличие у рыбы трех спинных плавников, усика на подбородке, брюшные плавники располагаются перед грудными. Тело у минтая продолговатой формы, боковая линия с резким изгибом, окраска пятнистая, глаза большие Обитает в водах северной части Тихого океана. По азиатскому побережью распространен в Японском, Охотском и Беринговом морях. Южная граница ареала проходит по широте Вонсана (п-ов Корея) и провинции Ямагути на юго-западном Хонсю. В океанских водах распространяется до Сангарского пролива, южнее встречается редко. По американскому побережью, помимо Берингова моря имеются скопления в заливе Аляска, на юг доходит до залива Монтерей. Является самым многочисленным видом северной части Тихого океана.
Минтай - пелагическая, холодолюбивая рыба. Размножается в холодное время года. Икра пелагическая, нерест порционный. Достигает длины 93 см, массы 5 кг. Такие экземпляры изредка встречаются в юго-западной части Охотского моря. В восточной части Берингова соря предельные размеры и масса несколько меньше: 82 см и 4,8 кг. В водах западной Камчатки - 84 см и 4,1 кг; на северо-востоке Японского моря - 72 см и 2,5 кг. Наиболее мелкий минтай обитает в Корейском заливе, где его предельная длина не превышает 70см.
Уловы особей минимальных и преобладающих размеров зависят от сезонности лова, состояния запасов и урожайности поколений. Там, где промысел ведется в период размножения на преднерестовых и нерестовых скоплениях или на больших глубинах минтай крупнее, поскольку преобладают половозрелые рыбы. В районах совмещения нагульного и нерестового ареала минимальные размеры минтая определяются размерами ячеи, применяемых в промысле тралов (селективность лова). При вступлении в состав промыслового стада урожайных поколений, а также при перелове средние размеры минтая в улове уменьшаются.
Между массой минтая и линейными размерами существует высокая положительная корреляция. Нарастание массы с увеличением длины наиболее быстро происходит у минтая восточной части Берингова моря и наиболее медленно у особей юго-восточной Камчатки.
Предельный возраст 16 лет, однако рыбы старше 8-летнего возраста встречаются редко. Характерно преобладание в стадах двух-трех возрастных групп. Это обычно 4-6 годовики, реже 2-4 и 5-7 годовики, в зависимости от урожайности поколений и промысловой смертности. Естественная годовая смертность разных стад колеблется от 28 (север Татарского пролива) до 39% (западная Камчатка). У восточно-беринговоморского минтая смертность колеблется от 32 до 40%. Поколение достигает максимальной биомассы в 3-5 годовалом возрасте. Обычно максимальная биомасса совпадает с возрастом массового полового созревания.
Половой зрелости минтай достигает в возрасте 3-4 года, при длине