Биологические особенности скота
5. Этологические особенности крупного рогатого скота
Предки крупного рогатого скота перед одомашниванием обитали в местах с обширными степными и лесными травостоями; часто меняли место своего пребывания и объединялись в малые стада (до 20-30 голов).
Стадо состояло большей частью из коров, нетелей и телят и включало несколько быков. Возникали и малые стада, состоящие из одних быков, которые в период гона объединялись со стадом коров.
Несомненно, что живущие в стаде животные влияют друг на друга, и этот социальный инстинкт основан на взаимном привлечении особей одного вида, которое может проявляться в целом ряде поведенческих реакций.
У животных, ведущих стадный образ жизни, существует иерархический порядок, который определяет социальную роль каждой особи, обеспечивает общий порядок и гармонию и тем самым делает возможным сосуществование животных в группе.
В коровниках для беспривязного содержания также существует много предпосылок к взаимным конфликтам между животными. Большая плотность размещения животных служит причиной того, что, проходя к логову, на выгул или к кормушке, они помногу раз в день встречаются друг с другом. При этом животные вынуждены уступать друг другу дорогу или место для лежания, причём каждая особь должна вести себя в соответствии со своим положением в стаде.
Животные высшего социального ранга пользуются определёнными привилегиями в стаде. Они могут, не обращая внимания на остальных, поедать предпочитаемый ими корм, улечься, где им заблагорассудится, или идти к поилке, когда им захочется.
При ежедневных контактах животные должны определённым способом общаться друг с другом и соответственно регулировать своё поведение. Средства выражения эмоций у скота делятся на следующие категории.
Обонятельные сигналы. Животные обнюхивают друг друга, реже нюхают кал и мочу. Обнюхивают также место, которое выбирают для лежания; будучи вытесненной оттуда, особь возвращается обратно.
Звуковые сигналы. Крупный рогатый скот реагирует мычанием на приближении животных из другого стада, на угрожающую опасность, выражает мычанием чувство одиночества и дискомфорта. И корова, и теленок мычат, разыскивая друг друга. Мычание типично для коров в охоте, им же сопровождается игра.
Зрительные сигналы. Главное значение имеют двигательные реакции, в частности постановка головы, так как здесь располагаются главные органы восприятия и главное оружие – рога.
Двигательные социальные реакции.
Угроза. В наивысшей степени своего проявления это неотступное преследование противника, настигнув которого, преследователь пускает в ход рога. Низшая степень проявления состоит в том, что животное разбегается и, нагнув голову, устремляется на противника, но через несколько шагом останавливается. При еще более слабом проявлении вражды животное лишь мотает головой в сторону противника.
Уход от взаимодействия. Уклонение от стычки с животным, стоящим на более высокой ступени социальной иерархии, всегда служит доказательством подчинения. Если особь высшего ранга избегает другую, бывшую до сих пор рангом ниже, это служит признаком нового изменения в социальной структуре.
Драки. В малых стадах драки единичны. Чем больше в стаде одновозрастных животных, тем чаще драки и тем реже фаза стабильного социального равновесия. Во время драки оба соперника стремятся занять удобную для атаки позицию.
Поведение коров во время приема корма. Более 50% всех конфликтов между коровами приходится на время кормления. При самокормлении коровы чаще всего имеют свободный доступ к сену и силосу. Выбор корма зависит прежде всего от его качества. Животные стремятся добраться до свежего силоса и выбрать лучшие его порции. Поэтому более сильные коровы сразу обеспечивают себе место у кормушки. Остальные же или укладываются на логове, или идут вначале к яслям с сеном. Обеспечить всем коровам возможность принимать корм одновременно очень важно, потому что в момент кормления наиболее четко обозначается социальная структура стада, особенно при недостатке корма или при малом фронте кормления.(Н.М. Костомахин, 2007г.).
Горбачёв Н.Н. и Крисанов А.Ф. (2001г.) изучали пищевое поведение коров красно-пестрой породы.
Для научно-хозяйственного опыта подобрали по принципу аналогов, коров в начале сухостойного периода. Продолжительность сухостойного периода составила 60 дней, а периода раздоя - 100 дней после отела. В период раздоя коровы красно-пёстрой породы больше затрачивают времени на приём корма, но меньше на его пережевывание, а во время сухостоя, наоборот – меньше на поедание, но больше на жвачку. А в итоге продолжительность времени на весь период приёма и пережёвывания корма между сухостойными и дойными коровами нивелируется и составляет 18,2 и 18,1 часа.
Остальное время суток животные отдыхали. Время на отдых, как и на другие жизненные проявления животного, обусловлены многими элементами внешней среды, а также физиологическим состоянием организма.
Общая продолжительность отдыха у коров красно-пестрой породы составила 338-348 мин, или 5,6-5,8 часа, причем сухостойные коровы предпочитали отдыхать стоя, а при раздое - лежа. Из этого времени непосредственно на сон приходилось 1,8-2,0 часа. 65% времени отдыха коров пришлось на ночное время.
Улимбашев М.Б. (2005г.) проводил исследования этологических особенностей швицкого и голштинизированного скота при стойловом и пастбищном содержании. Для этого сформировали три группы первотелок, по 13-15 голов в каждой. В 1 группу вошли чистопородные первотелки швицкой породы, во 11 - животные генотипа 3/4Г+1/4Ш «в себе» и в 111 - 6/ 8Г+1/8ЧП+1/8Ш,
Результаты исследований показали, что независимо от места содержания голштинизированные первотелки затрачивали на прием корма больше времени, чем животные швицкой породы. При этом различия по этому показателю между швицами и помесями от разведения «в себе» оказались недостоверными, а между первыми и трехпородными помесями на уровне Р>0,99-0,999,
В стойловый период содержания чаще к кормушкам подходили голштинизированные животные, но оставались около них не дольше чистопородных особей. Отличительная способность жвачных животных - повторное пережевывание корма, В отличие от продолжительности поедания кормов времени на их пережевывание помеси затрачивали меньше, чем швицы.
5.1 Половая этология животных
Половое поведение - это врожденное качество, приобретенное животными в процессе эволюции для обеспечения процесса полового размножения, чем поддерживается возможность существования многих видов животных. Группа однополых животных размножаться не может, поэтому половую этологию можно изучать только при контакте разнополых животных. В связи с этим следует еще раз подчеркнуть, что охота - это половое поведение, характеризующееся допусканием самкой садки самца.
Серьёзные трудности в условиях группового содержания вызывает период охоты у коров., приводящий к смятению и беспокойству во всей группе. Животное беспокойно, часто прерывает приём корма, осматривается и не ложится сразу же после кормления. Коровы в охоте игнорируют социальную иерархию и отваживаются приблизится к коровам высшего ранга. (А. Ф. Кузнецов, И.Д. Алемайкин, Г. М. Андреев, 2007г.).
Для получения высокой оплодотворяемости важно осеменять самок во время охоты. Ориентация на выявление охоты с использованием пробника повышает процент оnлодотворяемости по сравнению с выбором времени осеменения по признакам полового возбуждения (общей реакции).
После плодотворного осеменения самки ее поведение и отношение к самцу меняются в связи с наступлением беременности. Если самка после оплодотворения в течение месяца не приходит в охоту, то ее можно почти наверняка считать беременной. Этот этологический способ диагностики беременности и бесплодия у самок полициклических животных получил название рефлексологического.
Известно, что самец является самым древним и самым сильным стимулятором половой функции самок. У коров выявлено усиление сокращений матки при общении с самцом пробником, что обеспечивает
быстрое продвижение спермиев по половым органам самок и способствует повышению оплодотворяемости.
Стимулирующее действие самцы могут оказывать через обонятельные, зрительные и слуховые воздействия на самок. (М.Г. Зухрабов, Д.И. Ошкин, О.Н. Преображенский, 2002г.).
6. Эффективные технологии кормления лактирующих коров
Увеличение роста производства молока и реализация генетического потенциала молочной продуктивности коров на 70-80% зависят от условий кормления и содержания. Всё это вынуждает совершенствовать существующие и разрабатывать новые системы кормления лактирующих коров.
Сено является одним из важнейших видов кормов. В 1 кг сена I класса содержится 0,45-0,60 к. ед., 65-75 г переваримого протеина, 40-60 мг каротина. Оно также богато витаминами комплекса В, группы D, Е, К и минеральными элементами. За счет первоклассного сена можно удовлетворить потребности животных в кормовых единицах на 40 %, в перевариваемом протеине на 35-45 %, около половины в минеральных элементах и большей частью в каротине.
Сенаж - один из самых распространенных способов заготовки и получения корма высокого качества. Сенаж характеризуется низкой кислотностью (рН 4,7-5,5), большим содержанием сухих и питательных веществ, чем силос.
Концентрированные корма являются самыми энергонасыщенными, и к ним относятся зерна злаковых, семена бобовых и масличных культур, продукты их переработки, кукурузный глютен, картофельную и свекольную пульпу и др.
По современным детализированным нормам контроль над полноценностью и сбалансированностью рационов в кормлении молочного скота осуществляют по 24 показателям знергетического, протеинового, углеводного, жирового, минерального и витаминного питания. (В.Д.-Х. Ли, 2003г.).
Улитько В., Горбунов Н., Воронов В. (1998г.) в своих исследованиях, предложили включение в рацион коров ячменно-горохового сенажа и уменьшение доли зерновых кормов.
Замена рациона силосно-концентратного типа (контрольная группа) на сенажно-силосный (опытная) обеспечила повышение молочной продуктивности в среднем на корову за 234 дня опыта с 2711,2кг до 2953,4кг, или на 242,2кг (базисной жирности). Содержание жира в молоке было больше у подопытных коров на 0,2% и составило 3.58% в контроле. Коровы опытной группы реализовали стандарт породы по жирномолочности на 99,48%, а их аналоги из контрольной на 94,02%. За время опыта от подопытных коров получено молочного жира на 8,49 кг больше.
Сенажно-силосный тип кормления обеспечивает повышение молочной продуктивности, снижает затраты кормов и себестоимость молока, повышает его рентабельность и не оказывает отрицательного влияния на состояние здоровья животных.
Горбуновым В. и Горбуновым С.(2007г.) также проведён научно-хозяйственный опыт, с целью изучения продуктивного действия силоса из зеленой массы кукурузы в смеси с донником в соотношении 2: 1 в рационах лактирующих коров.
Наибольший суточный удой молока, в том числе и 4% жирности, получен от коров опытной группы (соответственно 19,7 и 18,2кг), что на 11,9 и 13,7% выше, чем в контроле. Подопытные животные лучше переваривали сухое и органическое вещества (на 1,88 и 1,46% соответственно), протеин (на 6,8%), жир (на 2,25), клетчатку (на 2,46), БЭВ (на 1,69%).
Включение в рацион коров силоса из зеленой массы кукурузы в смеси с донником увеличивает молочную продуктивность, улучшает переваримость питательных веществ.
Ли В.Д.-Х.(2003г.) предлагает в кормлении коров применять оптимальный интервал между раздачами концентратов.
Суть данного способа сводится к условному разделению лактации на три периода, по 100 дней каждый, со скармливанием в первый период 45-60%, во второй - 25-35% и в третий - 15-25% годовой нормы концентратов.
Применяли двух с половиной-, трех- и четырехчасовые интервалы при шестиразовой раздаче.
Анализ рационов показал, что при трехчасовом интервале между раздачами концентратов потребление сухого вещества кормов рациона было на 0,5 и 0,4кг, а энергетическая питательность рациона на 6,5 и 6,0 МДж выше, чем при двух с половиной- и четырех - часовых интервалах.
В структуре рационов доля концентрированных кормов составила: в I группе - 52,1; во II - 53,2 и в III - 52,7% по питательности, что обусловлено высокими среднесуточными надоями молока, составлявшими 31,2-32,5кг, и тем, что опыт проводили в первую треть лактации.
Среднесуточный надой натурального молока при интервалах в три и четыре часа был на 1,3 и 0,9кг выше, чем при интервале в два с половиной часа, при почти одинаковом содержании жира и белка в молоке. Различия в среднесуточных надоях молока в пересчете на 4%-ную жирность составили 0,9 и 0,6кг. Расход концентратов и затраты кормов на единицу продукции у особей сравниваемых групп были близкими. Таким образом,
При шестиразовой раздаче концентрированных кормов в сутки наиболее целесообразно раздачу проводить через три часа. Это повышает молочную продуктивность коров.
Заключение
Биологические особенности крупного рогатого скота, являются очень важным фактором, при ведении этой отрасли животноводства.
Для интенсификации отрасли, необходимо уметь правильно организовать воспроизводство стада, что невозможно без знаний об особенностях размножения скота.
Знания о пищеварения крупного рогатого скота, помогут предотвратить заболевания пищеварительного тракта. Понять какие корма нужно скармливать для здоровья, а соответственно для высокой продуктивности коров, что важно для успешного ведения отрасли.
Немаловажную роль нужно уделять акклиматизационным качествам скота, так как они также влияют на продуктивность скота, здоровье и воспроизводительную способность. И если скот будет находится в неподходящих условиях для его жизнедеятельности, то он не окупит себя.
7. Расчётное задание
1. Определение численности племядра:
Условия :брак старых коров 15%;
брак первотелок 40%;
брак телок в процесс е роста 12%;
деловой выход телят 88%
рост стада 2%
Расчет размеров племядра проводится по формуле
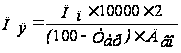 ,
где
Пя – размер племядра, %;
Пп – количество первотелок, ставящихся на проверку, в % к числу коров на начало года;
Тбр – брак в %, полученных от коров племядра;
Дво – деловой выход телят от коров племядра, %
Количество первотелок, ставящихся на проверку (Пп) определяется по формуле:
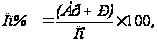
Бр – браковка коров 2-х отелов и старше, %
Р – рост стада коров, %
По – процент первотелок оставшихся в стаде после браковки.
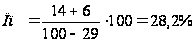
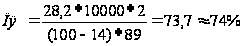
Размер племенного ядра составляет 74%.
2. Биометрическая обработка:
Берем за Х удой коров, а за У - процент жирности молока.
Хср = А + Ь· К,
где А - произвольная условная средняя;
b - поправка к условной средней;
К - классовый промежуток.
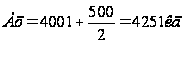
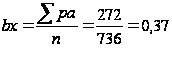
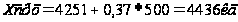
.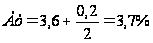
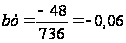
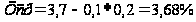
Для вычисления среднего квадратичного отклонения используем формулу:
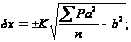
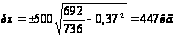
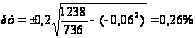
Коэффициент вариации вычисляется по формуле:
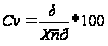
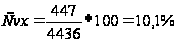
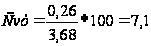
Расчёт статистических ошибок:

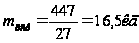 ;
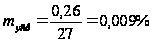

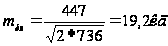 ;
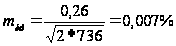

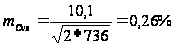 ;
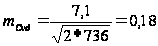
Расчёт коэффициента корреляции проводим по формуле :
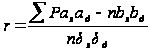 ;
Для расчёта
корреляции
 рассчитывается
относительная,
по несколько
упрощенной
формуле:
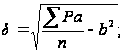
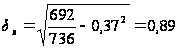
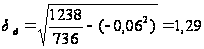
Корреляционная решетка для вычисления коэффициента корреляции между показателями удоя (хi) и жирномолочности (уi) представлена в таблице 1. При составлении корреляционной решетки классы в верхней строке располагаются слева направо в возрастающем порядке, а в первом столбце сверху вниз в убывающем порядке.
Условные средние классы разделяют корреляционную решетку на четыре квадрата. Для каждого из этих квадратов находится значение ∑Paxaу.
|
Классы У х |
До 3,2 | 3,20- 3,39 | 3,40-3,59 | 3,60-3,79 | 3,80-3,99 | 4,00-4,19 | 4,20-4,39 | 4,40-4,59 | 4,60-4,79 | 4,80-4,99 | >5,00 | Pу | Aу | Px*aу | Px*aу |
| До 1500 | |||||||||||||||
| 1501-2000 | |||||||||||||||
| 2001-2500 | |||||||||||||||
| 2501-3000 | |||||||||||||||
| 3001-3500 | 4 | 21 | 50 | 22 | 2 | 99 | -2 | -198 | 396 | ||||||
| 3501-4000 | 10 | 63 | 105 | 21 | 199 | -1 | -199 | 199 | |||||||
| 4001-4500 | 1 | 14 | 104 | 77 | 11 | 2 | 209 | 0 | 0 | 0 | |||||
| 4501-5000 | 2 | 33 | 72 | 23 | 1 | 1 | 1 | 133 | 1 | 133 | 133 | ||||
| 5001-5500 | 3 | 30 | 34 | 7 | 1 | 75 | 2 | 150 | 300 | ||||||
| 5501-6000 | 4 | 7 | 6 | 1 | 18 | 3 | 54 | 162 | |||||||
| 6001-6500 | 1 | 2 | 3 | 4 | 12 | 48 | |||||||||
| 6501-7000 | -48 | 1238 | |||||||||||||
| 7001 и выше | |||||||||||||||
| Px | 11 | 100 | 300 | 263 | 56 | 5 | 1 | ||||||||
| ax | -2 | -1 | 0 | 1 | 2 | 3 | 4 | ||||||||
| Pa*x | -22 | -100 | 0 | 263 | 112 | 15 | 4 | 272 | |||||||
| Pa*x | 44 | 100 | 0 | 263 | 224 | 45 | 16 | 692 |
1 квадрат.2квадрат
4*(-1)*(-2) = 850*1*(-2)=-100
10*(-1)*(-1) = 10 105*1*(-1)= -105
∑ = 18 22*2*(-2)=-88
21*2*(-1)=-42
2*3*(-2)=-8
3квадрат ∑=-343
2*(-2)*1=-4
3*(-2)*2=-124квадрат
4*(-2)*3=-24 23*1*1=23
1*(-2)*4=-87*2*1=14
33*(-1)*1=-33 1*3*1=3
30*(-1)*2=-601*1*2=2
7*(-1)*3=-211*2*2=4
2*(-1)*4=-81*3*1=3
∑=-1701*4*1=4
∑=53
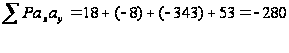
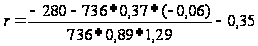
Корреляция между удоем и жирномолочностью отрицательная.
3. Определение показателей племядра
Расчёт селекционной границы ведётся по формуле:
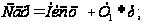
 -
коэффициент,
зависящий от
размеров племядра.
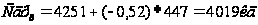
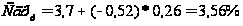
Средние показатели по племядру рассчитываются по формуле:
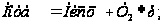
где
 - коэффициент,
зависящий от
размеров племядра.
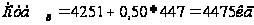
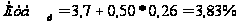
Расчёт эффекта селекции представлен в таблице 2.
Таблица 2
Расчёт коэффициента по удою и жирномолочности
| Показатели | Величины показателей по | |
| Удою,кг | Жирномолочности% | |
| Интенсивность отбора коров в племядро, % | 74 | 74 |
| Возможные показатели продуктивности по племядру, кг и % | 4475 | 3,83 |
| Селекц. деференциал d=Мотб-Мисх | 224 | 0,13 |
| Время смены поколения t=100/Бр | 7 | 7 |
|
Эффект
селекции за
счёт отбора
племядра за
смену поколения
|
61,8 9 |
0,065 0,009 |
|
Эффект
селекции за
счёт браковки
первотёлок
за смену поколения
|
224 32 |
0,13 0,02 |
|
Общий
эффект селекции,
Робщ за смену
поколения
За
год
|
61,8+224=285,8 41 |
0,065+0,13=0,195 0,03 |
 ;За
год

 ;
за год

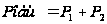
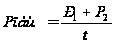
Удой по стаду через смену поколения только при отборе коров в племядро :
М = Мисх+Р1 = 4251+61,8= 4312,8кг
Удой по стаду через смену поколения при отборе коров в племядрои при браковке первотёлок:
М= Мисх+ Р1+Р2 = 4251+61,8+224 = 4536,8кг
Вывод : по данным расчётов видно, что при высоком уровне браковке (40%), эффект селекции становится выше, удои повышаются, жирномолочность также увеличивается.
Список литературы
1. Анисимова Е. Биологические особенности и адаптационные качества симментальского скота // Молочное и мясное скотоводство. – 2010. - № 2. – С.14 -16.
2. Алифанов В. Выращивание айрширских первотёлок // Животноводство России. – 2009.- №1. – С.45-46.
3. Батанов С.Д. Молочная продуктивность первотёлок разной стрессоустойчивости / С.Д. Батанов, О.С. Старостина // Зоотехния. -2005. - №2. – С.18-19.
4. Володин В.А. Воспроизводительные качества коров разных типов ВНД / В.А. Володин, Е.В. Киселёва // Зоотехния. – 2004. - №1. – С. 29.
5. Волынкина М. Генетический потенциал и молочная продуктивность коров импортной селекции // Главный зоотехник. – 2008. - №7. – С.32-34.
6. Горбачёва Н.Н. Пищевое поведение коров красно-пестрой породы / Н.Н. Горбачёва, А.Ф. Крисанов // Зоотехния. – 2001. - №3. – С.24-26.
7. Горбунов В. Силос из смеси кукурузы с донником / В.Горбунов, С. Горбунов // Главный зоотехник. – 2007. - №5. – С.28-29.
8. Скотоводство т. 2 / Под ред. Е.П. Григорьева. – М.: Сельхозгиз, 1960. – 317с.
9. Ельчанинов В.В. Сезонные колебания сроков овуляции у телок и буйволиц / В.В. Ельчанинов, А.М. Чомаев, А.А. Гольдина, Т. Тарадайник // Зоотехния. – 2003. - №8. – С.29-30.
10. Зухрабов М.Г. Половая этология животных / М.Г. Зухрабов, Д.И. Ошкин, О.Н. Преображенский // Зоотехния. – 2002. - №4. – С.26-29.
11. Козлова А.А. Особенности липидного и углеводного обмена у телок // Зоотехния. – 2003. - №8. – С.19-20.
12. Крисанов А.Ф. Пищевое поведение и переваримость кормов коровами разных генотипов / А.Ф Крисанов, Н.Н. Горбачёва, Н.М. Игушкин // Зоотехния. – 1999. - №10. – С.13-15.
13. Костомахин Н.М. Скотоводство. –СПб.: Лань, 2007. – 432с.
14. Кузнецов А.Ф. Крупный рогатый скот / А.Ф. Кузнецов, И.Д. Алемайкин, Г.М. Андреев, М.М. Белова, Г.М. Громов, Ю.Ю. Данко // Крупный рогатый скот. - СПб.: Лань, 2007. – 624с.
15. Ли В. Д.-Х. Кормление высокопродуктивных коров // Наше племенное дело. – 2003. - №1. – С.12-14.
16. Лось Н.Ф. Изменчивость продуктивных качеств при различных типах подбора // Зоотехния. – 2000. - №9. – С.2-5.
17. Маркин Ю.В. Развитие исследований по физиологии пищеварения // Зоотехния. – 1999. - №8. – С.19-20.
18. Родина Н.Д. Воспроизводительная способность чистопородных черно-пестрых и голштинизированных коров // Зоотехния. – 2005. - №4. – С.27-28.
19. Смирнов Д.А. Производство говядины на основе интеграции молочного и мясного скотоводства / Д.А. Смирнов, Л.Н. Бугрим // Зоотехния. – 2001. - №3. – С.26-27.
20. Смирнов Д.А. Лимузины в ХХI веке // Зоотехния. – 2004. - №11. – С.29-32.
21. Тараканов Б.В. О типах брожения в рубце жвачных // Зоотехния. – 2001. - №6. – С.8-9.
22. Ткаченко Т. О приспособлении животных к условиям окружающей среды // Молочное и мясное скотоводство. – 2003. - №3. – С.36-37.
23. Улимбашев М.Б. Особенности поведения первотёлок разного генотипа // Зоотехния. – 2005. - №1. – С.24-26.
24. Улитько В. Сенаж в рационах дойных коров / В. Улитько, Н. Горбунов, В. Воронов // Молочное и мясное скотоводство. – 1998. - №4. – С.18-20.
25. Файзрахманов Д.И. Организация молочного скотоводства на основе технологических инноваций / Д.И. Файзрахманов, М.Г. Нуртдинов, А.Н. Хайруллин, Н.Н. Хазипов, М.П. Афанасьев // Организация молочного скотоводства на основе технологических инновации. – Казань: Изд-во Казанск., 2007. – 352с.
26. Шибаева Е.П. Мясная продуктивность бычков с различной кровностью по герефордской породе / Е.П. Шибаева, С.Г. Тимаков // Зоотехния. – 2006. - №9. – С.22-23.
27. Шилов А. Мясная продуктивность симментальского скота разных генотипов // Главный зоотехник. – 2008. - №1. – С. 39-41.
28. Яхонтов А.А. Зоология для учителя: Хордовые. – 2-е изд., перераб. и доп.- М.: Просвещение, 1985.