Ненецкая аборигенная порода северных оленей
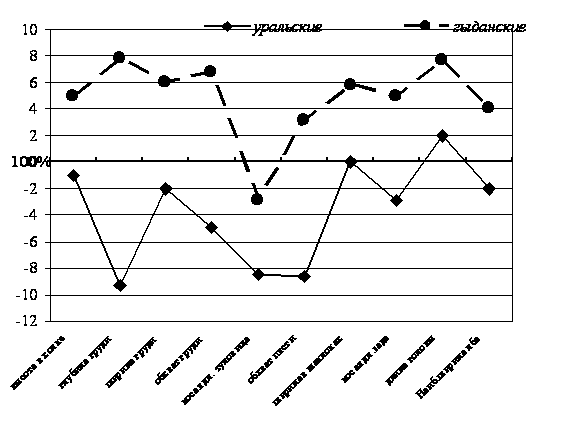
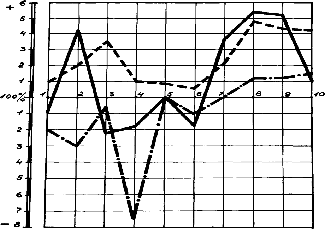
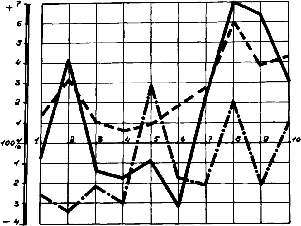
Рис.2. Экстерьерный профиль взрослых самцов оленей ЯНАО (100%-ямальские олени).
Фенотипические и генотипические особенности. Жесткий естественный отбор, постоянство и однотипность среды обитания домашних северных оленей не способствуют возникновению и поддержанию генотипического разнообразия в популяциях, что не дает достаточного материала для искусственного отбора. При этом, сильное влияние среды и присутствие большого числа случайных факторов нарушают оптимальный баланс "генотип среда", препятствуют реализации полигенных количественных признаков и расширяют модификационную изменчивость. Выход из сложившегося "селекционного тупика" видится в переходе от концепции классической генетики, считавшей вид генетически константным, к принципам популяционной генетики. В основе последней лежит концепция об адаптивной балансовой норме популяции, постулирующей, что за внешне нормальными "средними" фенотипами стоит множество генотипов, селекционная ценность которых может меняться в зависимости от условий среды (Алтухов, 1989). В таком случав первоочередной задачей практической селекции становится поиск показателей достаточно адекватно отражающих движение генов между поколениями внутри той или иной популяции (породы, стада). Особенно важным представляется вычисление коэффициента наследуемости (h2), который позволяет с известной степенью достоверности прогнозировать эффективность селекционного процесса и гетерозиса, определять долю случайных факторов в общей изменчивости признака. Важную информационную ценность имеет также повторяемость признаков, исчисляемая как коэффициент наследуемости между одним и тем же показателем особи полученным в смежные возрасты (Н.А. Плохинский, 1969)
Нами был проведен анализ эффективности отбора по живой массе путем определения её повторяемости и наследуемости у оленей ненецкой породы в племенном стаде № 16 совхоза "Ярсалинский" Ямало-Ненецкого автономного округа. Были использованы как собственные данные, так и бонитировочные ведомости за 1978-1982 гг.
Относительно ровный и невысокий показатель коэффициента вариации (табл.3) свидетельствует об однообразии поголовья в обследованных половозрастных группах. Между живой массой самцов и самок разница статистически достоверна, половой диморфизм с возрастом увеличивается. Коэффициент корреляции между живой массой матерей и живой массой потомства в 6-месячном возрасте невысок, но статистически достоверен (P<0,05). Достаточно убедительно и достоверно (P<0,01) связаны между собой живая масса в 6-месячном и живая масса в 1,5-летнем возрасте. Более слабый показатель повторяемости у самцов связан, вероятно, с их участием в гоне, повлиявшим на живую массу. Между живой массой в 1,5- и 2,5-летнем возрасте коэффициент корреляции сохраняется на среднем уровне, но он статистически недостоверен. У самок данные показатель между живой массой в 6-месячным и 2,5-летнем возрасте положителен, средней величины, статистически недостоверен. Отрицательная корреляционная связь получена между живой массой матерей в 6 месячном возрасте и живой массой дочерей в том же возрасте, но поскольку напряженность её незнaчительна и недостоверна, нулевая гипотеза сохраняется.
Все приведенные пары признаков у исследованных оленей были оценены с помощью однофакторного дисперсионного анализа, при котором один показатель брался как исследуемый, а другой - как организованный фактор. При этом были вычислены
достоверность вывода о влиянии данного фактора на результативный признак F;
- сила влияния данного фактора на исследуемый признак ηx2;
- ошибка оценки силы влияния фактора на результативный признак mηx2;
- достоверность силы влияния фактора на результативный признак Fφ.
Исходя из известного соотношения генотипической Сх и фенотипической Су дисперсии (квадрат Пирсона), сила влияния фактора, полученная в наших расчетах (ηx2= Сх/Су = h2), не что иное, как показатель наследуемости в оценке связи типа "мать потомство".
Коэффициент наследуемости живой массы матерей телятами в 6-месячном возрасте, когда проводится первая бонитировка и выбраковка оленей, довольно низок: у самцов 6,0 %, у самок 3,5 % (табл. 4). Недостоверность полученного показателя на относительно многочисленном числе потомков дает основание считать родительское поголовье однородным по передаваемой генетической информации, что не способствует эффективности отбора по живой массе взрослых животных в исследуемом стаде. Гораздо эффективнее будет отбор по живой массе в 6-месячном возрасте: коэффициент повторяемости данного показателя в 1,5-летнем возрасте у самцов составил 23,1 %, у самок 40,0 % при достоверности P<0,01. Достаточно высокое значение данного коэффициента сохраняется и в возрасте 2,5 года: у самцов 65,8 %, у самок 27,0 %.
Таблица 3 - Основные показатели наследуемости и повторяемости живой массы у северных оленей ненецкой породы
| Пол |
Исследуемый признак |
Организованный фактор |
F | η2х | m η2х | Fφ |
Fст. 0,95-0,99 |
Самцы |
Живая масса в 6 мес. | Живая масса матерей | 1,890 | 0,060 | 0,071 | 0,837 | 2,60-3,78 |
| Живая масса в 1,5 года | Живая масса в 6 мес. | 8,120 | 0,231 | 0,039 | 6,820 | 2,60-3,78 | |
| Живая масса в 2,5 года | Живая масса в 1,5 года | 5,495 | 0,658 | 0,256 | 2,659 | 4,35-8,45 |
Самки |
Живая масса в 6 мес. | Живая масса матерей | 1,685 | 0,035 | 0,052 | 0,650 | 2,60-3,78 |
| Живая масса в 1,5 года | Живая масса в 6 мес. | 6,774 | 0,400 | 0,078 | 5,108 | 2,99-4,68 | |
| Живая масса в 2,5 года | Живая масса в 1,5 года | 2,232 | 0,270 | 0,313 | 0,862 | 3,71-6,55 | |
| Живая масса дочерей в 6 мес. | Живая масса матерей в 6 мес. | 1,797 | 0,150 | 0,243 | 0,620 | 3,86-6,99 | |
| Живая масса в 2,5 года | Живая масса в 6 мес. | 1,843 | 0,240 | 0,456 | 0,527 | 4,07-7,59 |
Недостоверность генотипической и фенотипической варианс в последнем случае объясняется лишь малочисленностью выборки. Между живой массой самок в 6 месяцев и 2,5 года повторяемость средняя составила 24,0%. Еще меньше коэффициент наследуемости живой массы у дочерей в 6-месячном возрасте этого показателя матерей в том же возрасте 15,0%. Генотипическая и фенотипическая вариансы недостоверны в связи с малочисленностью выборки, но учитывая, что влияние паратипического фактора для исследованных животных было практически одинаковым, следует признать отбор оленей по фенотипу в молодом возрасте достаточно надежно отражающим генотип этих животных.
Для генетической характеристики животных особенно ценными является исследования сыворотки крови. Действительно, у северного оленя одним из наиболее вариабельных белков является сывороточный трансферрин, который у вида (в пределах России) представлен 13 генетическими вариантами (П.Н. Шубин, Э.А. Ефимцева, 1988). Генетическая самостоятельность дикой и домашней форм у северных оленей подтверждается биохимическими исследованиями белков крови по локусу трансферрина П.Н. (Шубин, 1969; Н.М. Журкевич, И.И. Фомичева. 1975; Э.К. Бороздин, А.А. Мухачев, Л.Ф. Савадерова, 1989; А.Ф. Давыдов, 1997; Mason, 1984; Roed, 1985). У оленей ненецкой породы обнаружено 10 генетических вариантов, причем ТfВ электрофорезом полиакриламидном геле подразделен на два варианта ТfВ1 и ТfВ2 (табл. 4). При идентификации генетических вариантов трансферрина принимали, что все двухзоновые электроформы представляют собой элементарные Tf - фенотипы, отражающие продукты отдельных аллей, находящихся в гомозиготном состоянии. В сыворотке крови гетерозиготных животных присутствуют продукты двух аллей, которые дают на электрофореграмме при кодоминантном наследовании белков три или четыре зоны. У всех географических групп оленей ненецкой породы наибольшую чистоту имеют три аллеля: ТfА, ТfВ1, ТfD2. Частота остальных семи оллелей, каждого в отдельности не превышает 0,1. Второй полиморфный белок сыворотки крови - постальбумин контролируется у вида тремя аллелями a, b, c одного локуса GC. Продукт каждого аллеля выявляется на геле после электрофореза в виде двух белковых зон; сыворотка крови гетерозиготных по GC - локусу особей дает трех - или четырехзоновый фенотип. У оленей ненецкой породы превалирует по частоте аллель GCa, контролирующий синтез элеткрофоретически наиболее подвижного варианта постальбумина.
Для числового выражения степени генетических различий используют два показателя: генетическое сходство (I) и генетическое расстояние (D). Оба показателя рассчитывают по данным популяционных генных частот, но чтобы с приемлимой точностью оценить генетическую дифференцию двух популяций по показателю D, необходимо сравнивать их по генным частотам, полученным не менее чем для трех полиаллельных локусов. В исследованиях, проведенных среди экотипов ненецкой породы оленей, показатель I составил по основному массиву 0,8996 0,9759, что по расчетам Ф.Х. Айалы (1984) соответствует уровню локальных популяций у диких животных. По зоологической классификации порода приравнивается к подвиду, а для него минимальный показатель I составляет 0,793. Следовательно, генетический анализ подтверждает основные результаты морфологических исследований оленей и обоснованность выделения их в отдельную породу. Для популяции внутри породы показатель I должен быть не менее 0,944. В наших исследованиях экотипов ненецкой породы он составил 0,938. Второй полиморфный белок сыворотки крови постальбумин контролируется у вида тремя аллелями a, b, c одного локуса GC. Продукт каждого аллеля выявляется на геле после электрофореза в виде двух белковых зон; сыворотка крови гетерозиготных по GC-локусу особей дает трех или четырехзоновый фенотип. У оленей ненецкой породы превалирует по частоте аллель GCa, контролирующий синтез электрофоретически наиболее подвижного варианта постальбумина.
Частоты генов - важнейшие параметры породы, характеризующие ее генофонд. Общность генофонда у различных географических групп оленей, объединенных в ненецкую породу, подтверждается сходством у них аллельных частот. Ядро породы образуют олени, разводимые в Ямало-Ненецком и Ненецком АО. Олени, находящиеся на периферии ареала ненецкой породы (Таймырский АО), несколько отличаются от ядра породы по частотам аллелей из - за притока генов от смежной с ними эвенкийской породы (Э.К. Бороздин, А.Д. Мухачев, Л.Ф. Савадерова, 1989).
| Аллели | Ненецкий АО | Республика Коми | Ямало-Ненецкий АО | |||
| "Россия", | "Нарьян-ты" | "Воркутинский", | "Большая Инта" | "Ижемский" | "Тазовский" | |
| n | 292 | 210 | 102 | 249 | 131 | 131 |
| Тf А1 | 0,188 | 0,152 | 0,186 | 0,143 | 0,122 | 0,126 |
| Тf В1 | 0,358 | 0,348 | 0,328 | 0,388 | 0,328 | 0,355 |
| Тf В2 | - | - | - | - | - | 0,012 |
| Тf С1 | 0,086 | 0,033 | 0,039 | 0,056 | 0,046 | 0,095 |
| Тf С2 | 0,031 | 0,060 | 0,030 | 0,054 | 0,057 | 0,057 |
| Тf D1 | 0,007 | 0,019 | 0,010 | 0,000 | 0,011 | 0,011 |
| Тf D2 | 0,294 | 0,355 | 0,358 | 0,325 | 0,378 | 0,286 |
| Тf D3 | 0,000 | 0,007 | 0,000 | 0,000 | 0,008 | 0,004 |
| Тf E1 | 0,000 | 0,07 | 0,005 | 0,014 | 0,000 | 0,027 |
| Тf E2 | 0,036 | 0,019 | 0,044 | 0,020 | 0,050 | 0,027 |
| n | - | 52 | - | - | 37 | 131 |
| GC a | - | 0,769 | - | - | 0,797 | 0,889 |
| GC b | - | 0,212 | - | - | 0,203 | 0,111 |
| GC c | - | 0,019 | - | - | 0,000 | 0,000 |
Особенности роста и развития. Одной из важнейших особенностей постнатального роста северных оленей является его ярко выраженная сезонность. Необходимостью для организма быть готовым к предстоящей зимовке объясняется исключительно высокая энергия роста северных оленей в первые месяцы жизни, которая относится к эволюционно закрепленным биологическим особенностям.
Анализ источников также дает основание отнести северного оленя к скороспелым животным с высоким уровнем формирования мясной продуктивности (Э.К. Бороздин, 1976).
Для оленеводческих хозяйств факторами, способствующими повышению доли молодняка в убойном контингенте, являются, во-первых, низкая себестоимость телятины (в 2-5 раз ниже мяса взрослых оленей), во-вторых, возможность нагула его на летних пастбищах, т.е. без значительного потребления дефицитного лишайникового корма.
Абсолютный прирост не отражает истиной скорости роста, так как более крупные животные получают некоторое преимущество (И.И. Шмальгаузен, 1935). Более наглядными являются показатели относительного прироста, интенсивности роста, удельной скорости роста. У северных оленей, как и у других сельскохозяйственных животных, максимальный относительный прирост и удельная скорость роста приходится на 1-й месяц постнатального развития. Интенсивность роста, наоборот, медленно, но стабильно растет, что связано с увеличение массы животного. Максимальных показателей интенсивность роста достигла в период от 12 до 18-месячного возраста, существенной разницы между самцами и самками не обнаружено. Константа роста практически одинаковая у самок и самцов в первый месяц -2,102 и 2,137, в процессе роста постепенно снижалась составила к 18 месячному возрасту 0,828 и 0,836 соответственно. У молодняка северных оленей в молочный период константа роста превосходит аналогичный показатель у других сельскохозяйственных животных.
Особенности и экономическая эффективность хозяйственного использования северных оленей в Ямало-Ненецком автономном округе
Северный олень животное универсальной продуктивности: издавна он используется в качестве ездового животного, на мясо, как источник кожевенно-мехового сырья, у некоторых этнических групп практикуется летнее доение важенок. Одной из последних новации стало использование рогов и внутренних органов северного оленя в качестве источника сырья для фармакологической промышленности и восточной медицины. Для ненецкой породы свойственны все перечисленные виды использования, кроме доения важенок.
Транспортное использование. Ненецкая система упряжного использования оленей является самой совершенной среди других этнических систем оленеводства. Олени в условиях тундры и лесотундры незаменимы как транспортные животные, благодаря их способности проходить по бездорожью в любое время года Сейчас оленьи упряжки применяются в основном для внутрихозяйственных работ по окарауливанию стада, перевозке чума, на охоте и рыбалке. Все больше оленеводами применяются снегоходы отечественного и импортного производства. Но значение упряжного оленеводства по–прежнему велико, а доля транспортных оленей по Ямало-Ненецкому округу составляет 28-31%. Рабочая производительность северных оленей ненецкой породы характеризуется весьма высокими показателями (П.Н. Востряков, 1956; С.П. Попов, 1956).
Ненецкие нарты (хан) очень прочны, достаточно устойчивы при езде, имеют строго пропорциональный вид. Нарты бывают легковые, на которых разъезжает человек и грузовые, на которых перевозится различный скарб, грузы. Легковые нарты, которые используют мужчины - называют мужскими, легковые нарты, которые закреплены за женщинами - женскими. В свою очередь мужские нарты изготавливаются двух видов - летние и зимние. Грузовые нарты представлены тремя типами: жесткая грузовая, упрочненная грузовая, вандако. Ненецкая нарта состоит из двух полозьев, нескольких пар крыльев, согласно им копыльных вязов, двух нащепов, головочного вяза, двух головочных штырей и грузовой площадки.
При запряжке лямка наискось через плечо охватывает петлей холку и шею животного, проходит между предними конечностями и крепится к широкому поясу, охватывающему оленя через спину позади лопаток (рис.3).. Благодаря этому лямка находится в одном положении, упряжь не запутывается и, как правило, не натирает кожу оленя, а нагрузка при натягивании лямки распределяется более равномерно. В зависимости от того, на каком плече находится лямка, тяжик проходит справа или слева по отношению к задним конечностям оленя. При данной системе запряжки у животных сохраняется максимальная сила тяги. Каждого оленя, кроме передового, привязывают поводком к лямочной накладке соседнего животного слева. У передового оленя упряжки к оголовью вместо поводка укрепляется вожжа (кожаный ремень длинной 5-6 м). Крайнего оленя в упряжке справа называют пелей, среднего - еркы. Оленевод садится на нарту слева, при этом вожжечку он держит в левой руке, хорей в правой.
Мясная продуктивность. На мясо оленей начинают забивать, как правило, с 6-месячного и 1,5-летнего возраста. Вопрос о качестве и вкусовых особенностях мяса северных оленей при убое в 6-месячном возрасте по-прежнему остается дискуссионным. Противники раннего убоя оленей указывают на водянистость и низкую питательность телятины, тогда как ее сторонники относят указанные качества к положительным, определяющим диетические свойства молодой оленины (Е.М. Ким, 1972; Н. Ковалев, В. Адамова, 1976: Г.И. Ковров, Н.А. Коврова, 1977)
Нами было проведено сравнительное исследование качественных показателей оленей ненецкой породы в период роста. Для убоя отбирали животных 6- и 18-месячного возраста, типичных по развитию и живой массе. Для сравнения полученных данных за 100% были приняты показатели от убоя взрослых ненецких оленей-самцов, полученные ранее (А.Д. Мухачёв, 1976; А.А. Южаков, 1987; А.А. Южаков, А.Д. Мухачёв, 1994).
По массе туши 6-месячные олени уступают взрослым на 51,8%, т.е. практически в 2 раза, 18-месячные – на 28,3% (табл. 5)..
Таблица 5 - Изменение качества мяса в зависимости от возраста северных оленей
| Показатель | 6 мес. | 18 мес. | Взрослые |
По отношению к взрослым, % |
|
| 6 мес. | 18 мес. | ||||
| Живая масса, кг | 55,6 | 82,4 | 109,4 | 50,8 | 75,3 |
| Масса туши, кг | 27,3 | 40,6 | 56,6 | 48,2 | 71,7 |
| Убойный выход, % | 49,1 | 49,2 | 51,5 | 95,3 | 95,5 |
| Коэффициент мясности | 4,0 | 4,4 | 5,5 | 72,7 | 80,0 |
| Площадь "мышечного глазка", см | 16,5 | 21,4 | 25,1 | 65,6 | 85,5 |
| Диаметр мускульного волокна, мм | 33,7 | 45,7 | 62,3 | 54,1 | 73,3 |
| Жира в мясе, % | 4,5 | 5,1 | 6,7 | 67,4 | 76,3 |
| Энергетическая ценность мякоти, мДж в 1 кг | 5,2 |
5,6 |
6,0 |
86,8 |
92,8 |
Важнейшим биохимическим показателем качества мяса является аминокислотный состав. Соотношение заменимых и незаменимых аминокислот – аминокислотный индекс – одна из главных характеристик ценности белков любого пищевого сырья животного и растительного происхождения. При сравнении аминокислотного состава мяса животных разного возраста (табл. 6) установлено, что 6-месячные животные уступают 18-месячным с достоверной
Таблица 6 - Изменение аминокислотного состава мяса в зависимости от возраста северных оленей, г/кг сырой массы
| Аминокислота | 6 мес. | 18 мес. | Взрослые |
| Лизин | 1,64 ± 0,05 | 2,33 ± 0,12 | 0,85 ± 0,10 |
| Гистидин | 0,84 ± 0,01 | 1,05 ± 0,05 | 0.91 ± 0,13 |
| Аргинин | 1,32 ± 0,06 | 1,77 ± 0,04 | 1,85 ± 0,44 |
| Треонин | 0,94 ± 0,01 | 0,91 ± 0,02 | 0,79 ± 0,26 |
| Валин | 0,93 ± 0,01 | 0,87 ± 0,05 | 0,48 ± 0,07 |
| Метионин | 0,14 ± 0,01 | 0,21 ± 0,02 | - |
| Изолейцин | 0,89 ± 0,02 | 1,21 ± 0,04 | - |
| Лейцин | 1,64 ± 0,03 | 1,67 ± 0,06 | 1,27 ± 0,19 |
| Фенилаланин | 0,87 ± 0,02 | 0,83 ± 0,03 | 0,76 ± 0,06 |
| Итого незаменимых кислот | 9,21 | 10,85 | 6,91 |
| Аспарагиновая кислота | 1,75 ± 0,03 | 1,79 ± 0,08 | 1,81 ± 0,51 |
| Серин | 0,81 ± 0,02 | 0,76 ± 0,02 | 0,42 ± 0,64 |
| Глутаминовая кислота | 2,73 ± 0,05 | 3,81 ± 0,18 | 0,98 ± 0,17 |
| Глицин | 0,84 ± 0,01 | 0,78 ± 0,02 | 0,82 ± 0,95 |
| Аланин | 1,17 ± 0,02 | 1,12 ± 0,02 | 1,32 ± 0,25 |
| Тирозин | 0,81 ± 0,02 | 0,72 ± 0,03 | 0,71 ± 0,11 |
| Пролин | 0,83 ± 0,02 | 0,87 ± 0,02 | - |
| Итого заменимых кислот | 8,94 | 9,85 | 6,06 |
| Аминокислотный индекс | 1,03 | 1,10 | 1,14 |
степенью разницы (Р<0,001) по содержанию лизина (42,0%), гистидина (25,0%), аргинина (34,0%), метионина (50,0%), изолейцина (36,0%). Мясо взрослых оленей уступает телятине по содержанию практически всех незаменимых аминокислот. По сумме незаменимых аминокислот мясо 18-месячных оленей превосходит таковое взрослых и 6-месячных животных соответственно на 36,3 и 17,8%; по сумме заменимых – соответственно на 62,5 и 10,2%. Аминокислотный индекс с возрастом изменяется незначительно.
По соотношению содержания триптофана и оксипролина, которое называется белковый качественный показатель (БКП), можно судить о биологической ценности белков мяса.(табл. 7).
У оленей в 6-месячном возрасте содержание триптофана значительно выше, чем у 18-месячных животных, однако БКП у последних заметно увеличивается вследствие снижения содержания оксипролина.
Экономическая эффективность производства продукции оленеводства. В агропромышленном комплексе Ямало-Ненецкого автономного округа производством продукции оленеводства занято 13 крупных коллективных хозяйств различных организационно-правовых форм собственности.
Таблица 7 - Белковый качественный показатель длиннейшей мышцы спины северных оленей разного возраста, М±m
| Показатель | 6 мес. | 18 мес. | ||
| Самцы | Самки | Самцы | Самки | |
| Триптофан, мг% | 247,7 ± 11,4 | 273,7 ± 7,1 | 146,8 ± 2,6 | 155,2 ± 3,0 |
| Оксипролин, мг% | 23,4 ± 1,4 | 22,2 ± 0,9 | 9,3 ± 1,1 | 11,3 ± 1,7 |
|
Белковый качественный показатель |
11,8 ± 0,5 |
12,4 ± 0,5 |
17,0 ± 2,4 |
14,6 ± 1,4 |
На увеличение рентабельности мяса оленей повлияли рост средней цены и себестоимости (табл. 8). При уменьшении продуктивности оленеводства на 40% себестоимость 1 ц мяса повышается на 3145 руб. Рост затрат на 1 голову в 3 раза увеличивает себестоимость 1 ц оленины на 1571 руб.
Таблица 8 – Экономическая эффективность производства мяса оленей в 1998-2000гг.
| Показатель | 1998 | 1999 | 2000 |
| Средняя цена реализации 1 ц, руб. | 7608 | 10871 | 16080 |
| Полная себестоимость 1 ц, руб. | 13785 | 19856 | 22225 |
| Уровень рентабельности, % | -44,8 | -45,2 | -27,6 |
Экономическая эффективность других видов продукции оленеводства. Растущие рога молодых оленей – панты содержат биологически активные вещества, которые используется в фармакологической промышленности для изготовления препаратов «Рантарин» и «Валкордин», обладающего широким спектром общеукрепляющего и иммуностимулирующего действиея и тонизирующих пищевых добавок типа напитка «Хейро»(В.Г. Шелепов, 1997). Данные показывают, что производство и реализация пантов северных оленей в ЯНАО увеличилась в 2000 году по сравнению с аналогичным периодом прошлого года на 65,8% (табл. 9). При этом увеличивается прибыль получаемая от реализации пантовой продукции, соответственно растёт и рентабельность производства.
Таблица 9 - Производство и реализация пантов по годам
| Показатель | 1996 | 1997 | 1998 | 1999 | 2000 |
| Себестоимость, тыс. руб. | 2162,2 | 817,2 | 324,6 | 3379,6 | 5324,7 |
| Выручка, тыс. руб. | 3138,3 | 1135,5 | 617,8 | 5392,1 | 10267,2 |
| Рентабельность, % | 45,1 | 38,9 | 90,3 | 59,5 | 92,8 |
Научно-производственный опыт промышленного скрещивания оленей ненецкой породы
Использование чукотских оленей для промышленного скрещивания с эвенскими в условиях Якутии показало достаточно высокую экономическую эффективность данного мероприятия (П.И. Старостин,1980; А.Д. Курилюк, Р.А. Бобкова, Д.Е. Мыкычанов, 1980). Научно-техническим советом при МСХ РСФСР чукотская порода была рекомендована как улучшатель для скрещивания с другими породами северных оленей в тундровой и лесотундровой зоне. (1980). Вместе с тем анализ источников показывает, что объем и глубина исследований по промышленному скрещиванию северных оленей совершенно недостаточны для научно обоснованной оценки эффективности этого мероприятия, широкого внедрения его в производство
Характеристика исходного поголовья оленей. Чукотские бычки в количестве 100 голов без видимых осложнений перенесли 3-дневное ожидание самолета и 18-часовой перелет из аэропорта Кепервеем до аэропорта Тазовский (рис. 4), откуда были доставлены в стадо №3, где с 1982 по 1984 гг. участвовали в гоне, как производители..
1 - чукотская (Билибинский район), 2 - ненецкая (Тазовский район)
Начало и динамика отела в контрольном и опытном стаде имели полное совпадение, падеж живых телят в период отела в обоих стадах был практически одинаков, но деловой выход телят выше в опытном стаде
Особенности питания и пастбищного поведения чистопородных и помесных оленей. Анализ содержимого рубца оленей различного происхождения показал, что на соотношение кормовых фракций сильнее влияют состояние пастбищ и сезон выпаса, чем породность и возраст оленей. Выявлено, что у молодняка на зимних пастбищах затраты на отдых составляют 40–50% суточного бюджета времени. Больше времени затрачивают на отдых чистопородные животные, разница с помесными ровесниками составляет 9,9% (td=2,2). Чукотско-ненецкие олени были более активны на пастбищах, однако почти треть этого времени они затрачивали на поиски корма, тогда как местные ненецкие сверстники на эти действия расходовали в два раза меньше времени. Таким образом, затраты времени непосредственно на процесс кормления у молодняка оленей различного происхождения оказались практически одинаковыми.
Особенности роста и развития чистопородных и помесных оленей. Происхождение молодняка не влияло на его живую массу при рождении, которая оказалась практически одинаковой (табл.10). В месячном возрасте разница у самцов составила 2,2 кг (12,4%), у самок – 2,2 кг(13,3%), в 2-месячном – 4 (13,%) и 2,8 кг (9,8%), в 3-месячном – 5,5(13,6%) и 5,9 кг (16,8%), в 4-месячном – 5,5(11,4%) и 4,9 кг (11,4%). К возрасту промышленного убоя живая масса чистопородных ненецких самцов достигла 57,1 кг, самок – 56,2 кг (107,4 %). Разница статистически достоверна во всех случаях(P<0,05). Динамика живой массы молодняка в молочный период во втором опыте совпадает с данными исследований первого опыта. Более низкие абсолютные показатели во втором опыте объясняются худшими погодными и кормовыми условиями на летних пастбищах.
Таблица 10 - Возрастная динамика живой массы молодняка оленей, кг
| Возраст, мес. | Ненецкие | Чукотско-ненецкие |
| самцы | ||
| при рождении | 7,2±0,26 | 7,1±0,24 |
| 1 | 17,7±0,49 | 19,9±0,46 |
| 2 | 29,7±0,89 | 33,7±1,12 |
| 3 | 40,3±0,80 | 45,8±1,13 |
| 4 | 48,1±0,99 | 53,6±1,14 |
| 6 | 57,1±1,17 | 60,6±1,22 |
| 12 | 55,0±1,30 | 58,3±1,48 |
| 18 | 82,2±1,34 | 87,9±2,21 |
| самки | ||
| при рождении | 6,6±0,17 | 6,7±0,17 |
| 1 | 16,5±0,45 | 18,7±0,39 |
| 2 | 28,7±0,72 | 31,5±0,76 |
| 3 | 36,4±0,61 | 42,5±0,84 |
| 4 | 42,0±0,78 | 47,9±0,86 |
| 6 | 52,4±1,04 | 56,2±1,25 |
| 12 | 50,7±1,18 | 53,1±1,49 |
| 18 | 78,3±1,22 | 83,2±1,52 |
В период зимнего выпаса, при неполноценном и недостаточном кормлении живая масса молодняка в 12-месячном возрасте снижается: у самцов в контрольной группе на 2,1кг (3,8%), у самок – на 1,7 (3,4%), в опытной – соответственно на 2,3 (3,9%) и 3,1кг (5,8%) по отношению к показателям в 6-месячном возрасте. Прямой зависимости величины снижения массы тела с полом молодняка не обнаружено, Чистопородный молодняк несколько лучше перенес зимовку: снижение живой массы по контрольной группе составило 3,6%, у помесей 4,8%.С 12- до 18-месячного возраста у молодняка оленей наблюдается следующий пик прироста живой массы. В конце периода живая масса чистопородного ненецкого молодняка достигла 82,3 кг у самцов и 78,3 – у самок, у чукотско-ненецких помесей – соответственно 87,8 (106,9%) и 83,2 кг (106,3%). Разница статистически достоверна по первому порогу вероятных прогнозов (Р<0,05).
Среднесуточный прирост в первые 3 месяца постнатального развития молодняка выше в опытной группе. При этом максимальный прирост здесь приходится на 3-й месяц: у самцов он достиг 466 г, у самок – 412 г. В контрольной группе максимальный среднесуточный прирост приходится на 2-й месяц: у самцов – 376, у самок – 359 г. Высокая интенсивность роста в первые 3 месяца обусловлена выпасом важенок и телят на зеленых кормах. С началом увядания растительности в конце августа–начале сентября и последующим падением молочности важенок среднесуточный прирост у телят резко снижается: у самцов контрольной группы на 18, 7%, у самок – на 15,9%, в опытной – на 38 и 49,5% соответственно, по отношению к предыдущему периоду. Отсюда можно предположить, что помесный молодняк более восприимчив к условиям кормления, чем чистопородные сверстники. С 12- до 18- месячного возраста. чукотско-ненецкие помеси сохраняют свое превосходство над чистопородными оленями: самки – на 14 г, самцы – на 4 г.
Показатели относительного прироста, интенсивности роста, удельной скорости роста и константы роста в опытной группе на 10-11% выше, чем в контрольной.. Самцы превосходили самок по данному показателю во все учетные периоды. По нашим данным, более скороспелыми являются чукотско-ненецкие помеси, константа роста, у которых в первые 3 месяца постнатального развития составила (без учета пола) 2,203, а от 3- до 6-месячного возраста – 1,504, у чистопородных – соответственно 2,147 и 1,597.
Формирование телосложения у чистопородного и помесного молодняка. В возрасте 6 месяцев самцы опытной группы превосходили сверстников из контрольной по обхвату груди на 3,3%, глубине груди на 2,3, ширине груди – на 6,1, ширине в маклаках – на 3,9, косой длине зада – на 8,2% (рис.5). У самок наибольшая разница в пользу помесей обнаружена по косой длине туловища – 3,7 %, обхвату груди – 2,3, по ширине груди – 4,9, косой длине зада – 4,5%. По остальным промерам разница оказалась несущественной. В период зимнего выпаса у оленей с 6- до 12-месячного возраста продолжалось увеличение промеров: высота в холке (1,7-3,2% к осеннему значению), высота в локте (1,8-4,9%), длина головы (3,3-4,8%), косая длина зада (1,5-5,7%). С 12- до 18-месячного возраста у оленей идет активное наращивание живой массы и увеличение абсолютных размеров тела. Однако, рост отдельных промеров заметно отличается в зависимости от происхождения животных
Мясная продуктивность чистопородных ненецких оленей
и чукотско-ненецких помесей 1-го поколения
При убое оленей в 6-месячном возрасте разница в пользу чукотско-ненецких помесей по убойным показателям оказалась статистически достоверной по первому порогу вероятных прогнозов (Р<0,05) как у самцов, так и у самок. У самцов преимущество составило 2,8 кг (5% к контролю), по массе туши – 2,9 кг (10,6 %), у самок – соответственно 2,9 (5,8%) и 3,0 кг (12,1%). Убойный выход оказался выше у самцов-помесей на 2,7% (Р<0,05), у самок-помесей – на 2,9% (Р<0,01). Обнаружено превосходство самцов над самками в 6-месячном возрасте не только по живой массе и массе туш, но и по убойному выходу на 0,4-0,7%.
А) Б)