Волновая резонансная теория
2.3.2 Основные определения и Леммы
Опр1: n – номер 1-го необученного нейрона,
n1 = 1;
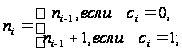 при
t = T1
Опр2: c – командная переменная,
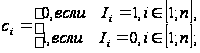 при t = T1
Опр3: i-й
ансамбль обучен
 :
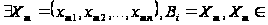 X
Лемма 1 (об
обучении): 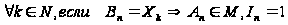
Лемма 2 (о командном
блоке): Пусть
Ii = 1
(при t = T1),
=> c = 0,

2.3.3 Теорема о стабильности
Теорема (о
стабильности):  X :
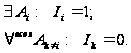
2.3.4 Доказательство
Существование:
X1 : B1 = X1 => I1 = 1 (из Леммы об обучении)
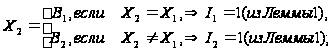
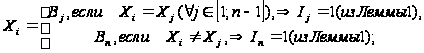
Ч.т.д.
Единственность:
От противного
Предположим
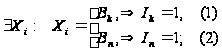
Из (1) по Л2 следует,
что т.к. Ik
= 1
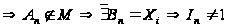 ,
т.е. пункт (2) не
возможен
Ч.т.д.
2.3.5 Архитектура ВPT
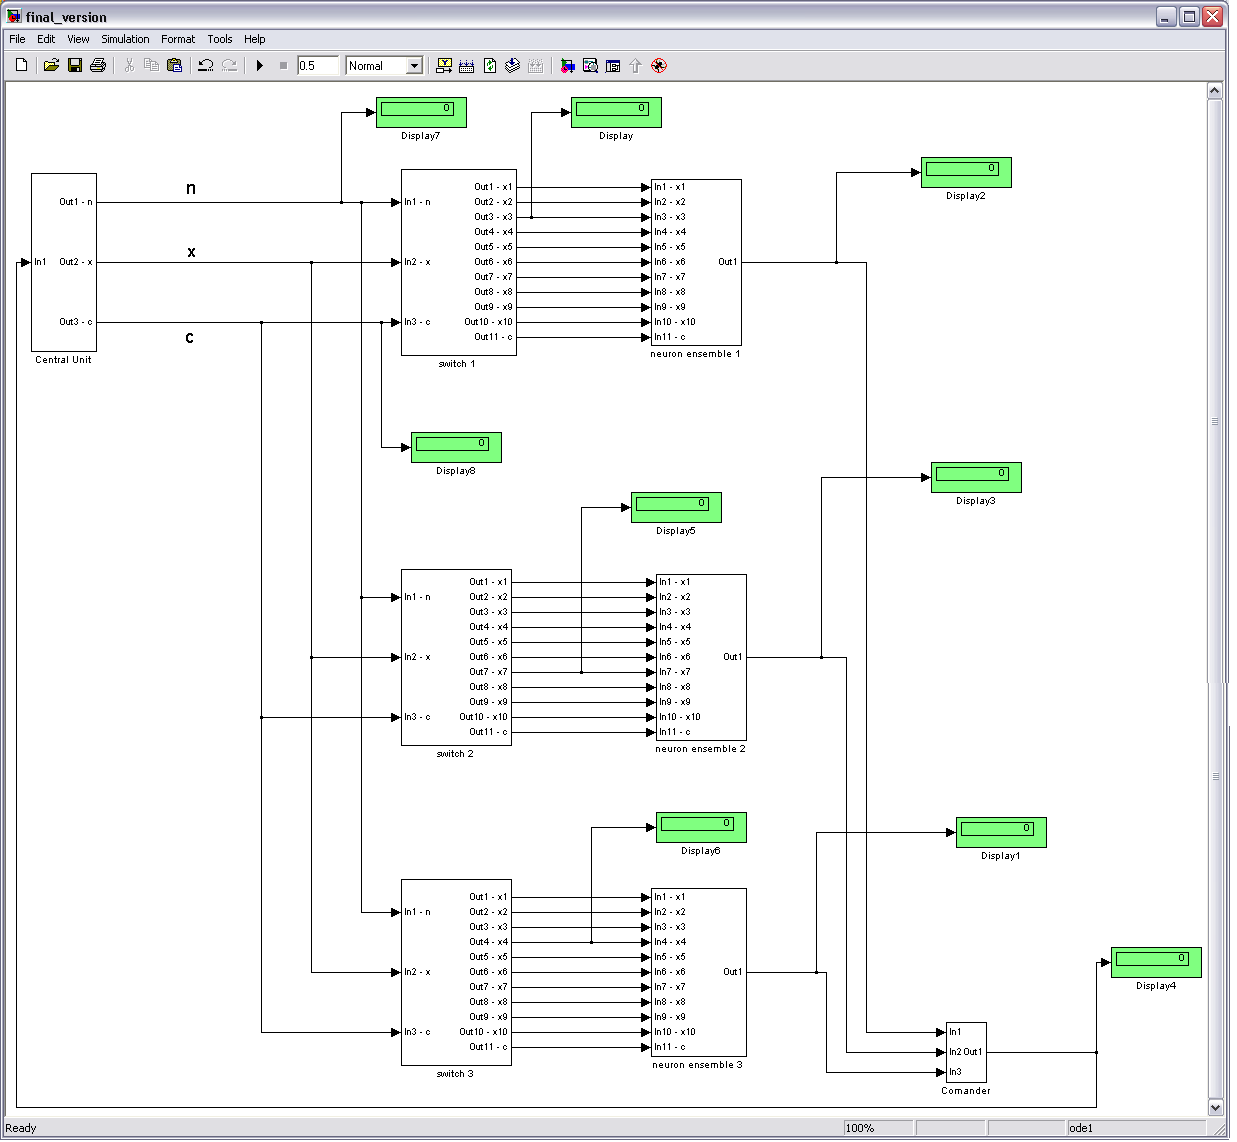
На рис. 8 показана схема сети ВPT, представленная в виде четырех функциональных модулей. Она включает Блок Управления, N фильтров, N ансамблей нейронов и Командный Модуль. Блок Управления и Командный Модуль обеспечивают управляющие функции, необходимые для обучения и классификации.
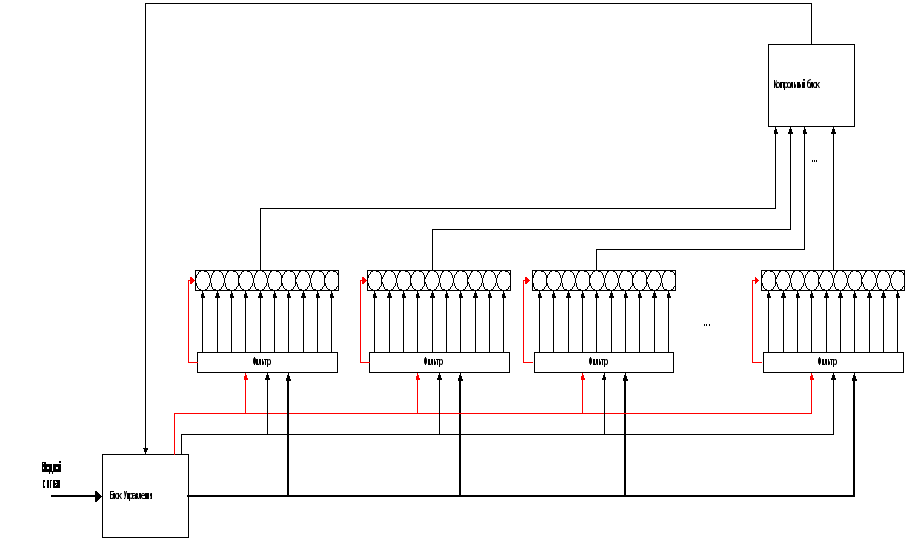
Рис. 8. Схема ВРТ
2.3.6 Принцип работы
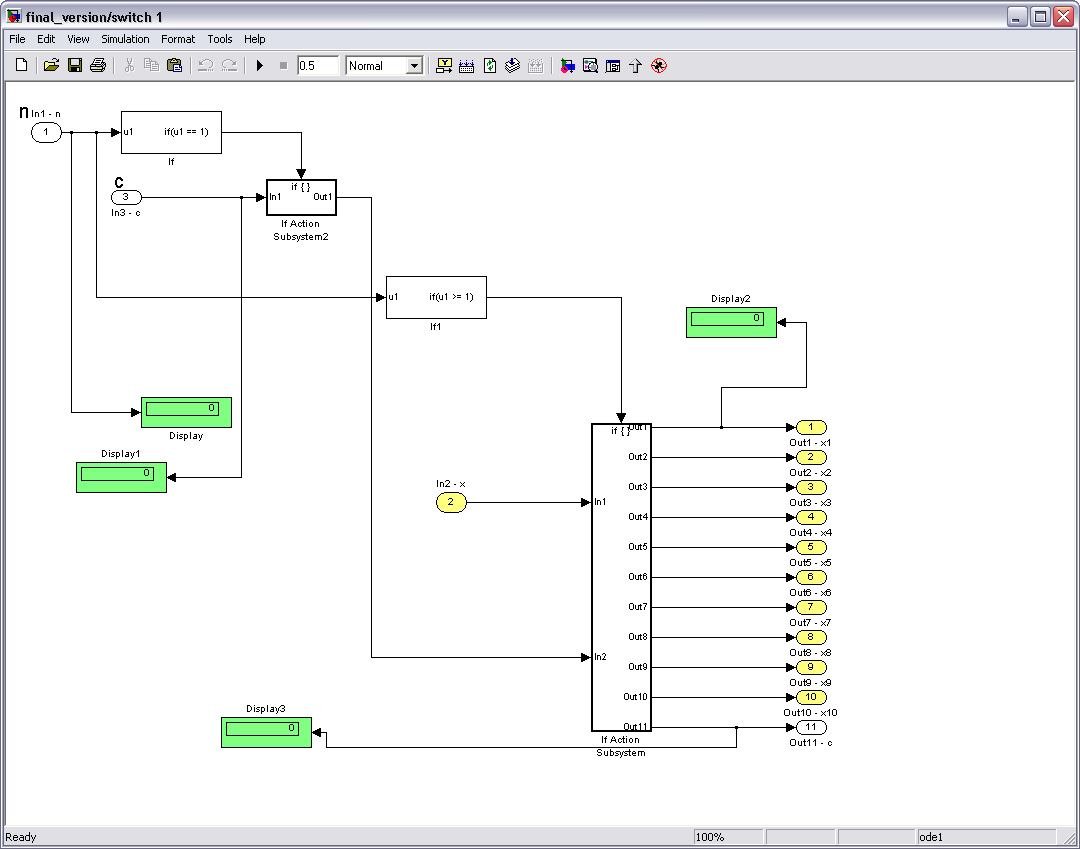
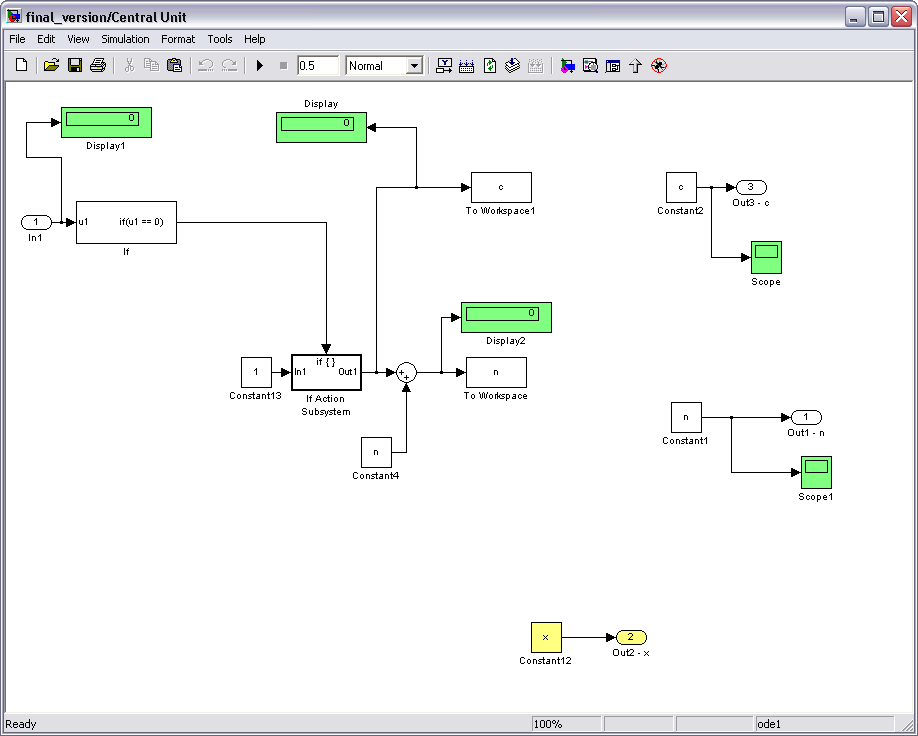
Блок управления (БУ) получает на вход вектор x и пропускает его в параллельно во все ансамбли. Вместе с сигналом БУ пропускает номер первого необученного ансамбля n, который при инициализации сети равен 1; и командную переменную c. В случае, если сигнал проходит впервые, т.е. идет его распознавание, командная переменная равна 0.
Перед каждым нейронным ансамблем установлен фильтр. Его функция заключается в том, чтобы не пропускать сигнал в еще не обученный ансамбль. Эта функция реализуется благодаря переменной n. В том случае, если n превышает номер ансамбля, сигнал пропускается и командная переменная обнуляется. В случае, если n равна номеру ансамбля, командная переменная проходит без изменений и входной сигнал пропускается. Если же n меньше номера ансамбля, не пропускается ни входной вектор, ни командная переменная.
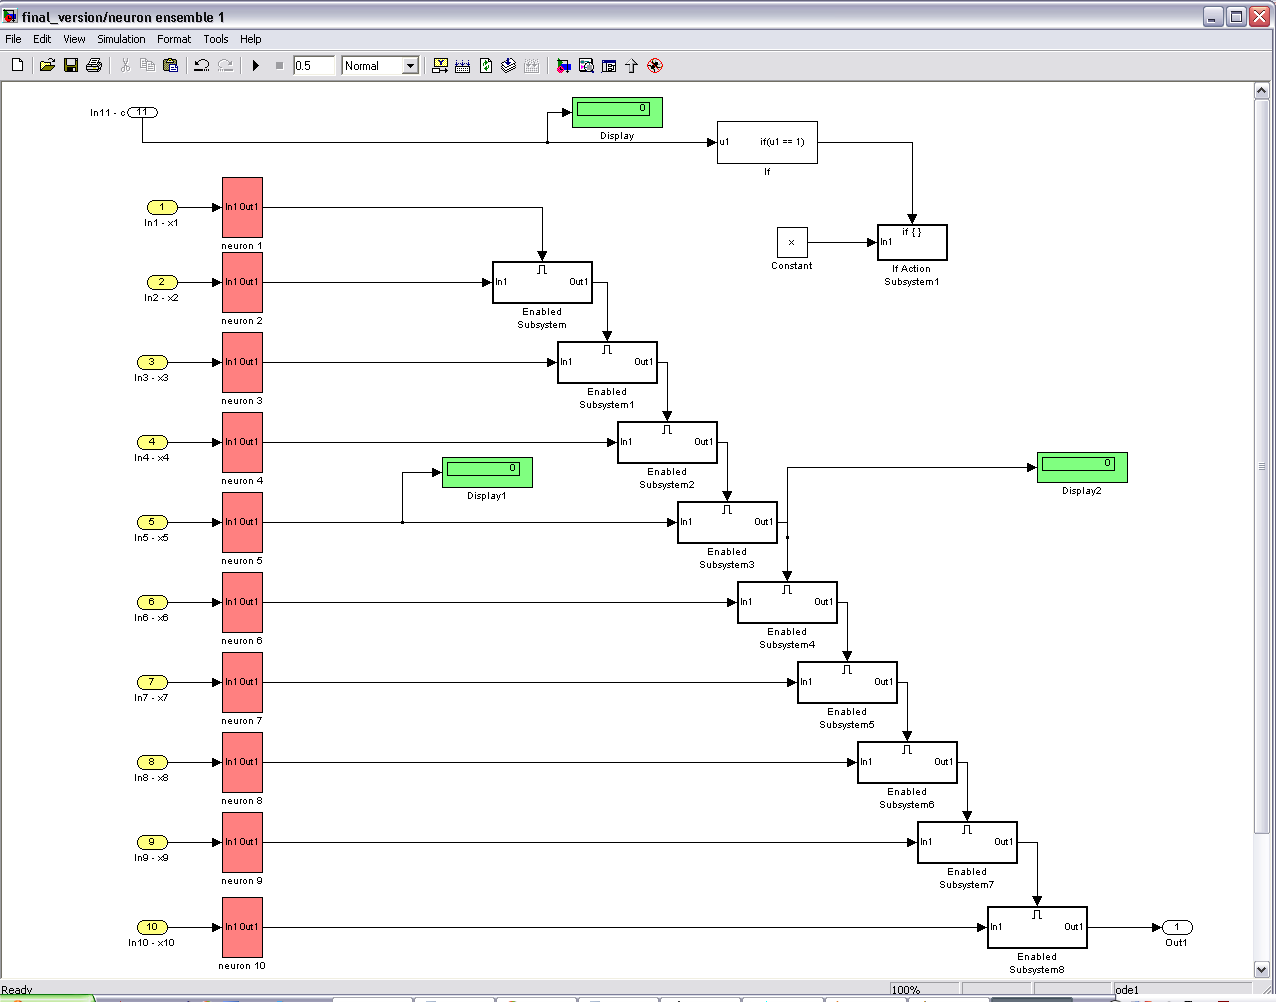
В нейронном ансамбле проверяется величина командной переменной. Если она нулевая, то в каждом отдельном нейроне идет сравнение величины элемента входного вектора с ранее запомненной. Если же c=1, то происходит запоминание.
В процессе сравнения, как описывалось ранее, каждый элемент входного вектора проверяется на совпадение с ранее запомненным. Т.е. образ распознается только в случае резонанса входного и сигнала, которому был обучен ансамбль (рис.8).
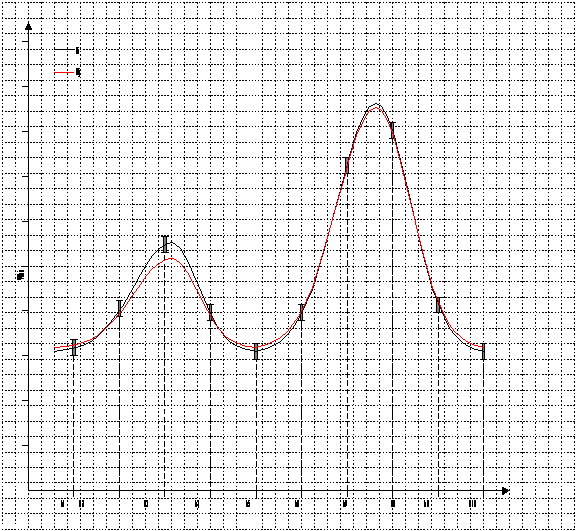
Рис.9. Не резонанс.
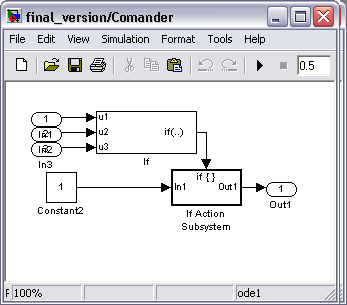
После процесса сравнения мы получаем сигналы со всех ансамблей. В случае успешного распознавания или обучения, сигнал будет равен единице, в другом случае – нулю. В контрольном блоке идет проверка сигналов со всех ансамблей. Если с одного из них пришел положительный ответ, посылается сигнал об окончании процесса, если ответ нулевой, посылается команда о переходе к обучению.
Блок БУ при получении из контрольного блока команды об обучении, увеличивает номер n на единицу, устанавливает командную переменную в единицу и посылает повторный сигнал. В случае прихода с контрольного блока сигнала об успешном распознавании или обучении, процесс останавливается.
Одной из главных задач при создании нейронной сети является выбор модели нейрона, наиболее подходящей для решаемой сетью задачи. Для этого рассмотрим несколько наиболее известных из разработанных моделей.
2.4 Адаптивная резонансная теория
Сети и алгоритмы APT сохраняют пластичность, необходимую для изучения новых образов, в то же время предотвращая изменение ранее запомненных образов. Эта способность стимулировала большой интерес к APT, но многие исследователи нашли теорию трудной для понимания. Математическое описание APT является сложным, но основные идеи и принципы реализации достаточно просты для понимания. Мы сконцентрируемся далее на общем описании APT; математически более подготовленные читатели смогут найти изобилие теории в литературе, список которой приведен в конце главы. Нашей целью является обеспечение достаточно конкретной информацией, чтобы читатель мог понять основные идеи и возможности, а также провести компьютерное моделирование с целью исследования характеристик этого важного вида сетей.
- 2.4.1 АРХИТЕКТУРА APT
Адаптивная резонансная теория включает две парадигмы, каждая из которых определяется формой входных данных и способом их обработки. АРТ-1 разработана для обработки двоичных входных векторов, в то время как АРТ-2, более позднее обобщение АРТ-1, может классифицировать как двоичные, так и непрерывные векторы. В данной работе рассматривается только АРТ-1. Читателя, интересующегося АРТ-2, можно отослать к работе [3] для полного изучения этого важного направления. Для краткости АРТ-1 в дальнейшем будем обозначать как APT.
- 2.4.2 Описание APT
Сеть APT представляет собой векторный классификатор. Входной вектор классифицируется в зависимости от того, на какой из множества ранее запомненных образов он похож. Свое классификационное решение сеть APT выражает в форме возбуждения одного из нейронов распознающего слоя. Если входной вектор не соответствует ни одному из запомненных образов, создается новая категория посредством запоминания образа, идентичного новому входному вектору. Если определено, что входной вектор похож на один из ранее запомненных векторов с точки зрения определенного критерия сходства, запомненный вектор будет изменяться (обучаться) под воздействием нового входного вектора таким образом, чтобы стать более похожим на этот входной вектор.
Запомненный образ не будет изменяться, если текущий входной вектор не окажется достаточно похожим на него. Таким образом решается дилемма стабильности-пластичности. Новый образ может создавать дополнительные классификационные категории, однако новый входной образ не может заставить измениться существующую память.
- 2.4.3 Упрощенная архитектура APT
На рис. 9 показана упрощенная конфигурация сети APT, представленная в виде пяти функциональных модулей. Она включает два слоя нейронов, так называемых «слой сравнения» и «слой распознавания». Приемник 1, Приемник 2 и Сброс обеспечивают управляющие функции, необходимые для обучения и классификации.
Перед рассмотрением вопросов функционирования сети в целом необходимо рассмотреть отдельно функции модулей; далее обсуждаются функции каждого из них.
Слой сравнения. Слой сравнения получает двоичный входной вектор Х и первоначально пропускает его неизмененным для формирования выходного вектора C. На более поздней фазе в распознающем слое вырабатывается двоичный вектор R, модифицирующий вектор C, как описано ниже.
Каждый нейрон в слое сравнения (рис. 10) получает три двоичных входа (0 или I): (1) компонента хi входного вектора X; (2) сигнал обратной связи Ri – взвешенная сумма выходов распознающего слоя; (3) вход от Приемника 1 (один и тот же сигнал подается на все нейроны этого слоя).
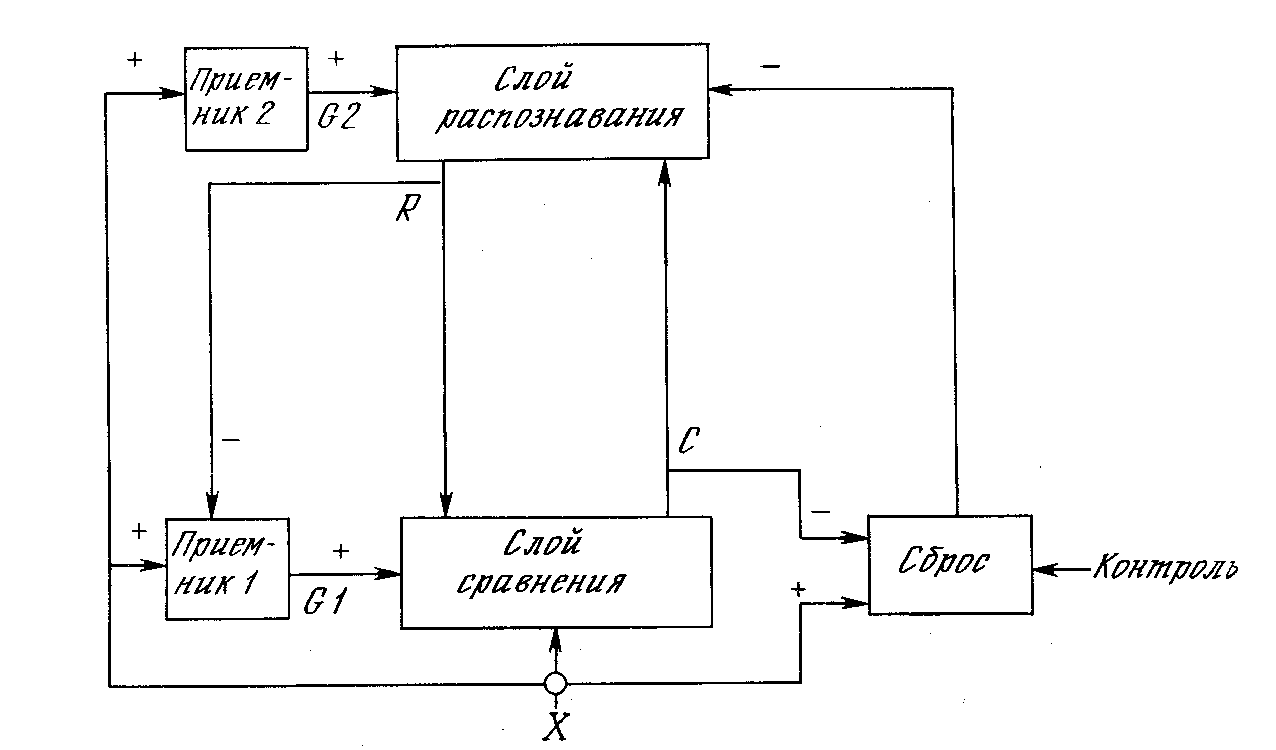
Рис. 9. Упрощенная сеть АРТ
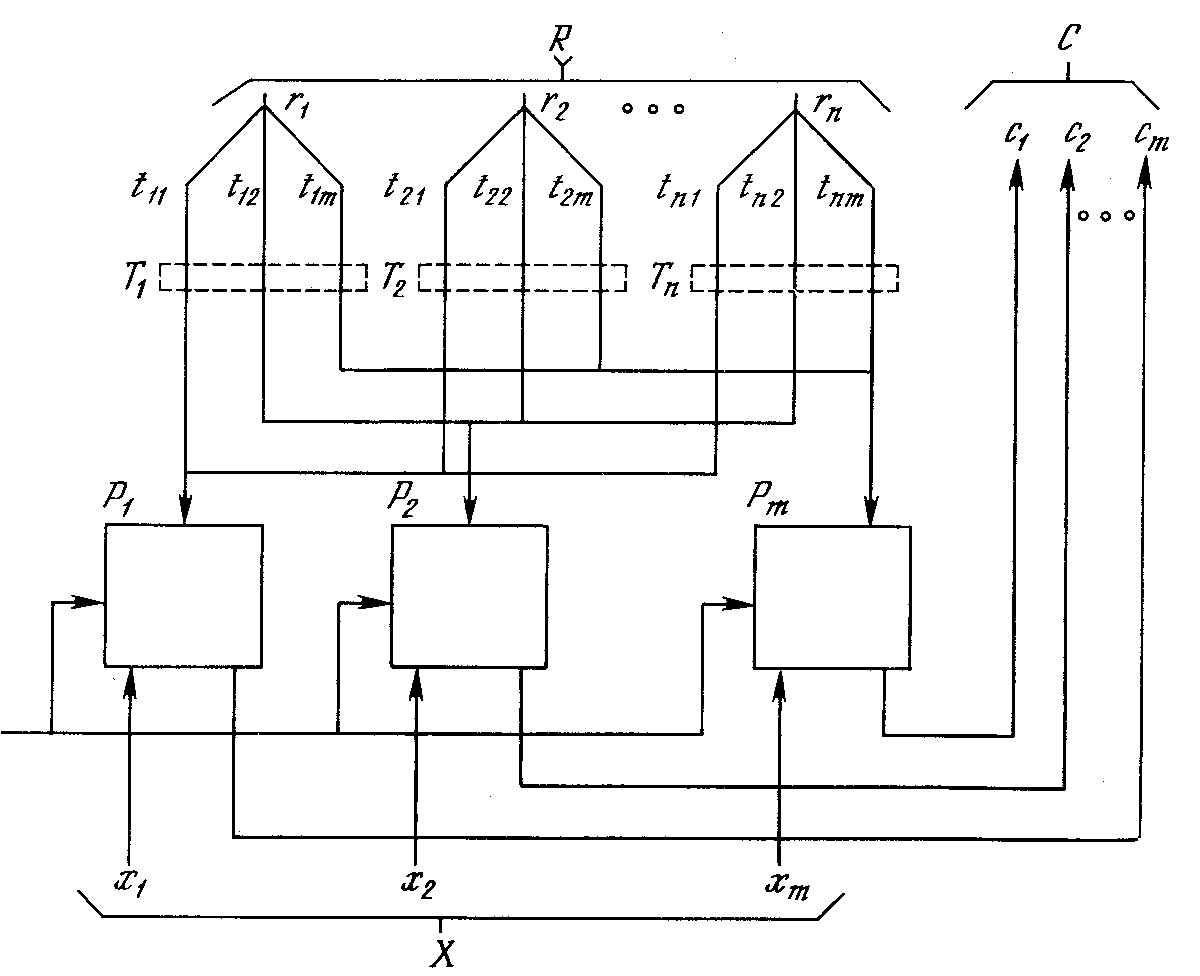
Рис. 10. Упрощенный слой сравнения
Чтобы получить на выходе нейрона единичное значение, как минимум два из трех его входов должны равняться единице; в противном случае его выход будет нулевым. Таким образом реализуется правило двух третей, описанное в [З]. Первоначально выходной сигнал G1 Приемника 1 установлен в единицу, обеспечивая один из необходимых для возбуждения нейронов входов, а все компоненты вектора R установлены в 0; следовательно, в этот момент вектор C идентичен двоичному входному вектору X.
Слой распознавания. Слой распознавания осуществляет классификацию входных векторов. Каждый нейрон в слое распознавания имеет соответствующий вектор весов Bj Только один нейрон с весовым вектором, наиболее соответствующим входному вектору, возбуждается; все остальные нейроны заторможены.
Как показано на рис. 11, нейрон в распознающем •слое имеет, максимальную реакцию, если вектор C, являющийся выходом слоя сравнения, соответствует набору его весов, следовательно, веса представляют запомненный образ или экземпляр для категории входных векторов. Эти веса являются действительными числами, а не двоичными величинами. Двоичная версия этого образа также запоминается в соответствующем наборе весов слоя сравнения (рис. 10); этот набор состоит из весов связей, соединяющих определенные нейроны слоя распознавания, один вес на каждый нейрон слоя сравнения.
В процессе функционирования каждый нейрон слоя распознавания вычисляет свертку вектора собственных весов и входного вектора C. Нейрон, имеющий веса, наиболее близкие вектору C, будет иметь самый большой выход, тем самым выигрывая соревнование и одновременно затормаживая все остальные нейроны в слое.
Как показано на рис. 12, нейроны внутри слоя распознавания взаимно соединены в латерально-тормозящую сеть. В простейшем случае (единственном, рассмотренном в данной работе) предусматривается, что только один нейрон в слое возбуждается в каждый момент времени (т. е. только нейрон с наивысшим уровнем активации будет иметь единичный выход; все остальные нейроны будут иметь нулевой выход). Эта конкуренция реализуется введением связей с отрицательными весами lij с выхода каждого нейрона ri на входы остальных нейронов. Таким образом, если нейрон имеет большой выход, он тормозит все остальные нейроны в слое. Кроме того, каждый нейрон имеет связь с положительным весом со своего выхода на свой собственный вход. Если нейрон имеет единичный выходной уровень, эта обратная связь стремится усилить и поддержать его.
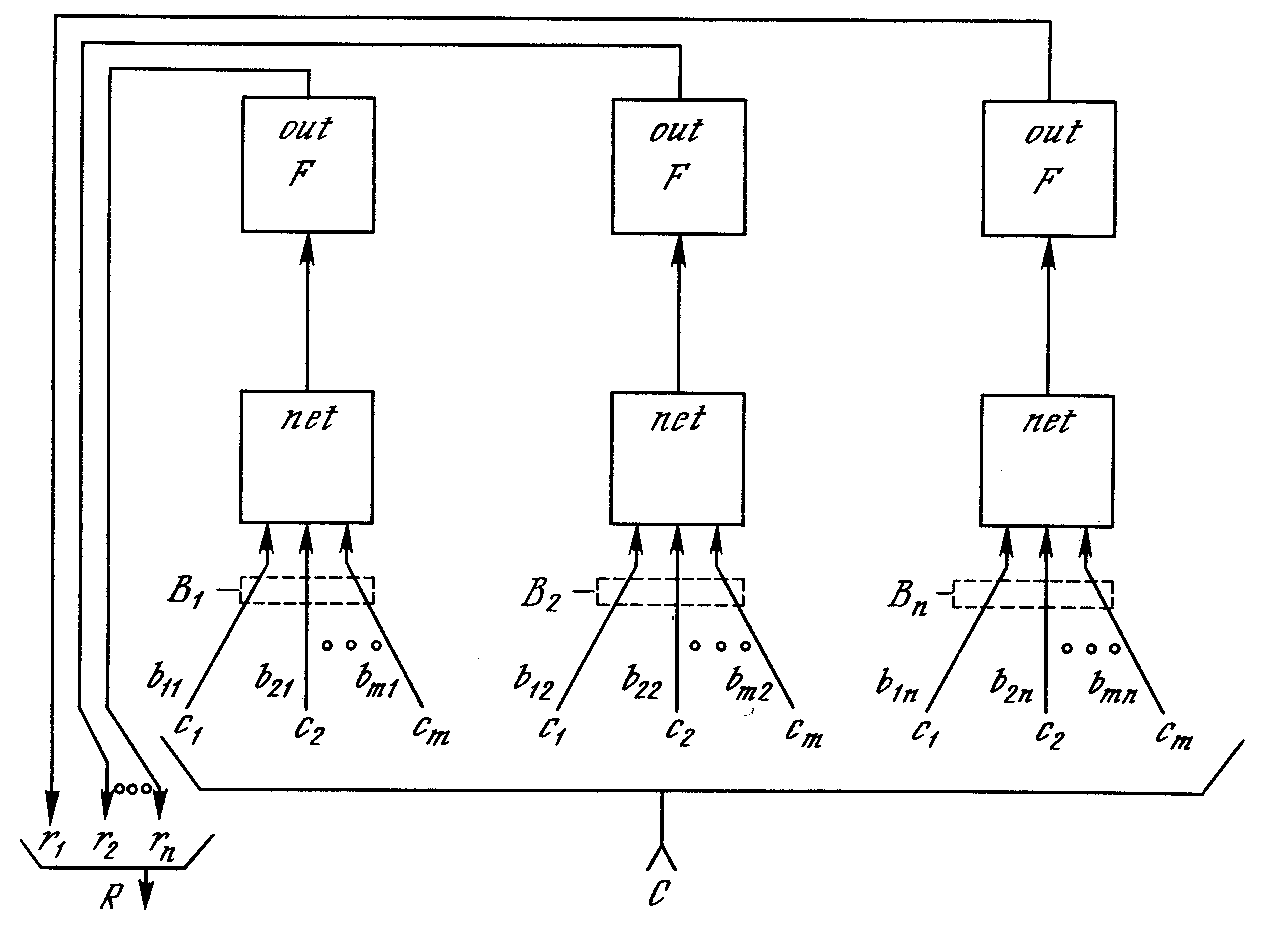
Рис. 11. Упрощенный слой распознавания
Приемник 2. G2, выход Приемника 2, равен единице, если входной вектор X имеет хотя бы одну единичную компоненту. Более точно, G2 является логическим ИЛИ от компонента вектора X.
Приемник 1. Как и сигнал G2, выходной сигнал G1 Приемника 1 равен 1, если хотя бы одна компонента двоичного входного вектора X равна единице; однако если хотя бы одна компонента вектора R равна единице, G1 устанавливается в нуль. Таблица, определяющая эти соотношения:
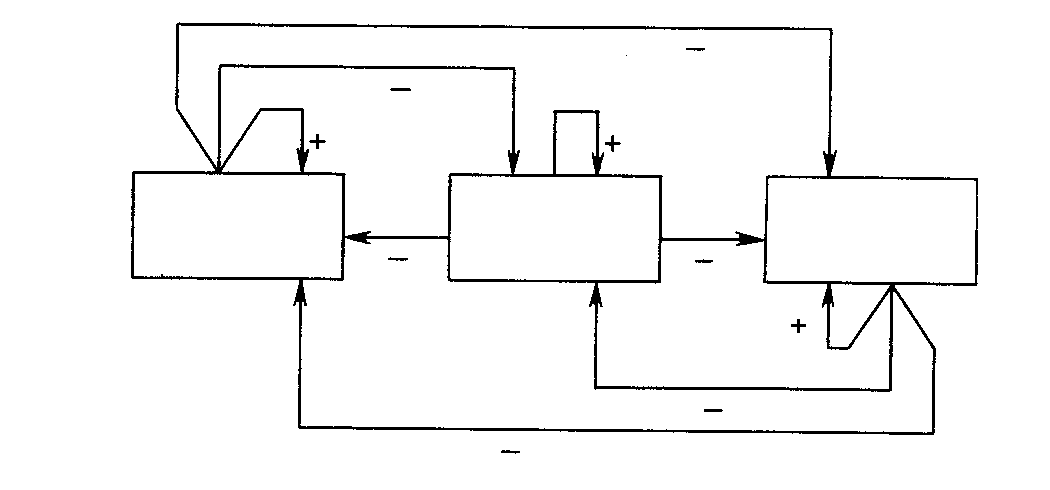
Рис. 12. Слой распознавания с латеральным торможением
|
ИЛИ от компонента вектора X |
ИЛИ от компонента вектора R |
G1 |
| 0 | 0 | 0 |
| 1 | 0 | 1 |
| 1 | 1 | 0 |
| 0 | 1 | 0 |
Сброс. Модуль сброса измеряет сходство между векторами X и C. Если они отличаются сильнее, чем требует параметр сходства, вырабатывается сигнал сброса возбужденного нейрона в слое распознавания.
В процессе функционирования модуль сброса вычисляет сходство как отношение количества единиц в векторе C к их количеству в векторе C. Если это отношение ниже значения параметра сходства, вырабатывается сигнал сброса.
2.4.4 Функционирование сети APT в процессе классификации
Процесс классификации в APT состоит из трех основных фаз: распознавание, сравнение и поиск.
Фаза распознавания. В начальный момент времени входной вектор отсутствует на входе сети; следовательно, все компоненты входного вектора X можно рассматривать как нулевые. Тем самым сигнал G2 устанавливается в 0 и, следовательно, в нуль устанавливаются выходы всех нейронов слоя распознавания. Поскольку все нейроны слоя распознавания начинают работу в одинаковом состоянии, они имеют равные шансы выиграть в последующей конкуренции.
Затем на вход сети подается входной вектор X, который должен быть классифицирован. Этот вектор должен иметь одну или более компонент, отличных от нуля, в результате чего и G1, и G2 становятся равными единице. Это «подкачивает» нейроны слоя сравнения, обеспечивая один из двух единичных входов, необходимых для возбуждения нейронов в соответствии с правилом двух третей, тем самым позволяя нейрону возбуждаться, если соответствующая компонента входного вектора X равна единице. Таким образом, в течение данной фазы вектор S в точности дублирует вектор X.
Далее для каждого нейрона в слое распознавания вычисляется свертка вектора его весов Вj и вектора C (рис. 11). Нейрон с максимальным значением свертки имеет веса, наилучшим образом соответствующие входному вектору. Он выигрывает конкуренцию и возбуждается, одновременно затормаживая все остальные нейроны этого слоя. Таким образом, единственная компонента rj вектора R (рис. 10) становится равной единице, а все остальные компоненты становятся равными нулю.
В результате, сеть APT запоминает образы в весах нейронов слоя распознавания, один нейрон для каждой категории классификации. Нейрон слоя распознавания, веса которого наилучшим образом соответствуют входному вектору, возбуждается, его выход устанавливается в единичное значение, а выходы остальных нейронов этого слоя устанавливаются в нуль.
Фаза сравнения. Единственный возбужденный в слое распознавания нейрон возвращает единицу обратно в слой сравнения в виде своего выходного сигнала rj. Эта единственная единица может быть визуально представлена в виде «веерного» выхода, подающегося через отдельную связь с весом tij на каждый нейрон в слое сравнения, обеспечивая каждый нейрон сигналом рj, равным величинеtij (нулю или единице) (рис. 13).
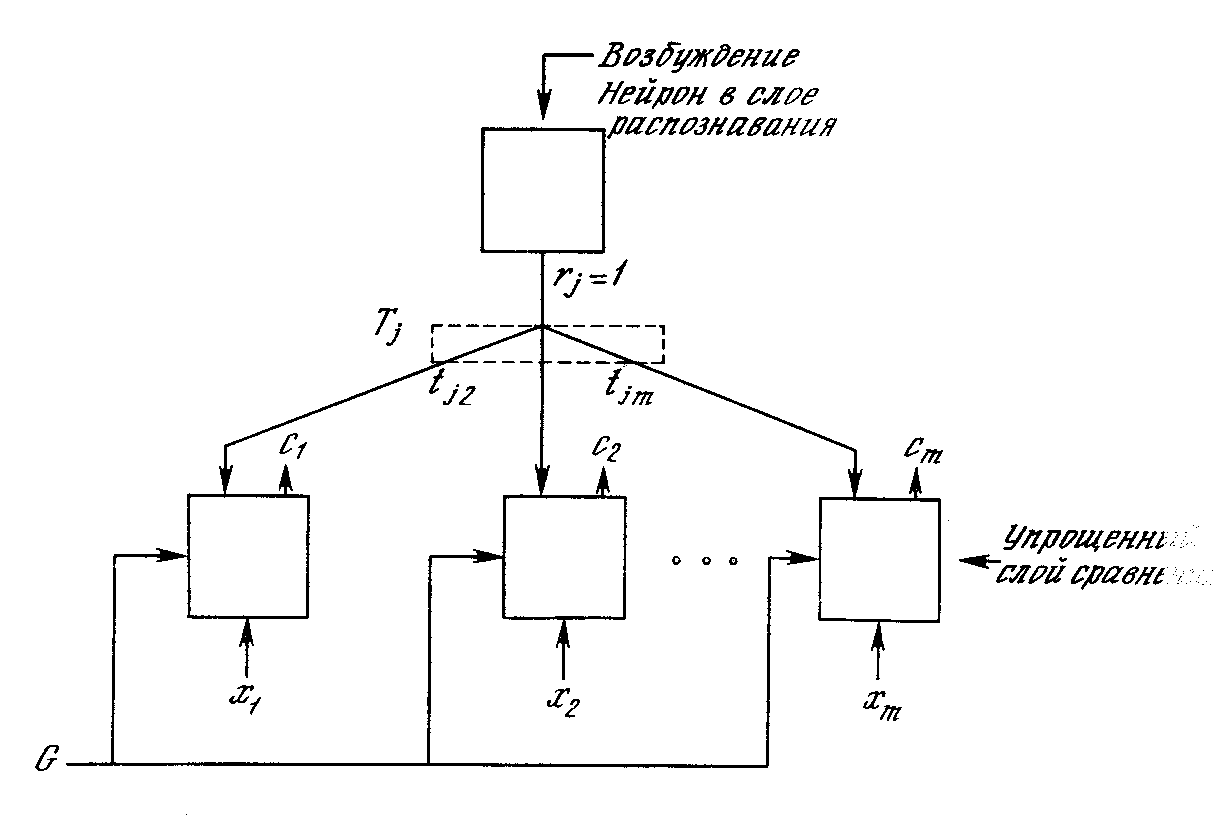
Рис. 13. Путь сигнала отдельного возбужденного нейрона в слое распознавания
Алгоритмы инициализации и обучения построены таким образом, что каждый весовой вектор Тj имеет двоичные значения весов; кроме того, каждый весовой вектор Вj представляет собой масштабированную версию соответствующего вектора Тj. Это означает, что все компоненты P (вектора возбуждения слоя сравнения) также являются двоичными величинами.
Так как вектор R не является больше нулевым, сигнал G1 устанавливается в нуль. Таким образом, в соответствии с правилом двух третей, возбудиться могут только нейроны, получающие на входе одновременно единицы от входного вектора X и вектора P.
Другими словами, обратная связь от распознающего слоя действует таким образом, чтобы установить компоненты C в нуль в случае, если входной вектор не соответствует входному образу, т. е. если X и P не имеют совпадающих компонент.
Если имеются существенные различия между X и P (малое количество совпадающих компонент векторов), несколько нейронов на фазе сравнения будут возбуждаться и C будет содержать много нулей, . в то время как X содержит единицы. Это означает, что возвращенный вектор P не является искомым и возбужденные нейроны в слое распознавания должны быть заторможены. Это торможение производится блоком сброса (рис. 9), который сравнивает входной вектор X и вектор C и вырабатывает сигнал сброса, если степень сходства этих векторов меньше некоторого уровня. Влияние сигнала сброса заключается в установке выхода возбужденного нейрона в нуль, отключая его на время текущей классификации.
Фаза поиска. Если не выработан сигнал сброса, сходство является адекватным, и процесс классификации завершается. В противном случае другие запомненные образы должны быть исследованы с целью поиска лучшего соответствия. При этом торможение возбужденного нейрона в распознающем слое приводит к установке всех компонент вектора R в 0, G1 устанавливается в 1 и входной вектор X опять прикладывается в качестве C. В результате другой нейрон выигрывает соревнование в слое распознавания и другой запомненный образ P возвращается в слой сравнения. Если P не соответствует X, возбужденный нейрон в слое распознавания снова тормозится. Этот процесс повторяется до тех пор, пока не встретится одно из двух событий:
Найден запомненный образ, сходство которого с вектором X выше уровня параметра сходства, т. е. S>r. Если это происходит, проводится обучающий цикл, в процессе которого модифицируются веса векторов Tj и Bj, связанных с возбужденным нейроном в слое распознавания.
Все запомненные образы проверены, определено, что они не соответствуют входному вектору, и все нейроны слоя распознавания заторможены. В этом случае предварительно не распределенный нейрон в распознающем слое выделяется этому образу и его весовые векторы Bj и Tj устанавливаются соответствующими новому входному образу.
Проблема производительности. Описанная сеть должна производить последовательный поиск среди всех запомненных образов. В аналоговых реализациях это будет происходить очень быстро; однако при моделировании на обычных цифровых компьютерах этот процесс может оказаться очень длительным. Если же сеть APT реализуется на параллельных процессорах, все свертки на распознающем уровне могут вычисляться одновременно. В этом случае поиск может быть очень быстрым.
Время, необходимое для стабилизации сети с латеральным торможением, может быть длительным при моделировании на последовательных цифровых компьютерах. Чтобы выбрать победителя в процессе латерального торможения, все нейроны в слое должны быть вовлечены в одновременные вычисления и передачу. Это может потребовать проведения большого объема вычислений перед достижением сходимости. Латеральные тормозящие сети, аналогичные используемым в неокогнитронах, могут существенно сократить это время.
- 2.4.5 Теоремы APT
Наиболее важные теоремы, показывающие характеристики сетей APT:
После стабилизации процесса обучения предъявление одного из обучающих векторов (или вектора с существенными характеристиками категории) будет активизировать требуемый нейрон слоя распознавания без поиска. Эта характеристика «прямого доступа» определяет быстрый доступ к предварительно изученным образам.
Процесс поиска является устойчивым. После определения выигравшего нейрона в сети не будет возбуждений других нейронов в результате изменения векторов выхода слоя сравнения С; только сигнал сброса может вызвать такие изменения.
Процесс обучения является устойчивым. Обучение не будет вызывать переключения с одного возбужденного нейрона слоя распознавания на другой.
Процесс обучения конечен. Любая последовательность произвольных входных векторов будет производить стабильный набор весов после конечного количества обучающих серий; повторяющиеся последовательности обучающих векторов не будут приводить к циклическому изменению весов.
2.5 Выбор модели нейрона.
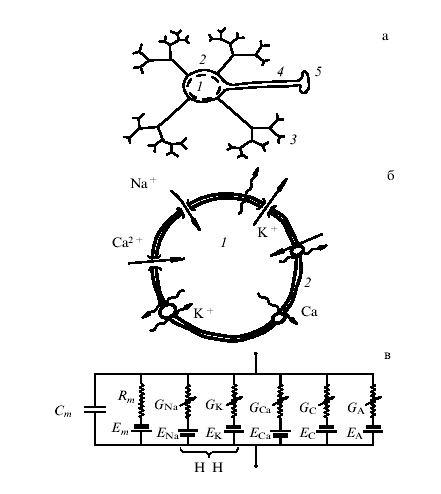
Рис. 14. (а) Схематическое изображение нейрона: 1 – тело клетки (сома), 2 – мембрана, 3 – дендриты, 4 – аксон, 5 – синаптическое окончание, (б) Ионные каналы в мембране нейрона: К, Na, Са – ионы калия, натрия, кальция, (в) Эквивалентная электрическая схема мембраны нейрона: GNa, GK, GCa,…— нелинейные ионные проводимости; Rm – сопротивление утечки; Ст – емкость мембраны; ENa, EK,…–равновесные потенциалы для соответствующих токов.
На рис. 14 схематически изображены нервная клетка и клеточная мембрана. Для построения адекватной динамической модели нейрона принципиально, что окружающая его мембрана нередко представляет собой эквипотенциальную поверхность. Поэтому, несмотря на вполне макроскопические размеры нейрона, при анализе его электрической активности (частота 4-60 Гц) нервную клетку можно рассматривать как сосредоточенную в пространстве систему. Другими словами, переменные, описывающие состояние нейрона (мембранный потенциал, концентрацию тех или иных ионов и т.д.), можно рассматривать как функции только времени. Другой важный вопрос связан со способом описания активности нейронов. Поскольку состояние нейрона определяется неравновесной диффузией различных заряженных ионов, для моделирования его активности, вообще говоря, следует использовать кинетическое описание. Однако, когда мы интересуемся нейроном как генератором низкочастотных электрических пульсаций, такое описание, очевидно, избыточно. Для построения соответствующей теории вполне достаточно уравнений для средних по времени t0 << Т (Т — характерный период электрической активности нейрона) динамических переменных: мембранного потенциала и макроскопических ионных токов. При этом нейрон можно рассматривать как нелинейную электрическую цепь из RC-элементов. Источником энергии для работы этой диссипативной системы служат биохимические процессы, связанные со взаимодействием внутриклеточной и межклеточной сред.
Осцилляторная активность нейрона определяется тем, что это неравновесная система с разнообразными обратными связями, в том числе и запаздывающими. Именно благодаря этим обратным связям, закрывающим или открывающим ионные каналы в соответствующей фазе электрической активности мембраны, состояние нейрона, отвечающее потенциалу покоя, может стать неустойчивым, и он превращается в генератор. Такой генератор можно рассматривать как динамическую систему, в рамках которой микроскопическая кинетика проявляется лишь как малые флуктуации.
Нелинейные динамические модели нейронов, которые строятся для объяснения обнаруживаемых феноменов и предсказания новых (в чем, собственно, и состоит назначение теории), в значительной степени зависят от того нейрофизиологического эксперимента, на который они опираются. Так, для описания нейронов ЦГ обычно используются варианты классической модели Ходжкина-Хаксли (1952 г.), включая ее разнообразные обобщения, учитывающие дополнительные мембранные токи, или, наоборот, более упрощенные, использующие в качестве переменных мембранный потенциал V(t) и некоторые вспомогательные токи, описывающие процессы двух типов быстрые Ie(t) и медленные IM(t) (см., например, [13-15]).
Типичная обобщенная модель Ходжкина-Хаксли (в широком смысле conductance-based model) имеет вид
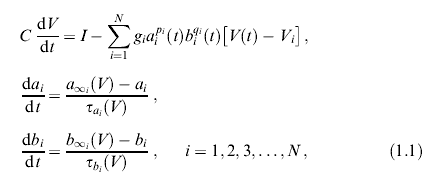
где V(t) — электрический потенциал клеточной мембраны, С характеризует электрическую емкость мембраны, i обозначает вид тока, текущего через мембрану, или, как говорят, тип ионного канала (калиевого, натриевого, кальциевого канала, канала утечки), gi — максимальная проводимость, Vi — равновесный потенциал (потенциал реверсии) для i-го канала, ai и bi — переменные, характеризующие активацию и инактивацию i-го канала, эти переменные можно рассматривать, например, как вероятности открытия или закрытия того или иного канала, a pi и qi представляют собой число управляющих частиц, достаточное, чтобы открыть или закрыть канал (обычно это целые числа от нуля до четырех). a∞i (V) и b∞i(V) — стационарные состояния уровня активации и инактивации, они зависят от V сигмоидным образом, так же как и характерные времена релаксации фai(V) и фai(V). В классической работе Ходжкина и Хаксли [14] N = 3.
Сейчас популярны и более простые модели подобного типа. Одна из них — модель Морриса-Лекара [15]:
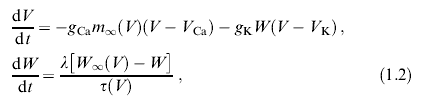
где m∞(V), W∞(V), ф(V) — функции сигмоидного типа. Здесь учтена всего лишь одна переменная W, описывающая активацию нейрона. Естественно, что в рамках динамической модели с двумерным фазовым пространством невозможно описать все детали динамики нейрона и, в первую очередь, хаотические колебания мембранного потенциала клетки, наблюдаемые в различных экспериментах [16, 17] (поскольку странный аттрактор не может быть вложен в двумерное пространство). Поэтому сейчас весьма широко используются трехмерные модели, также опирающиеся на формализм Ходжкина-Хаксли. Это, например, модель Чэй [18] и др.
Формализм Ходжкина и Хаксли, основанный на детальном анализе ионного транспорта через мембрану, получил широкое распространение. Но весьма продуктивны и феноменологические модели, описывающие основные особенности динамики нейронов. Одна из моделей такого типа — модель Розе-Хиндмарш [19] (более подробно см. раздел 3):
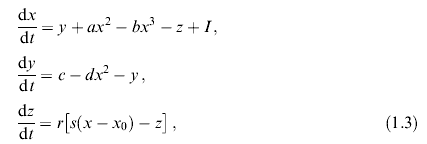
где х – мембранный потенциал, у характеризует "быстрые" токи (например, калиевые и натриевые), а z – "медленные" токи, I – внешний ток, а, Ь, с, d, r, s, х0 – постоянные параметры.
При обсуждении динамических процессов в коре головного мозга наиболее часто используется модель нейронной активности Вилсона и Кована (1972 г.), учитывающая взаимодействие двух связанных популяций нейронов – подавляющих и возбуждающих [20]:
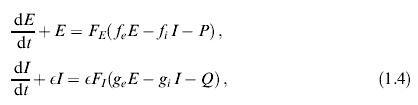
где Е и I – безразмерные величины, характеризующие активность возбуждающих и тормозящих нейронов соответственно. Здесь параметр е < 1, поскольку постоянные времени для торможения, как правило, больше характерных времен возбуждения, F – функция сигмоидного типа: F=l/(l+e-x) или F= 1/2 + (1/р) arctanx.
При моделировании больших ансамблей нейронов часто используют и совсем простые точечные модели в виде фазовых осцилляторов, к которым сводятся системы осцилляторов общего вида с периодическим поведением и слабыми парными связями (см., например, [21], обзор [22]):
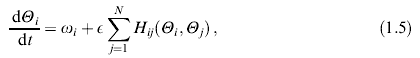
или еще более простые модели переключательного, спинового, типа, подобные тем, которые широко применяются в теории фазовых переходов.
Описанные выше модели нейронов дублируют именно физиологические и анатомические особенности отдельного нейрона. Но при создании нейронной сети нет необходимости в таком точном воспроизведении естественного нейрона. Необходим нейрон, удовлетворяющий поставленным требованиям, и не усложненный реализацией лишних в рамках поставленной задачи физиологических особенностей, так как это будет негативно отражаться на быстродействии сети. Необходима упрощенная, но подходящая для поставленной задачи распознавания модель.
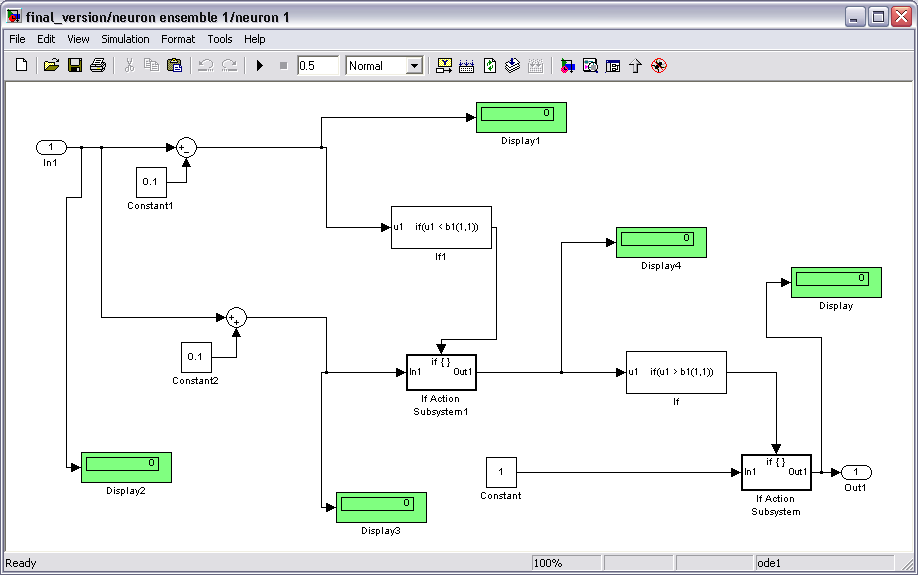
В поставленной задаче необходим пороговый, импульсный нейрон, удовлетворяющий требованию пластичности и стабильности. Для решения этой задачи я взяла двухпороговый нейрон (рис. 15).
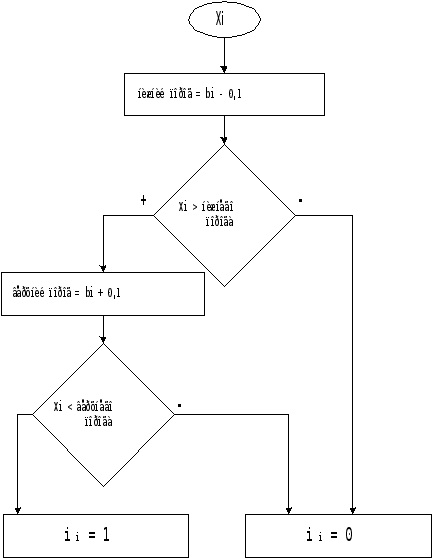
Рис.15. Двухпороговый нейрон.
При прохождении входным сигналом нижнего порога, и не превышении верхнего, нейрон срабатывает и генерирует импульс.
После обучения нейронного ансамбля, он будет узнавать только сигнал, мало отличающийся от запомненного. Т.е. ансамбль будет генерировать положительный импульс только в случае резонанса входного сигнала и сигнала, которому обучен ансамбль (рис. 16).
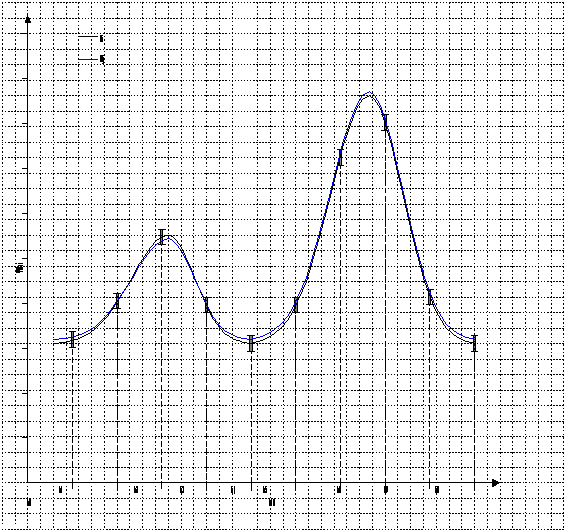
Рис.16. Резонанс.
2.6 Результат работы
- 2.6.1 Реализация ВРТ в среде Matlab с использованием пакета Simulink
Заключение
Архитектура ВРТ сконструированы по принципу биологического подобия; это означает, что ее механизмы во многом соответствуют механизмам мозга (как мы их понимаем). Однако они могут оказаться не в состоянии моделировать распределенную память, которую многие рассматривают как важную характеристику функций мозга. Экземпляры ВРТ представляют собой «бабушкины узелки»; потеря одного узла разрушает всю память. Память мозга, напротив, распределена по веществу мозга, запомненные образы могут часто пережить значительные физические повреждения мозга без полной их потери.
Кажется логичным изучение архитектур, соответствующих нашему пониманию организации и функций мозга. Человеческий мозг представляет существующее доказательство того факта, что решение проблемы распознавания образов возможно. Кажется разумным эмулировать работу мозга, если мы хотим повторить его работу. Однако контраргументом является история полетов; человек не смог оторваться от земли до тех пор, пока не перестал имитировать движения крыльев и полет птиц.
Список использованных источников:
ibusiness
narcom
3. Экономическая часть
В дипломном проекте разрабатывается программа – волновая резонансная нейронная сеть, которая является частью программного обеспечения интеллектуального робота.
Данный раздел дипломного проекта посвящен решению следующих задач:
разработка плана создания программы;
определение затрат на разработку программы и ее цены;
3.1. План разработки программы
Библиотека работ имеет следующий вид, приведенный в Таблице 1.
Таблица 1
|
Наименование этапа |
Основные задачи и состав работ |
Время выполнения (в днях) |
| 1. Разработка ТЗ | 1) составление проекта ТЗ заказчиком; | 20 |
| 2) проработка проекта ТЗ исполнителем; | 10 | |
| 3) согласование и утверждение ТЗ | 10 | |
| 2. Эскизное проектирование | 1) изучение научно-технической информации; | 10 |
| 2) выбор элементной базы разработки; | 5 | |
| 3) выбор основных программных решений | 10 | |
| 4) разработка структурных и функциональных схем программы; | 10 | |
| 3. Техническое проектирование | 1) разработка принципиальных схем; | 15 |
| 2) уточнение основных параметров программы по результатам прогнозирования; | 5 | |
| 3) уточнение основных параметров программы после изучения научно-технической информации; | 5 | |
| 4) программирование и отладка с учетом принципиальных схем | 30 | |
| 5) программирование и отладка с учетом основных параметров изделия | 25 | |
| 4. Тестирование программы | 10 | |
| 5. Проверка соответствия работы опытного образца требованиям ТЗ | 5 | |
| 6. Объединение с остальными частями интеллектуального робота | 15 |
Библиотека событий приведена в таблице 2
Таблица 2
| 0. Начало работ |
| 1. Проект ТЗ заказчика готов |
| 2. проработка проекта ТЗ исполнителем завершена |
|
Если Вам нужна помощь с академической работой (курсовая, контрольная, диплом, реферат и т.д.),
обратитесь к нашим специалистам. Более 90000 специалистов готовы Вам помочь.
Бесплатные корректировки и доработки. Бесплатная оценка стоимости работы.
Нужна помощь в написании работы?
Мы - биржа профессиональных авторов (преподавателей и доцентов вузов). Пишем статьи РИНЦ, ВАК, Scopus.
Помогаем в публикации. Правки вносим бесплатно.
Похожие рефераты: |