Теоретичні основи генно-модифікованих продуктів
1.2 ГЕНЕТИЧНИЙ КОД
З моделі структури ДНК, запропонованої Уотсоном і Кріком, відомо, що генетична інформація передається за допомогою якоїсь специфічної послідовності нуклеотидів її молекули. Вперше питання про код було поставлене Гамовим у 1953 р.
Початок прямого генетико-біохімічного аналізу кодонів було покладено в 1961 р. Ніренбергом та Маттеї, які створили найпростіші синтетичні полімери й замінили ними нативні молекули іРНК в системі компонентів клітин бактерій та суміші амінокислот. У суміші кожного типу одна з амінокислот була помічена радіоактивним вуглецем С14, інші дев'ятнадцять не мали позначення. Було встановлено, що синтетичний полірибонуклеотид, складений тільки з урацилу (поліуридилова кислота - УУУУУ), визначає синтез білка, в якому кожна амінокислоти була фенілаланіном. Виходячи з цього, встановили, що триплет УУУ є кодоном для фенілаланіну.
У наступних подібних експериментах було визначено, що поліаденінова кислота містить код для лізину, а поліцитидинова - для проліну. Наступні досліди, де як штучні ІРНК виступали полінуклеотиди змішаного складу (наприклад, полі-АУ), виявили зв'язок між рядом інших поєднань нуклеотидів та конкретними амінокислотами.
Синтетичні полінуклеотиди створюють з використанням ферменту полінуклеотидфосфорилази, який зв'язує нуклеотиди у випадковому порядку. Для перших експериментів цього було достатньо, оскільки в них використовували синтетичні полінуклеотиди, складені з одного типу нуклеотидів. Потім були знайдені шляхи складніших синтезів молекул з різних нуклеотидів із різними положеннями.
Нову методику широко використав Очоа із співробітниками, що дало їм можливість визначити триплети для всіх 20 амінокислот (табл.4). При цьому було зазначено, що код має вироджений характер, який означає здатність для однієї й тієї ж кислоти бути кодованою кількома різними триплетами. Наприклад, є амінокислоти, які мають по шість кодонів; п'ять амінокислот, кожна з яких кодується чотирма різними кодонами. Так, аланін кодується триплетами ГЦУ, ГЦЦ, ГЦА, ГЦГ, куди в усіх випадках входять нуклеотиди цитозину та гуаніну. Поряд з тим є амінокислоти, що кодуються трьома, двома і тільки дві - одним триплетом азотистих основ.
Крім того, триплети УАА, УАГ, УГА не кодують амінокислоти, а є своєрідними "крапками" в процесі зчитування інформації. Якщо процес синтезу наближається до такої "крапки" в молекулі ДНК, синтез даного поліпептидного ланцюга припиняється. Після "крапки" починає синтезуватися нова молекула білка. Процес зчитування інформації відбувається в одному і тому ж напрямі. Так, якщо в молекулах азотисті основи розміщені в такому порядку: ААА, ЦЦЦ, УГУ, УЦУ, то це значить, що закодовані такі послідовно розміщені амінокислоти: лізин (ААА), пролін (ЦЦЦ), цистин (УГУ), серін (УЦУ). Саме в цій послідовності вони повинні розміщуватися в поліпептидному ланцюзі при синтезі білка. Якщо в першому триплеті ІРНК буде втрачено один аденін, то порядок основ набуває вигляду ААЦЦЦУГУУЦУ. Внаслідок цього склад всіх триплетів змінюється. Так, перший стане не ААА, а ААЦ. Подібний триплет кодує амінокислоту аспарагін, а не лізин, як було раніше. Другий стане вже не ЦЦЦ, а ЦЦГ і так далі. У деяких умовах іn vitro код може бути двозначним, тобто один триплет може кодувати кілька амінокислот. Кодон УУУ в звичайних умовах кодує амінокислоту фенілаланін. Проте якщо рибосоми обробити стрептоміцином, то цей кодон починає також кодувати ізолейцин і серин. Знижена температура та висока концентрація іонів Мg++ також зумовлюють двозначність у дії кодонів.
Таблиця
Генетичний код послідовності нуклеотидів у триплетних кодонах інформаційної РНК, який визначає певну амінокислоту
| Перший | Третій нуклеотид | (на 3'- кінці | кодону) | |||||
| нуклеотид (на 5'-кінці кодону) | Другий гуклео-тид | У | ц | А | г | |||
| У | У | Фен | Фен | Лей | Лей | |||
| ц | Сер | Сер | Сер | Сер | ||||
| А | Тир | Тир | Термінатор (знак закінчення) | Термінатор (знак закінчення) | ||||
| Г | Цис | Цис | Арг | Три | ||||
| У | Лей | Лей | Лей | Лей | ||||
| Ц | Ц | Про | Про | Про | Про | |||
| А | Гіс | Пс | Глі | Глі | ||||
| Г | Арг | Арг | Арг | Арг | ||||
| У | Іле | Іле | Іле | Мет | ||||
| А | Ц | Тре | Тре | Тре | Тре | |||
| А | Асп | Асп | Ліз | Ліз | ||||
| Г | Сер | Сер | Арг | Арг | ||||
| У | Вал | Вал | Вал | Вал | ||||
| г | Ц | Ала | Ала | Ала | Ала | |||
| А | Асп | Асп | Глу | Глу | ||||
| Г | Глі | Глі | Глі | Глі | ||||
Генетичний код характеризується неперекритістю. Цей принцип був доведений дослідженням мутацій, які порушують синтез білків. У випадку перекриття коду зміна в одній парі нуклеотидів неминуче повинна спричинити порушення в трансляції трьох амінокислот, бо у коді, що перехрещується, кожний з нуклеотидів входить до трьох кодонів. Насправді експериментами доведено, що мутації змінюють транслювання тільки однієї амінокислоти, що чітко вказує на неперекритість коду. Для поняття принципів генетичного коду значний інтерес являють дані по заміщенню амінокислот внаслідок зміни всередині триплетів.
У Е. соlі (кишкової палички, яка є в кишечнику всіх організмів) були одержані шість мутантів, що мали різні дефекти у триптофансинтетазі, причиною яких стали заміщення гліцину в специфічній точці поліпептидного ланцюга. Ці мутації відрізняються від попереднього стану зміною одного нуклеотиду. Якщо ця гіпотеза правильна, то вона може бути перевірена в дослідах по рекомбінації, оскільки кросинговер всередині триплетів повинен змінювати його код. Наприклад, схрещування між мутацією В, кодуючою аргінін, та мутацією С, кодуючою валін, повинні дати рекомбінантні триплети, які будуть кодувати серин та гліцин: мутант В - УГЦ -аргінін; мутант С - УУГ - гліцин.
У випадку кросинговеру на іншій ділянці (ГЦ і УГ) повинні з'явитися рекомбінанти - перший блок кросинговеру: ЦГГ - дикий тип - гліцин; другий -додатковий кросинговер: УУЦ - мутант - серин. У наступних дослідах ці рекомбінанти були виявлені і повністю відповідали передбаченням.
У випадках серповидноклітинності гемоглобіну у людини серед 300 амінокислот, які входять до складу гемоглобіну, тільки одна замінена мутацією. У гемоглобіні С в цьому місці з'являється інша амінокислота - лізин (рис.1)
(Численними дослідженнями встановлена дивовижна універсальність генетичного коду. Він однаково проявляє себе в системах, одержаних з вірусів, бактерій, водоростей та ссавців. Очевидно, він єдиний для всього органічного світу, що є одним з найпереконливіших доказів загального походження всієї живої природи.
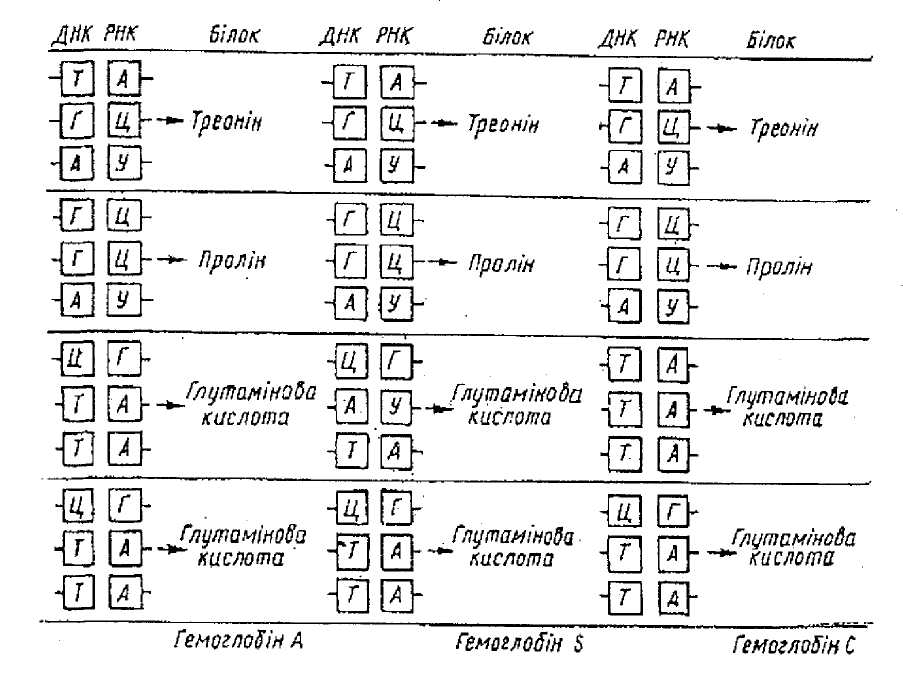
Рис. 1 Зміна нуклеотидів у кодових триплетах у цистроні, що визначає молекулу гемоглобіну у людини
1.3 СТРУКТУРНА ОРГАНІЗАЦІЯ ГЕНОМА
Під геномом розуміють сукупність носіїв спадкової інформації, що міститься в клітині. ДНК прокаріот оточена слабо зв’язаним з нею основним білком і ніяк структурно не організована. Характерна морфологія еукаріотичних хромосом свідчить, що вони організовані значно складніше, ніж: геноми прокаріотичних клітин. У еукаріотів більша частина ДНК знаходиться у міцному комплексі з білками та утворює нуклеопротеїдні волокна, які називаються хроматином. У переважній більшості клітин хроматинові білки представлені гістонів. Гістоні –цс невеликі за розміром (50-200 амінокислотних залишків) основні білки з позитивним зарядом (зумовлений наявністю трьох амінокислот: аргініну, лізину, гістидину). Утворення комплексу з ДНК (що має негативний заряд) відбувається за рахунок іонних зв’язків між; фосфатною групою полінуклеотидного ланцюга та аміногрупою поліпептиду. Гістоні розділяють на п’ять типів: Н1, Н2А, Н2В, НЗ, Н4, які відрізняються один від одного кількістю амінокислот та відношенням лізин : аргінін. Цікаво, що структура гістонів НЗ та Н4 з проростків гороху і з тімусу теляти, як довели Сміт та Де Ланж, дуже подібні, тобто послідовність амінокислот збереглася протягом приблизно 3-6*108 років з часу розділення всього живого на рослини та тварини. Ця консервативність свідчить, що зазначені гістони виконують дуже важливу функцію, яка виникла на початку еволюції еукаріот і збереглася до нашого часу. Білкам властива здатність до зміни заряду, форми молекул, до утворення водневих зв’язків, що може мати важливе значення у регуляції доступності ДНК до реплікації та транскрипції.
Слід зазначити, що, на відміну від ядерної ДНК, ДНК мітохондрій та хлоропластів не зв’язана з гістонів (як ДНК прокаріот), що підтверджує гіпотезу симбіотичного походження цих органоїдів.
Виходячи з даних, одержаних різними методами, Корнберг (1974) висловив припущення, що хроматин складається з повторюваних субодиниць, кожна з яких містить 200 пар нуклеотидів та по дві молекули гістонів Н2А, Н2В, НЗ, Н4. Повторювані одиниці називають нуклеосомами. Більша частина ДНК намотана на гістонову серцевину, решта, так звана міжнуклеосомна ДНК, з’єднує сусідні нуклеосоми та забезпечує гнучкість гістонів нитки. Таким чином, хроматинова нитка являє собою гнучкий ланцюг гістонів, що нагадує намистини на нитці.
В 60-х роках цього століття почались інтенсивні дослідження по локалізації конкретних генів на хромосомах для побудови хромосомних карт. Як встановлено, в геномі людини нараховується близько 500 тис. різних структурних генів, тобто генів, в яких закодована інформація про амінокислотну послідовність білків; кількість ДНК в ядрі клітини така, що відповідає числу генів, яка в 50-100 раз більша.
Значна кількість ДНК приходиться на повторювані послідовності нулеотидів, які можуть грати в хромосомі регуляторну, структурну або функціональну роль.
Реєструючи порушення, які викликаються мутаціями генів, вдалося виявити більше 900 генних локусів із загального числа 500 тис. структурних генів (геном людини), до якого входять гени, які кодують всі ферменти внутрішнього метаболізму, всі структурні білки та всі білки, яким властиві спеціальні функції, такі як гемоглобіни та імуноглобуліни, а також ферменти, які беруть участь в утворенні фібрил колагену (її роколагенпептидаза, глюкозилтрансфераза, лізнлоксидаза) та в утворенні нуклеїнових кислот (ДНК- та РНК-полімераза).
Істотна частина постульованої кількості генів приходиться на регуляторні гени.
Положення генних локусів на хромосомах людини визначали на основі аналізу гетерозигот та вивчення родин (варіації в межах виду), а пізніше – за допомогою гібридних клітин, які утворюються в результаті злиття соматичних клітин. Зручним інструментом досліджень був також метод гібридизації нуклеїнових кислот: таким засобом на хромосомах 13, 14, 15, 21 та 22 були локалізовані гени 183 та 283 рРНК, а на хромосомі 1 –гени 53 рРНК. Цим же методом встановлено, що гени а- та р-ланцюгів гемоглобіну знаходяться на хромосомах 2 та 4 або 5. Метод гібридизації нуклеїнових кислот дозволяє картувати гени гістонів, імуноглобулінів та колагенів.
Клонування нуклеїнових кислот та наступна гібридизація їх з фрагментами хромосом також можуть бути корисними для точної локалізації генів та побудови докладної карти геному.
Результати подібних досліджень будуть досить важливими для прогресу медицини, який буде залежати від повного розуміння функціонування геному. Дійсно, ряд хвороб пов’язані з наявністю дефектів певних генів. Лікування або попередження генетичних порушень потребує загальних знань структури, функціонування та регуляції роботи генів.
1.4 КЛОНУВАННЯ ГЕНІВ
Основою проведення генно-інженерних досліджень є молекула ДНК, що показана на схемах (рис. 2-3 ).При цьому роботи виконують в певній послідовності : спочатку виділяють гени з окремих клітин або синтезують їх поза організмом, потім включають нові гени у вектор, поєднують ДНК гена і вектора і одержують рекомбінантну ДНК; далі переносять визначені гени в геном клітини-хазяїна, проводять копіювання і розмноження виділених або синтезованих генів у складі вектора (клонування генів) і одержують генний продукт шляхом експериментальної експресії чужорідного гена в реципієнтній клітині. Відомо два шляхи виділення генів та створення ргкомбінантної ДНК.
Перший - за допомогою хімічного синтезу, а другий, більш поширений, грунтується на використанні особливих ферментів (рестриктаз), які мають властивість розпізнавати чужорідну ДНК, що проникла в організм, і розщеплювати її у відповідних ділянках. В результаті утворюються фрагменти різноманітних розмірів, які різняться між собою за довжиною. Відомо близько 500 ферментів рестриктаз і кожний розщеплює ДНК специфічно. Хоча багато з них за специфічністю подібні, проте кількість сайтів (ділянок) розщеплення становить близько 120. Зазначені ферменти позбавлені видової специфічності. Завдяки цьому можна поєднувати в одне ціле фрагменти ДНК будь-якого походження і подолати природний видовий бар'єр. На рисунку 5 схематично зображено дію ферменту на молекулу ДНК, що зумовлює відокремлення від неї частини нуклеотидів.
Частини й розриви ниток ДНК лігизують (склеюють) за допомогою ферменту лігази. Особливістю виділених ділянок нуклеотидів (генів) є так звані липкі кінці, через що їх можна приєднати до ділянок ДНК плазмід (для рослин і бактерій) або фагів (тварин). Таким чином створюється вектор для перенесення виділених генів у клітину-реципієнт.
Відомо інший шлях одержання фрагментів ДНК з липкими кінцями. Для цього виділені або штучно синтезовані ділянки ДНК обробляють ендонуклеазою, яка укорочує її з обох боків. Потім за допомогою ферменту полінуклеотидтрансферази добудовують до цих кінців ділянки аденінових і тимідинових нуклеотидів. Одержану молекулу рекомбінантної ДНК використовують для перенесення чужорідного гена в бактеріальну клітину. Така схема була використана для генів інсуліну, інтерферону, імуноглобуліну.
Молекули ДНК, які мають власний апарат реплікації і здатні доставляти в клітину потрібні гени, реплікувати їх, були названі векторами. Найбільш поширені вектори – це різноманітні плазміди, які часто спостерігаються у бактерій. Вектори для клітин ссавців будуються на основі вірусів, адено- та ретровірусів.
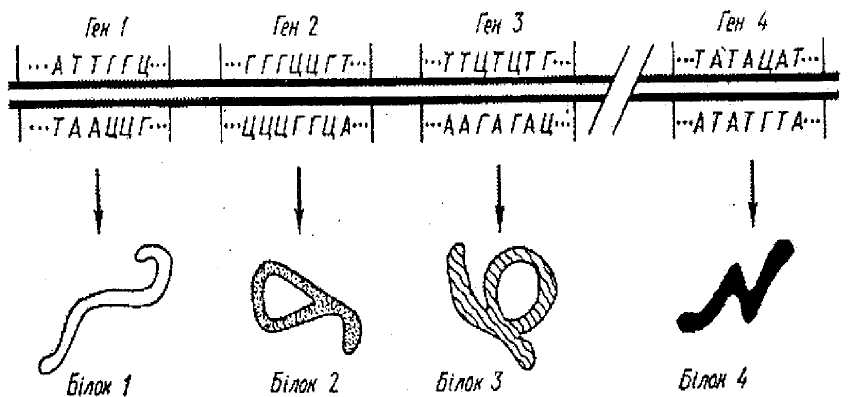
Рис.3 Молекула ДНК, поділена на гени
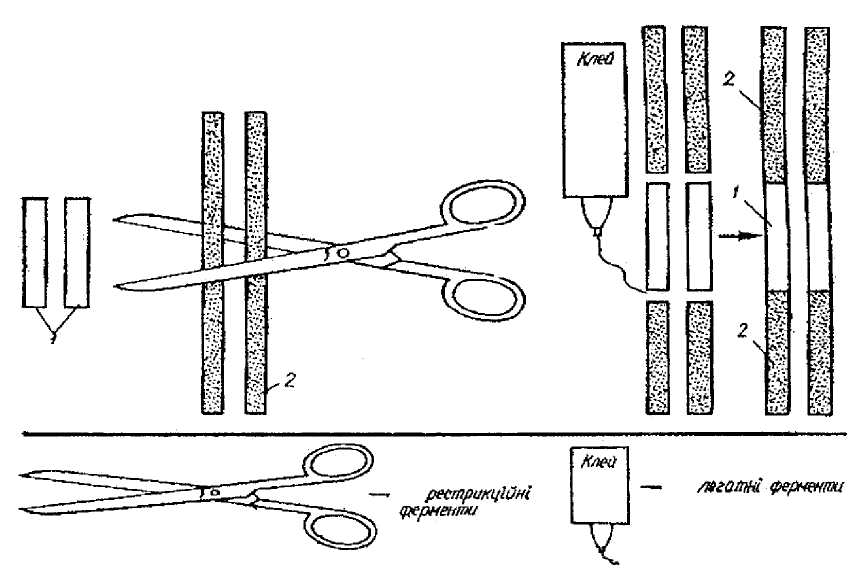
Рис.4 Процес утворення рекомбінантної ДНК
1-бактеріальна ДНК; 2-рослинна ДНК.
Потрібно враховувати, що наявність навіть введення гена у хромосому організма-хазяїна ще не дає можливості одержувати продукти його синтезу.
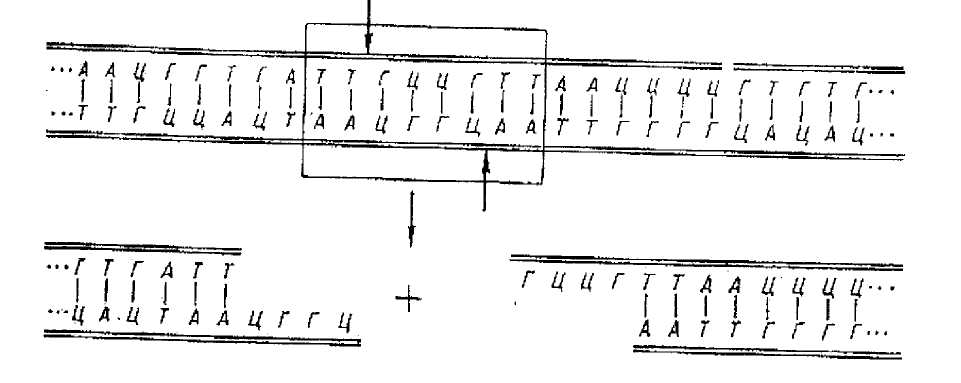
Рис.5 Рестрикційні ферменти розпізнають послідовності, виділені прямокутником, і вирізують ДНК на місці, зазначеному стрілками
Для того, щоб ген міг функціонувати, він повинен поряд з частиною, де закодована інформація, мати ще регуляторну ділянку. Це, так звані промотор та термінатор. З промотора починається зчитування інформації (транскрипція), а в термінаторі закодовано закінченння транскрипції з даного гена. Нині створено цілий «арсенал» клонованих промоторів, які дають можливість забезпечити проявлення генів у різних типах клітині.
Слід враховувати також, що не всі молекули плазмідної ДНК можуть мати вставки чужої ДНК і відповідно не будуть рекомбінантними. Більшість плазмід відновлює вихідну кільцеву структуру. Тому, перш за все необхідно відібрати бактерії, що містять рекомбінантні плазміди.
Для відбору рекомбінантних ДНК найбільш поширеною є система, при якій чужорідну ДНК вбудовують в частину плазмідного гена, що кодує стійкість проти певного антибіотика, наприклад, ампіциліну. У випадку вбудовування чужорідної ДНК цей ген перестає нормально функціонувати, що свідчить про наявність рекомбінантної ДНК.
і Молекули рекомбінантної плазміди розмножуються в клітині. В процесі ділення бактеріальної клітини вони розподіляються між дочірними клітинами і в кожній з них знову відновлюють свою кількість. В результаті створюються колонії бактерій, кожна з яких містить багато копій рекомбінантної ДНК. У кожному такому клоні міститься лише один відрізок ДНК тварини або рослини, який випадково потрапив у вихідну бактерію.
При цьому такий клон містить 1-2 гени, а якщо врахувати, що клонів значна кількість, то вони теоретично представляють всі гени, що є в геномі тварини.
Отже, для створення банку генів кроля, що характеризує всю молекулу ДНК або весь геном, необхідно 920000 клонів, для банку класичного об'єкта генетичної інженерії - кишкової палички - 1300. Для генома ссавців потрібен банк генів з фрагментами ДНК 0,8-1 млн. клонів)
Перший банк генів було створено для Е. соlі у 1976 р; потім -для інших видів, в тому числі і для великої рогатої худоби. Також було створено бібліотеки клонів ДНК гіпофіза і гормона росту .
Велике значення мало одержання за допомогою генетичної інженерії інтерферону для людини. Відомо, що інтерферон - це білок, який характеризується універсальною антивірусною дією. Але до останнього часу не була відома амінокислотна послідовність цього білка та не розроблена методика одержання його у чистому вигляді. Тому на першому етапі в крові людини виділили інтерферонову інформаційну РНК, на якій за допомогою ревертази синтезували ген інтерферону. На другому етапі зазначений ген ввели в плазміду і одержали високопродуктивний у-штам бактерій, що виробляв штучний інтерферон. Після того, як була визначена його амінокислотна послідовність та склад нуклеотидів, цей ген було синтезовано хімічним шляхом.
- ГЕННО-ІНЖЕНЕРНІ ПІДХОДИ ДО СТВОРЕННЯ ІНТЕНСИВНИХ ТЕХНОЛОГІЙ В ХАРЧОВІЙ ГАЛУЗІ
Сформована у світі ситуація з м'ясною сировиною приводить до дефіциту тваринного білка в раціоні харчування населення. Тому в технології виробництва харчових продуктів досить актуальне комбінування білків тваринного й рослинного походження, які економічно сполучать у собі високу харчову цінність і забезпечують виробництво готової продукції відповідно до вимог споживача до її якості.
Створення комбінованих варених ковбасних виробів з використанням функціональних рослинних білків не суперечить рекомендаціям Комісії «Кодекс Аліментариус» ФАО/ВІЗ, у яких, зокрема, декларується їхня кількість, як замінників м'яса, не більше 50%. По технологічних, органолептичних і фізико-хімічних показниках такі вироби повинні бути адекватні групі традиційних варених ковбасних виробів.
Останнім часом в усім світі зросло споживання генетично модифікованих джерел (ГМИ) рослинної сировини. В 2005р. загальна площа посівних площ під трансгенними культурами у світі перевищила 90 млн. га.
Домінуючими трансгенними культурами, використовуваними як продовольча сировина, є соя, рапс і кукурудза. Лідируюче положення в цьому ряді займають білки сої завдяки їхнім функціональним властивостям, харчовій цінності й низкою собівартості.
У Росії після проходження відповідної процедури реєстрації дозволена до ввозу, переробці й використанню в продуктах харчування, що випускається у світі в промислових масштабах генетично модифікована (ГМ) соя, стійка до гербіцидів, а також продукти її переробки.
У цей час серед продуктів переробки ГМ сої, найбільше часто використовуваних у виробництві м'ясних виробів, лідирують соєві білкові концентрати. Активне застосування в технологіях виробництва м'ясних продуктів ГМ соєвих білкових концентратів (ГМСК) обумовлено, насамперед, їх технологічною й економічною доцільністю. Але при такому широкомасштабному поширенні ГМСК, особливо гостро коштує питання підвищення якості й забезпечення безпеки продуктів з їхнім використанням.
У зв'язку із цим у даній статті представлені результати досліджень, спрямованих на забезпечення найбільш ефективного використання ГМСК у технології вироблення варених ковбас.
Відповідно до розпорядження головного державного санітарного лікаря РФ «Про порядок гігієнічної оцінки й реєстрації харчової продукції, отриманої з генетично модифікованих джерел» від 6 квітня 1999 р. №7, у МГУПБ групою співробітників під керівництвом акад. РАСХН Рогова И. А., проведена технологічна оцінка ГМ насінь сої, стійких до гербіцидів, що показала відсутність достовірних розходжень у властивостях випробуваних зразків і їх ізогенних аналогів на підставі того, що:
• вони не відрізняються по компонентному складі від контрольних зразків насінь сої;
• вихід білка, його амінокислотний і фракційний склад, а також термодинамічні параметри окремих фракцій практично збігаються для всіх досліджених зразків насінь сої;
• ліпіди, екстраговані з досліджених зразків насінь сої, мають приблизно однаковий жирнокислотний склад, характерний для даного виду сировини.
Було доведено, що генетична модифікація насінь сої не впливає на структурні характеристики її білкових і ліпідних складових.
Вивчення особливостей поводження ГМСК у реальних багатокомпонентних харчових системах у сполученні із традиційними білковими компонентами тваринного походження, на наш погляд, є логічним продовженням проведених раніше досліджень і досить актуально у світлі стрімкого розвитку сучасної біотехнології.
У зв'язку із цим нами були проведені дослідження кількісного впливу білкового концентрату на харчову цінність, фізико-хімічні й органолептичні характеристики комбінованої мясорослинної системи.
Досліджували якісні характеристики зразків, що містять від 20 до 35% суспензії ГМСК у складі рецептури. Як контроль використали варену ковбасу 1-го сорту «Їдальня», основними складеними компонентами рецептури якої є яловичина й свинина. Заміна м'ясної сировини була проведена з урахуванням вимог технології виробництва й економії сировини. Рецептури досліджуваних зразків представлені в табл. 1.
Сіль і спеції вносили відповідно до рецептури традиційного м'ясного продукту з розрахунку на основну несолону сировину.
У табл. 2 представлені результати якісних характеристик сирого фаршу, що містить різну кількість суспензії ГМСК.
Підвищення рівня внесення суспензії ГМСК приводить до перерозподілу у фарші масових часток основних макроживильних речовин: незначному збільшенню масових часток білка, вуглеводів, золи й зниженню змісту жиру у всіх зразках.
Абсолютні величини показника напруги стандартної пенетрації (НСП) для зразків, що містять 20 і 25% суспензії ГМСК, свідчать про те, що їхня структура ідентична структурі, властивому фаршу традиційних варених ковбас. Введення 30 і 35% суспензії ГМСК у рецептури негативно позначилося на структурі й, як наслідок, на зовнішньому вигляді досліджуваних зразків.
Жоден зі зразків не був лімітований по амінокислотному складі білка.
На наступному етапі проводили органолептичну оцінку термообробленого фаршу. Результати досліджень представлені в табл. 3.
Результати досліджень, наведені в табл. 3, свідчать про те, що практично всі зразки, за винятком 4-ого, одержали досить високі оцінки по таких органолептичних показниках, як цвіт, захід і смак готових продуктів. Найвищі оцінки одержали зразки 1 і 2 з 20 і 25% змістом суспензії ГМСК.
Найбільш прийнятної, з точки зору споживчих властивостей комбінованого м'ясного продукту, по харчовій цінності, структурно-механічним і органолептичним показникам, а також економічної ефективності, була рецептура 2, що містить 25% суспензії ГМСК.
На наступному етапі представлялося доцільним проведення порівняльного аналізу харчової цінності вареної ковбаси, виробленої по даній рецептурі з ковбасою «Їдальня»
1 -го сорту, рецептура якої не передбачає використання рослинного білка.
За аналогією з попередньою роботою досліджували якісні показники двох зразків:
1 - контрольний зразок (без рослинного білка);
2 - зразок, що містить суспензію ГМСК.
Введення суспензії ГМСК позитивно позначається на загальному розподілі складених компонентів і має деяку перевагу в порівнянні з контролем відносно масової частки жиру, зниження якого є позитивним чинником згідно із сучасними тенденціями в області здорового харчування.
Одним з основних показників, що визначають біологічну цінність харчових продуктів, є ступінь переварювання білків у шлунково-кишковому тракті протеолітичними ферментами. Результати визначення перетравності білків травними ферментами in vitro дають можливість передбачати ступінь утилізації білків організмом.
Можна відзначити, що варена ковбаса, рецептурним компонентом якої є суспензія ГМСК. характеризується трохи більше низьким значенням перетравності пепсином і трипсином у порівнянні з контролем, що пояснюється присутністю в складі суспензії ГМСК, також як і в його ізогенном аналогу, інгібіторів протеаз шлунково-кишкового тракту.
У цей час в усім світі росте виробництво харчових продуктів з генетично модифікованих джерел (ГМИ).
Тільки за період з 1996 по 2003 р. загальна площа під трансгенними культурами збільшилася в 40 разів.
Лідируючі позиції у виробництві ГМИ займають США (68%), Аргентина (11,8%), Канада (6%) і Китай (3%) [1]. Зрозуміло, що такі продукти проникають на ринок продовольства й у Росії. Наука, що дозволяє створювати ГМИ, - генна інженерія, що часто називають сучасною біотехнологією.
Генетично модифіковані організми - це живі організми, яким шляхом впровадження чужорідних генів були додані нові фенотипічні ознаки.
Ці фенотипічні ознаки ГМИ, невластиві вихідного виду, викликають побоювання в окремих фахівців, які затверджують, що такого роду втручання в природні природні процеси може згубно позначитися на споживачах генетично модифікованих продуктів. Неясний і екологічний збиток від такого виду діяльності.
Виробники ГМИ й ряд учених - біологів, генетиків, навпаки, декларують безпека даного виду продукції для здоров'я й життя людини.
Найчастіше трансгенной модифікації піддають сою. Соєві білкові препарати (борошно, текстурати, ізоляти, концентрати) широко використають у виробництві харчових продуктів. Переважна більшість м'ясних продуктів сьогодні містять у своєму складі соєві інгредієнти.
У цей час у промисловому масштабі випускається 9 ліній генетично модифікованої сої, стійкої до гербіцидів невиборчої дії - гліфосату (марка "Раунд Ап") і глюфосикату.
Міністерством охорони здоров'я й соціального розвитку РФ дозволено без обмеження використати в їжу продукти, що містять гліфосаттолерантну сою ліній 40-3-2 («Мон Санто», США), А 2704-12 і А 5547-127 («Байер Кроп Сайнс», Німеччина).
По дослідженнях Інституту харчування РАМН специфічний білок, що утвориться при генетичній модифікації сої, повністю руйнується в шлунково-кишковому тракті лабораторних тварин [2].
Відповідно до випробувань, проведеним у МГУ прикладної біотехнології, генетично модифіковані соєві продукти по своїх споживчих властивостях мало відрізняються від традиційної сировини [3]. Однак, оскільки безпека трансгенних продуктів не встановлена, у споживача повинен бути вибір між нативними продуктами й продуктами, отриманими за допомогою біотехнологічних методів.
Інформація про трансгенних компоненти в складі харчових продуктів повинна бути максимально відкритої для споживача. Тим часом дані моніторингу, проведені в РФ, показують, що виробники не завжди маркірують свою продукцію належним чином, часто не дають інформації для споживача про використання у виробництві продукту генетично модифікованих інгредієнтів [2].
Вивчення продовольчого ринку м. Хабаровська показало, що інформація про наявність ГМИ при маркуванні більшості харчових продуктів відсутній.
Нами досліджені 1400 зразків м'ясних, молочних і кондитерських продуктів вітчизняних і закордонних виробників, і не було виявлено інформації про зміст у них ГМИ, хоча, по даним Роспотребнадзора по Хабаровському краї, генетично модифіковані соєві препарати в край надходили.
Оборот генетично модифікованих продуктів у РФ регламентується рядом федеральних законів і нормативних актів, у тому числі законами «Про державне регулювання генно-інженерної діяльності»; «Про санітарно-епідеміологічне благополуччя населення»; «Про якість і безпеку харчових продуктів»; «Про захист прав споживачів».
Відповідно до доповнень до Санпін 2.3.2.1078-01 з 1 вересня 2002р. уведене обов'язкове маркування харчових продуктів, у виробництві яких використані ГМИ. При цьому нормативним документом Санпін 2,3.2.1842-2004 установлений граничний рівень маркування продуктів, які містять у рецептурі більше 0.9% компонентів із ГМИ.
Система оцінки безпеки харчової продукції із ГМИ припускає проведення моніторингу за оборотом такої продукції.
З метою попередження порушення санітарного законодавства при обороті харчових продуктів, отриманих із ГМИ, і відповідно до федеральних законів "Про санітарно-епідеміологічне благополуччя населення», «Про якість і безпеку харчових продуктів», "Про захист прав споживачів» організовані лабораторії при регіональних органах Роспотребнадзору.
Однак установлений порядок перевірки продукції на наявність ГМИ на етапі обов'язкової сертифікації малоефективний. Він не забезпечує надійного заслону обороту харчових продуктів із трансгенними інгредієнтами без відповідного маркування.
Крім того, здійснення робіт з ідентифікації ГМИ