Параметры функционирования митоКАТФ у животных с различной устойчивостью к гипоксии, а также у крыс, адаптированных к кислородному голоданию
В МХ УДФ (~20 мкМ) активирует митоКАТФ, и эта активация снимается глибенкламидом и 5-ГД (Рис. 4) [Mironova et al., 2004]. Концентрации УДФ, неоходимые для активации реконструированного в БЛМ митоKIR и целого канала в нативных МХ, одинаковы. Следовательно, участок связывания УДФ локализуется на канальной субъединице. Для активации цитоКАТФ нужны значительно большие концентрации этого препарата [Alekseev et al., 1998].
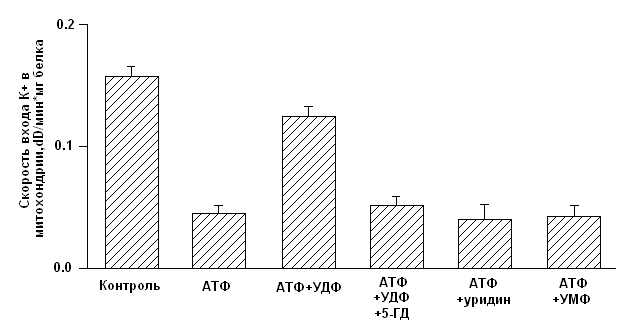
Рисунок 4. Активация УДФ целого митоКАТФ канала в нативных МХ [Mironova et al., 2004]
Ранее на моделях тотальной и регионарной ишемии изолированных перфузируемых сердец крыс было показано, что уридин и УМФ проявляют антиаритмическую активность в отношении реперфузионных аритмий, предупреждают развитие миокардиального станинга при постишемической реперфузии, препятствуя депрессии сократительной функции миокарда и предотвращая развитие контрактуры [Eliseev et al., 1989].
В представленной работе была предпринята попытка определить, обладают ли уридиновые нуклеотиды кардиопротекторным действием и связано ли их влияние с активацией цито- и митоКАТФ каналов на модели искусственного острого инфаркта миокарда.
2.2 Функциональная роль митоКАТФ
Являясь одним из компонентов калиевого цикла МХ, митоКАТФ участвует в поддержании объема МХ матрикса и мембранного потенциала [Garlid, 1998]. В лаборатории проф. Мироновой показано, что активация митоКАТФ играет важную роль при выходе животных из состояния зимней спячки [Fedotcheva et al., 1985; Миронова и др., 1986]. МитоКАТФ участвует также в ингибировании процесса апоптоза клетки, блокируя высвобождение цитохрома С, предотвращая снижение мембранного потенциала и чрезмерное увеличение концентрации Ca2+, сохраняя, таким образом, функции МХ, что было показано на b-клетках поджелудочной железы [Akao et al., 2001], а затем и на церебральных нейронах [Teshima et al., 2003]. Кроме того, митоКАТФ является посредником в процессе регуляции транскрипции некоторых генов. Его активация вызывает небольшое увеличение продукции активных форм кислорода (АФК) [Chandel et al., 1998].
При патологии активация митоКАТФ частично востанавливает мембранный потенциал, стимулируя дальнейший перенос протонов, ингибируя накопление внутримитохондриального кальция и предотвращая распад энергетических фосфатов путем создания оптимального для синтеза АТФ электрохимического градиента [Szewczyk, 1996; Xu et al., 2001]. Активация митоКАТФ способствует разобщению электронного транспорта, ускоряя, таким образом, дыхание, что приводит к окислению проксимальных переносчиков электронов дыхательной цепи [Liu et al., 1998]. Согласно данным Гарлида, активация канала приводит к набуханию МХ, что способствует поддержанию архитектуры внутренней мембраны и сохранению активности дыхательной цепи. Это позволяет поддерживать уровень клеточного АТФ и, таким образом, способствует восстановлению функций миокарда во время реперфузии [Garlid, 2000]. Как было показано ранее, набухание матрикса увеличивает скорость окислительного метаболизма, активирует как окисление жирных кислот, так и дыхание и синтез АТФ [Halestrap, 1989].
2.2.1 Активация митоКАТФ в развитии устойчивости организма к гипоксии
В 1983 г. был открыт феномен прерывистой гипоксии, важную роль в котором играет активация митоКАТФ [Murry et al., 1983; Liu et al., 1998].
Феномен прерывистой гипоксии был назван «preconditioning» или «ишемической толерантностью» [Murry et al., 1986; Kitigawa, 1990]. Позднее он получил название «феномен ишемической адаптации» (ФИА) [Yellon et al., 1998; Петрищев и др., 2001], и в настоящее время признан наиболее эффективным способом уменьшения размера инфаркта миокарда [Kloner et al., 1998]. Справедливости ради надо отметить, что адаптация, создаваемая кратковременной гипоксией, была обнаружена ранее [Poupa et al.,1966; Meerson et al., 1973].
Клеточные механизмы ФИА в настоящее время широко изучаются. Считается, что защитный эффект является трехступенчатым и включает в себя последовательные триггерные и конечные эффекторные механизмы, причем наиболее вероятным эффектором является митоКАТФ [Garlid et al., 1997; Yellon et al., 1998; Grover and Garlid., 2000; Петрищев и др., 2001].
ФИА развивается в виде двух волн: первая волна проявляется в течение нескольких часов, затем исчезает и снова появляется в виде второй волны [Yellon et al., 1998], которая длится в течение недели, а иногда и месяца [Carroll et al., 2000]. Установлено, что во второй стадии адаптации к гипоксии также участвует митоКАТФ [Wang et al., 2001]. В развитии толерантности к ишемии мозга [Lacza et al., 2003], и в дистанционной ишемической адаптации сердца к гипоксии при создании коротких эпизодов окклюзии почечной артерии также задействован митоКАТФ [Pell et al., 1998].
Установлено, что специфические модуляторы митоКАТФ (см. таблицу 1) влияют на ФИА. Так активатор митоКАТФ, диазоксид, и неселективный активатор КАТФ каналов, кромакалим, имитируют «preconditioning», увеличивая время сокращения миокарда и способствовуя восстановлению функций изолированных сердец крыс, подвергавшихся общей ишемии миокарда с последующей реперфузией. Кi диазоксида для митоКАТФ (0.8 мкМ в МХ сердца быка) в 1000 раз превышала Кi для цитоКАТФ [Gross et al., 1992]. Кромакалим проявлял аналогичный эффект в тех же концентрациях. Глибенкламид и 5-ГД блокировали действие диазоксида и кромакалима, следовательно, эффект активаторов на ФИА опосредован через КАТФ каналы [Auchampach, 1992; Garlid, 1997; Tsai et al., 1998; Vanden Hoek, 2000]. Активирующе действие диазоксида на митоКАТФ показано также на изолированных МХ сердца крысы, что доказывает роль МХ канала в кардиопротекции [Gross et al., 1992]. Полученные данные подтверждают также результаты исследований, по изучению флуоресценции флавопротеинов на изолированных кардиомиоцитах желудочков сердца кроликов [Liu et al., 1998; Sato et al., 1998]. Однако поскольку было обнаружено, что диазоксид снижает мембранный потенциал на МХ, независимо от активации митоКАТФ канала, его кардиопротекторный эффект вызывает сомнение.
Показано, что потенциальный медиатор сигнального пути, ответственного за формирование ишемической адаптации, протеинкиназа С, [Sato et al., 1998; Liu et al., 1994; Sasaki et al., 2000] модулирует активность митоКАТФ. 5-ГД полностью блокирует этот кардиопротекторный эффект, подтверждая участие митоКАТФ в защите миокарда от ишемических повреждений. Следует отметить, что сами по себе глибенкламид и 5-ГД не оказывают никакого влияния [Gross and Fryer, 1999]. Неспособность специфического ингибитора цитоКАТФ, HMR-1883, ингибировать анти-ишемический эффект активаторов митоКАТФ [Fryer et al., 2000], также говорит в пользу участия в защитном механизме МХ канала.
Следует отметить, что неселективные активаторы КАТФ каналов, такие как пинацидил, оказывая кардиопротекторное действие, вызывали побочный проаритмический эффект и приводили к существенному понижению давления у подопытных животных [Grover, 1997]. Подобные нежелательные последствия способны свести на нет кардиопротекторное действие данных препаратов. Использование селективных активаторов МХ или цитоплазматического КАТФ каналов позволило бы избежать таких побочных явлений. Можно ожидать, что селективные активаторы цитоКАТФ, такие как HMR-1883, оказывая антиаритмическое действие, не будут негативно влиять на ишемическую адаптацию, вызванную активацией митоКАТФ. Так, показано, что HMR-1883 является потенциальным антифибрилляторным агентом при острой ишемии на модели собаки [Billman et al., 1998]. И наоборот, сайт-специфичные активаторы митоКАТФ не будут оказывать проаритмического действия [Gross and Fryer, 1999].
2.2.2 Механизмы защиты сердца при гипоксии, опосредованные активацией митоКАТФ
Несмотря на то, что роль митоКАТФ в адаптации организма к гипоксии доказана, остается неясным, каким образом открытие канала приводит к защите сердца от ишемических повреждений. Недавно были предложены три различных механизма защиты сердца при гипоксии, которые могут проявляться при открытии митоКАТФ: 1) механизм, при котором усиление входа К+ в МХ ведет к набуханию матрикса, что предупреждает распад АТФ; 2) механизм, основанный на снижении концентрации Са2+ в МХ, что уменьшает вероятность открытия митохондриальной поры и предупреждает гибель кардиомиоцитов; 3) механизм, связанный с изменением уровня активных форм кислорода (АФК), повышенная концентрация которых, с одной стороны, активирует ряд ферментов, а с другой, необратимо повреждает мышечную ткань при гипоксии.
Известно, что при набухании МХ усиливается окисление жирных кислот и увеличивается продукция АТФ [Grover, 2000; Halestrap, 1989]. Хотя ранее было продемонстрировано, что набухание МХ является следствием открытия митоКАТФ, вопрос о связи этого эффекта непосредственно с сохранением целостности МХ после ишемии и реперфузии остается открытым [Lim et al., 2002]. Идея о том, что потребление К+ митохондриями и сопутствующее ему набухание этих органелл оказывает кардиопротекторный эффект, подтверждается тем, что активация других митохондриальных К+ каналов, например, Ca2+-активируемого К+ канала, также предупреждает ишемические повреждения [Xu et al., 2002]. Однако, этот эффект не блокируется ингибитором митоКАТФ, что наблюдается при «preconditioning». Следовательно, именно митоКАТФ задействован в формировании феномена «preconditioning».
Согласно второй гипотезе [Liu et al., 1999; Murata et al., 2001; Korge et al., 2002; Holmuhamedov et al., 1999], в состоянии аноксии МХ мембрана деполяризуется, скорость электрофоретического входа кальция снижается и, соответственно, уменьшается количество Са2+ в МХ. Это, в свою очередь, предупреждает образование Ca2+-активируемой митохондриальной поры, открытие которой ведет к развитию апоптоза и некроза ткани [Szabo et al., 2004]. Полученные данные согласуются с результатами исследований о предотвращении апоптоза при активации митоКАТФ [Takashi et al., 1999], возможно, путем ингибирования митохондриальной поры [Akao et al., 2003]. Однако, как показано в лаборатории проф. Гарлида, при открытии митоКАТФ снижение потенциала настолько мало [Carreira et al., 2005], что не может существенно отразиться на скорости входа Ca2+ в МХ.
Третий механизм, в настоящее время наиболее обсуждаемый, основан на обнаружении изменений уровня АФК, как во время прекондиции [Ozcan et al., 2002], так и в условиях реперфузии [Vanden Hoek et al., 2000]. Стимуляция образования АФК короткими эпизодами гипоксии или при введении активаторов митоКАТФ, предотвращаемая 5-ГД, оказывает защитное действие, ингибируемое антиоксидантами [Forbes et al., 2001; Vanden Hoek et al., 1998]. Этот эффект связан, вероятно, с активацией протеинкиназ, активируемых АФК, что ведет к инициированию целого ряда реакций, приводящих к кардиопротекции [Takashi et al., 1999]. Однако ингибиторы протеинкиназ не всегда устраняют кардиопротекторное действие активатора, как это наблюдалось в случае диазоксида [Krenz et al., 2002]. В противоположность этому АФК, образуемые при реперфузии после продолжительной ишемии, могут быть причиной необратимого клеточного повреждения. Предварительная обработка активаторами митоКАТФ подавляет образование АФК при реперфузии [Pain, et al., 2000; Zweier et al., 1987]. Следовательно, митоКАТФ может способствовать продукции «защитных» АФК при адаптации к гипоксии и уменьшать образование «повреждающих» АФК при реоксигенации.
Учитывая все вышесказанное можно сделать вывод, что механизм антиишемического действия активаторов митоКАТФ до сих пор окончательно не выяснен. Кроме того, остается непонятной причина сохранения устойчивости миокарда к гипоксии в течение длительного времени после ишемической адаптации сердца. Именно этот феномен может лежать в основе гипобарической адаптации животных и человека к гипоксии и связан он, вероятно, с экспрессией ряда белков, в том числе и белков, формирующих митоКАТФ [Kuzuya et al., 1993; Marber et al, 1993].
Известно, что синтетические активаторы митоКАТФ оказывают кардиопротекторный эффект. Обнаруженный в нашей лаборатории природный активатор митоКАТФ (УДФ) обладает по сравнению с ними рядом преимуществ, поскольку он не обладает побочными эффектами, которые могут наблюдаться при использовании синтетических препаратов и его концентрацию в клетке легко регулировать. В связи с этим, в работе исследовались анти-ишемическое и антиаритмическое действие уридина и УМФ (предшественников УДФ в клетке [Matsushita et al., 1970]) и опосредованы ли эти эффекты препаратов активацией митоКАТФ.
2.2.3 Феномен прерывистой гипобарической тренировки
В любой популяции неинбредных животных существуют особи с различной резистентностью к гипоксии [Березовский, 1978]. Индивидуальные различия в чувствительности к гипоксии и ее переносимости определяются при подъеме животных в барокамере на критическую высоту. Время жизни крайних типов животных (высоко- и низкоустойчивых к гипоксии) на критической высоте различается в 5 и более раз [Березовский, 1978; Чернобаева, Лукьянова, 1989]. Индивидуальные особенности реакции организма на гипоксию играют существенную роль в развитиии, течении и исходе возникающего при этом патологического состояния [Лукьянова и др., 1999; Лукьянова, Коробков, 1981].
Еще в 60-х годах прошлого века было замечено, что в популяциях, живущие на возвышенностях, частота возникновения инфаркта миокарда и смертности от сердечных заболеваний существенно ниже [Hurtado, 1960; Mortimer et al., 1977]. В 1966 г. Поупа с соавторами показали наличие кардиопротекторного эффекта гипобарической гипоксии у крыс с инфарктом миокарда, индуцированным протеренолом [Poupa et al., 1966]. В 1973 Меерсон с соавторами сообщили о том, что симуляция большой высоты 5 минут в день 5 дней в неделю, на 84% сокращает смертность крыс с лигацией коронарной артерии и на 35% размер инфаркта миокарда [Meerson et al., 1973]. Позднее блыло показано, что у крыс, подвергавшихся прерывистой гипоксии, уменьшались желудочковые аритмии, индуцированные ишемией/реперфузией, и лучше сохранялась сократительная функция желудочка [Meerson et al., 1987]. У крыс разных возрастов также увеличивалась устойчивость к аноксии после гипоксической тренировки [McGrath et al., 1973]. В дальнейшем в ряде исследований было показано, у животных, подвергавшихся нескольким предварительным циклам гипоксии, даже в нормобарических условиях, почти на 50% сокращается размер области инфаркта миокарда, вызванного лигированием коронарной артерии [Xi et al., 2002; Cai et al.,2003]. В 2004 Zong с соавторами показали эффективность прерывистой гипоксической тренировки в отношении снижения инфаркта миокарда и аритмии желудочка у собак [Zong et al., 2004]. Это нашло подтверждение и в последующих работах [Downey, 2006].
Интерес исследователей к гипоксической тренировке (ГТ) вызван тем, что она позволяет усилить эффект натренированности, ускоряет акклиматизацию к высоте, предотвращает и лечит некоторые заболевания [Roach., 2001; Levine.,2002; Powell and Garcia., 2000; Boning., 1997; Tin’kov and Aksenov., 2002]. Существуют два типа ГТ: гипобарическая и нормобарическая. В последнем случае животных помещают в камеру, в которую подвется воздух с вдвое сниженной концентрацией кислорода. ГТ включает в себя ~5 минутные эпизоды такой умеренной гипоксии с последующей нормоксией несколько раз в день в течение нескольких недель. Эта процедура не требует сложных приспособлений, а потому может использоваться в клинике [Zong et al., 2004]. Следует подчеркнуть, что Россия является пионеромв этих клинических исследованиях.
Кардиопротекторный эффект ГТ аналогичен открытому позднее действию прекондиции [Murry et al., 1983]. Это подтверждается результатами недавних экспериментов, согласно которым, из 46 пациентов с сердчно-сосудистыми заболеваниями, в течение 10 месяцев подвергавшихся ГТ, у 37 инфаркт миокарда не развился [Tin’kov and Aksenov, 2002]. ГТ нормализует и другие патологические состояния [Roach., 2001; Levine.,2002].
Однако, механизм ГТ до сих пор неясен. Колар предложил ряд возможных механизмов для объяснения ее кардиопротекторного действия. 1) Повышенная васкуляризация миокарда и коронарного кровотока, 2) увеличенное содержание гемоглобина в крови и миоглобина в миокарде, 3) оптимизированный энергетический метаболизм, 4) появление специфических нейрогуморальных факторов, простагландинов и стресс белков, 5) увеличенное содержание или активность антиоксидантов, и 6) высвобождение аденозина [Kolar, 1996].
Недавно было высказано предположение о том, что в защитный механизм ГТ вовлечен КАТФ канал [Asemu et al., 1999; Neckar et al., 2002; Zhu et al., 2003]. Так, показано, что у животных, подвергавшихся ГТ, защитный эффект тренировки при ишемии/ реперфузии (30 мин/30 мин) полностью блокировался глибенкламидом и 5-ГД. Следовательно, защитный эффект ГТ опосредуется КАТФ каналами [Zhu et al., 2003]. Усиление же кровотока не является основной причиной защитного действия ГТ [Zong et al., 2004].
Согласно данным Лукьяновой [Лукьянова, 2004], реакция организма на дефицит кислорода является отражением сложного полифункционального ответа клетки, координированного нейрогуморальными механизмами, где в общей иерархии внутриклеточных процессов энергетический обмен выполняет триггерную роль, а нарушение фукции митохондриальных ферментных комплексов являются базисным механизмом любой формы гипоксии. В то же время, вопрос о конечном эффекторе защитного действия ГТ остается открытым. Учитывая данные о роли митоКАТФ канала в кардиопротекции, опосредованной ишемической прекондицией [Garlid, 1997, Liu et al., 1998; Sato et al., 1998], мы предположили, что данный канал может быть вовлечен и в реализацию адаптации при ГТ. Для проверки данного предположения в настоящей работе были исследованы параметры дыхания и АТФ-зависимого калиевого транспорта МХ крыс с различной устойчивостью к ишемии, а также адаптированных к гипоксии.
2.3 Выделение МХ
2.3.1 Выделение МХ печени крысы
Для выделения МХ использовали самцов крыс альбиносов линии Вистар, массой ~250г. Крыс умерщвляли декапитацией без наркоза. Печень извлекали и помещали в предварительно взвешенную среду выделения (t 0°С). После определения массы и проведения перфузии 0.9% NaCl, печень продавливали через пресс и гомогенизировали в стеклянном гомогенизаторе с тефлоновым пестиком в 8-кратном объеме среды выделения, отнесенном к исходному весу ткани. Среда выделения содержала 250 мМ сахарозы, 10 мМ Tрис-HCl, 0.5 мМ ЭГТА (pH 7,4).
Осаждение МХ проводили общепринятым методом дифференциального центрифугирования с модификациями, разработанными в нашей лаборатории (Миронова и др., 1981). К полученному осадку добавляли среду выделения в 0,1-кратном объеме к исходной массе ткани и гомогенизировали. Полученная суспензия МХ, использовавшаяся в дальнейшей работе, содержала 80-100 мг белка/мл.
Концентрацию белка в МХ определяли по методу Лоури [Лоури, 1951], используя бычий сывороточный альбумин (БСА) в качестве стандарта.
В работе использовали самцов крыс линии Вистар, массой ~250г. Предварительные процедуры как в п.п. 1.1. После определения массы сердца, ткань измельчали в растворе, содержащем 300 мМ сахарозы, 10 мМ Hepes, 2 мМ ЭГТА и 10% протеазы в течение 10 минут. Измельченную ткань гомогенизировали стеклянным гомогенизатором с тефлоновым пестиком в 8-кратном объеме среды выделения, отнесенном к исходной массе ткани. Среда выделения содержала 300 мМ сахарозы, 10 мМ Hepes, 2 мМ ЭГТА, 0.1 % бычьего сывороточного альбумина (БСА) (pH 7.4).
МХ осаждали дифференциальным центрифугированием [Миронова и др., 1981]. К полученному осадку добавляли среду выделения в 0,1-кратном объеме к исходной массе ткани и гомогенизировали. Полученная суспензия МХ содержала 30-50 мг белка/мл.
Концентрацию белка в МХ определяли методом Лоури [Лоури, 1951].
2.3.2 Выделение и очистка митоКАТФ канала
Солюблизацию КАТФ канала из МХ печени крысы проводили по методу этанольной экстракции, разработанному в нашей лаборатории [Миронова и др., 1981] с некоторыми модификациями. Полученные МХ помещали на 20 мин в гипотонический раствор (концентрация белка составляла 3-4 мг/мл), содержащий 10 мМ Трис-HCl (pH 7,5) при 4° С. Затем экстракт центрифугировали 20 мин при 5500 об/мин. Из полученного осадка митопластов экстрагировали белок. Для этого митопласты разводили 10 мМ Tрис-HCl буфером (рН-7,4) до концентрации 44 мг/мл. К суспензии добавляли 10-кратный водный раствор 66% этанола, охлажденный до -20˚С, и инкубировали при 4˚С в течение 30 минут при постоянном перемешивании. Полученный экстракт центрифугировали при 5500 об/мин в течение 15 минут. Супернатант диализовали против 5 мМ Трис-HCl буфера (рН 7,4) с добавлением 0,05% β-меркаптоэтанола в течение ночи при 4˚С при постоянном перемешивании с одной сменой буфера через 2 часа от начала диализа. Фракцию центрифугировали при 100000 g в ечение 1 часа.
Далее проводили ионообменную хроматографическую очистку полученного экстракта. Носитель - ДЕАЕ-целлюлоза (Sigma), объем колонки - 1 см3, диаметр – 0.5 см, h = 5 см. Скорость колонки - 40 мл/ч. Колонка уравновешивалась буфером, содержавшим 50 мМ Трис-HCl, 1 мМ ЭДТА (рН 7,5). Этим же буфером далее элюировали несвязавшиеся с носителем белки. Связавшиеся белки элюировали двумя объемами ступенчатого градиента KCl (50, 100, 150, 200, 250, 300, 500 мМ KCl). После фракционирования белки каждой фракции идентифицировали методом SDS-PAAG электрофореза (10%). Гели окрашивали Кумасси-R250. Исследуемый белок с м.м. 55 кДа элюировался 250 мМ KCl.
Глава 3. Изучение энергозависимого входа К+ в МХ методом спектрофотометрии
В исследованиях использовались МХ сердца и печени крыс линии Вистар (масса животных ~250г.). Вход ионов калия определяли по скорости набухания МХ в гипотонической среде с KCl. Кинетику набухания регистрировали по изменению оптической плотности суспензии МХ при длине волны 520 нм при постоянном перемешивании и термостатировании при 26°С на спектрофотометре “Uvikon” (Италия). Концентрация МХ белка в ячейке составляла 0.1 мг/мл. Среда инкубации содержала: 50 мМ KCl, 5 мМ HEPES, 5 мМ NaH2PO4, 5мМ янтарной кислоты, 0.5 мМ MgCl2, 0.1 мМ ЭГТА, 5 мкМ цитохрома С, 2 мкM ротенона, 1 мкМ циклоспорина А, рН 7.2. Набухание инициировали добавлением МХ. Скорость набухания рассчитывалась по изменению светорассеяния за единицу времени.
3.1 Изучение ДНФ-индуцированного выхода ионов калия из МХ
Проницаемость митохондриальной мембраны оценивали с помощью К+-селективного электрода по содержанию и скорости выхода катиона из деэнергизованных МХ в присутствии разобщителя окислительного фосфорилирования 2,4-динитрофенола (ДНФ). Кинетику выхода калия регистрировали с помощью оригинального электрометрического усилителя, который через контроллер L-153 был соединен с компьютером IBM PC486. Измерения проводились при постоянном перемешивании и термостатировании при 26°С. Концентрация МХ белка в ячейке составляла 1,5-2 мг/мл. Среда инкубации содержала: 0,3 М сахарозы, 3 мМ NaH2PO4, 10 мМ Трис-HCl, pH 7,4.
3.2 Получение и очистка антител к белку с молекулярной массой 55 кДа.
3.2.1 Подготовка белка с м.м. 55 кДа: выделение и очистка
Выделение и первичная очистка белка проводились методами, описанными в п.п. 2. Белок хранили при температуре -20°С. Фракции, содержавшие белок с м.м. 55 кДа и обладавшие АТФ-ингибируемой К+-селективной активностью, накапливали, затем диализовали против 10 мМ Трис-HCl (рН 7.4) в течение ночи при постоянном перемешивании и температуре 4°С. Обессоленную фракцию концентрировали обратным диализом с использованием полиэтиленгликоля-20000 (ПЭГ) при 4°С. Сконцентрированную фракцию подвергали дополнительной очистке методом нативного электрофореза в полиакриламидном геле (ПААГ). Для электрофореза использовали 10%-ый ПААГ в системе Дэвиса [Davies, 1964]. На геле наблюдалась только одна полоса - белковая зона, в которой определялась АТФ-зависимая К+-транспортирующая активность. Полосу исследуемого белка вырезали из геля, измельчали и элюировали в течение 12 часов при постоянной силе тока (8 мА) и температуре 4°С. Среда элюции содержала 10 мМ Трис-HCl, 38 мМ глицина, рН 8.3. Концентрацию белка в элюате определяли методом Лоури [Лоури, 1951]. Чистоту белка контролировали методом SDS-PAAG электрофореза [Laemmli, 1970]. Выход белка составлял около 30-50 мкг из 100 г ткани печени.
К+-транспортирующие свойства выделенного белка и чувствительность к аденозин-5’-трифосфату оценивали при встраивании его в бислойную липидную мембрану.
3.3 Иммунизация и анализ препарата антител
Для получения антисыворотки проводили иммунизацию животных электрофоретически чистым АТФ-ингибируемым К+-транспортирующим белком с м.м. 55 кДа (канальная субъединица митоКАТФ), выделенным из печени крысы. В качестве доноров иммунной сыворотки использовали кроликов массой 2.4-2.6 кг.
Схема процедуры была подобрана в соответствии с требованиями Декларации совета Европейского Союза 86/609/EEC.
За неделю до иммунизации животных дела проводили забор крови из ушной вены; сыворотка в дальнейшем использовали в качестве контроля.
Антиген, смешанный с неполным адъювантом Фрейнда (60-100 мкг белка с м.м. 55 кДа растворяли в 300 мкл 0.9 % NaCl и тщательно смешивали с 600 мкл неполного адъюванта Фрейнда) вводили животным подкожно в область лопаток. Гомогенность полученной смеси определяли визуально. Антиген вводили в 10 последовательных инъекций по 100 мкл на небольшом расстоянии друг от друга, чтобы минимизировать болевые ощущения. Через 3 и 6 недель проводили повторные иммунизации по той же схеме, однако для повторных инъекций использовали полный адъювант Фрейнда. Через 7-10 дней после последней инъекции брали кровь из ушной вены (40-50 мл), выдерживали 30 минут в открытом сосуде при комнатной температуре и оставляли на ночь при 4°С. Образовавшийся тромб удаляли центрифугированием (2000 об/мин), а обогащенную антителами сыворотку хранили в замороженном виде при температуре -20°С.
3.3.1 Детекция специфических антител и определение титра
Для определения титра полученных антител использовали белок с м.м. 55 кДа, полученный по схеме, описанной в п.п. 5.1.1. Белок в 10 мМ Трис-HCl, рН 7.4, в концентрации 1-2 мкг/мкл сорбировали на полосы нитроцеллюлозной мембраны, в количестве равном числу разведений первичных антител, подсушивали. Затем полоски нитроцеллюлозы инкубировали в ПБС-Твин буфере (0.15 М NaCl, 0.02 М NaH2PO4 Ч 12 Н2О, рН 7.4, 0.1% Твин-20) в течение 30 минут при комнатной температуре. После этого мембраны в течение часа инкубировали с ПБС-Твин-молоко буфером (ПБС-Твин 20 + 2% сухого молока (Amersham, Германия)) чтобы заблокировать участки, неспецифичного связывания с белком.
Буфер для блокирования удаляли и мембраны последовательно инкубировали сначала с первичными специфическими кроличьими антикрысиными антителами, а затем с вторичными антителами (козьи антикроличьи, Sigma), по 1 часу, отмывая мембрану ПБС-Твин-молоко буфере (смена буфера 4-5 раз в течение часа). При этом делали несколько разведений антисыворотки (1:400, 1:800, 1:1600, 1:3200, 1:6400, 1:12800, 1:25600, 1:51200) в ПБС-Твин-молоко буфере. Каждую полоску нитроцеллюлозной мембраны с белком помещали в отдельную емкость и инкубировали с антителами определенного разведения. Разведение вторичных антител – 1:500.
Перед окрашиванием полосы мембран тщательно отмывали в ПБС-Твин буфере (4-5 смен буфера в течение 30-40 минут). Окрашивание проводили пероксидазной реакцией в присутствии 0.02% перекиси водорода. Буфер для окрашивания содержал 50 мМ Трис-HCl, рН 7.5. Через 2-5 минут реакцию останавливали, промывая мембрану дистиллированной водой. Затем мембрану высушивали и хранили в темноте.
3.3.2 Вестерн-Блот анализ
Данный метод, впервые описанный Товбином и соавторами [Towbin et al., 1979] использовали для идентификации АТФ-зависимого К+-транспортирующего белка с м.м. 55 кДа в различных тканях животных.
На первом этапе проводили фракционирование МХ с помощью SDS-PAAG электрофореза [Laemmli, 1979]. Нагрузка составляла 5 мкг суммарного белка. Электрофорез вели при комнатной температуре и постоянном токе (20-30 мА на пластину) в течение 3-4 часов до достижения бромфеноловым синим нижнего фронта геля.
После электрофореза половину геля окрашивали Кумасси R-250 или серебрением [Shevchenko et al., 1996], а вторую половину уравновешивали в буфере для блоттинга (150 мМ глицина, 20 мМ Триса, 0.02 % ДСН, 20 % метанол, рН 8.3) в течение 30 минут на качалке при комнатной температуре. Затем гель покрывали нитроцеллюлозной мембраной (Sigma, диаметр пор 0.45 мкм) и помещали между листами влажной фильтровальной бумаги. Систему помещали между двумя пористыми прокладками и зажимали между двумя пластинами из плексигласа. Перенос вели при напряженности 7 В/см2 в течение двух часов при комнатной температуре. После окончания переноса нитроцеллозную мембрану инкубировали в течение 30 минут в ПБС-Твин буфере при комнатной температуре. Дальнейшая процедура такая же, как в п.п. 5.2.1.
3.4 Исследование ДНФ-индуцированного выхода К+ из митохондрий с помощью К+-селективного электрода
Функционирование КАТФ-канала в митохондриях оценивали также по инициированной 2,4-динитрофенолом (ДНФ) скорости АТФ- зависимого выхода калия из митохондрий, т.е. создавали условия для работы канала в обратном направлении (Баранова и др, 2000). В среде без субстрата дыхания и калия регистрировали выход калия из митохондрий после добавления разобщителя окислительного фосфорилирования. Выход К+ из митохондрий индуцировали добавлением 50 мкМ 2,4-динитрофенола. Кинетику выхода калия регистрировали с помощью оригинального электрометрического усилителя, который через контроллер L-153 был соединен с компьютером. Измерения производились при постоянном перемешивании. Концентрация митохондриального белка в ячейке составляла 1-1,5 мг/мл. Среда инкубации митохондрий содержала: 170 мМ сахароза, 80