Аденилатциклазный сигнальный механизм
Полученные данные свидетельствуют о том, что обнаруженное нами активирующее действие инсулина на АЦ в мышечных тканях исследуемых объектов осуществляется именно инсулином и является специфичным при действии этого гормона.
Таблица 5. Нейтрализация АЦ стимулирующего эффекта инсулина в мембранных фракциях скелетных мышц крыс и гладких мышц моллюска в присутствии антиинсулиновой сыворотки
Воздействия |
Активность АЦ (пкмоль цАМФ/мин/мг белка) |
|
|
Нормальная сыворотка |
Анти-инсулиновая сыворотка |
|
|
Гладкие мышцы моллюска Anodonta cygnea |
||
|
Без инсулина |
111.18±6.13 (100%) |
148.29±4.31 (100%) |
|
Инсулин 10-8М |
156.76±8.54* (141%) |
158.67±8.16 (107%) |
|
Скелетные мышцы крысы |
||
|
Без инсулина |
97.34±4.58 (100%) |
115.82±6.49 (100%) |
|
Инсулин 10-8М |
163.49±6.17* (168%) |
110.03±7.12 (95%) |
Примечание: приведены данные из трех независимых экспериментов, повторенных три раза. Значения представлены в виде среднего арифметического с учетом ошибки среднего. Различия достоверны (р< 0.05 (*). В скобках – активность АЦ в %. Базальная активность принята за 100%.
Следующая часть работы посвящена расшифровке структурно-функциональной организации механизма АЦ активирующего действия инсулина и ИФР-1.
В этой части работы мы поэтапно исследовали звенья, которые могут быть вовлечены в реализацию действия инсулиноподобных пептидов, начиная от рецептора и заканчивая эффекторными системами, которые являются конечным звеном реализации сигнала.
Участие рецептора тирозинкиназного типа в реализации АЦ стимулирующего эффекта пептидов инсулинового суперсемейства
Для доказательства участия рецептора тирозинкиназного типа, характерного для пептидов инсулинового суперсемейства в реализации АЦ стимулирующего эффекта пептидов инсулиновой природы, использовали селективные ингибиторы рецепторных тирозинкиназ – тирфостин 47 и генистеин, которые блокируют тирозинкиназную функцию рецептора инсулина и других пептидов инсулиновой природы. Ингибиторы инкубировали с пробами в течение 15 мин после чего в пробу добавляли пептиды (время действия 2.5 мин) при концентрации, вызывающей максимальный АЦ стимулирующий эффект. Влияние этих ингибиторов на активирующие АЦ эффекты инсулина, ИФР-1, ЭФР и для сравнения на эффект изопротеренола (в случае позвоночных) и серотонина (в случае беспозвоночных), которые также действуют активирующим образом на АЦ, но через рецептор серпантинного типа, изучали in vitro во фракции мембранных препаратов мышечной ткани крыс, культуры куриных миобластов, моллюсков.
У крыс в присутствии тирфостина 47 (1.25-5.0 мкМ) активирующий АЦ эффект пептидов снижался при действии инсулина до 50%, при ИФР-1 до 65%, при ЭФР до 50% по отношению к максимальному эффекту пептидов, принятому за 100% (Рис. 10). В присутствии генистеина (1.25-5.0 мкМ) снижение АЦ стимулирующих эффектов всех используемых пептидов у крыс было более выражено. Эффект инсулина снижался до 40%, эффект ИФР-1 до 10%, эффект ЭФР – до 18% (рис. 11). В тоже время у крыс стимулирующий эффект изопротеренола на АЦ (10-6М) практически не изменялся в присутствии тирфостина 47 и генистеина (0.5-20.0 мкМ).
В культуре клеток 4-х суточных куриных миобластов тирфостин 47 (Рис. 12) и генистеин (данные представлены в диссертации) ингибировали АЦ активирующий эффект инсулина до 43% и 38%, соответственно. Однако, активирующее действие изопротеренола на АЦ в присутствии ингибиторов тирозинкиназ (тирфостина 47 и генистеина) не изменялось (р < 0.05). Это свидетельствует о том, что классические рецепторы серпантинного типа не участвуют в механизме действия пептидов инсулиновой природы.
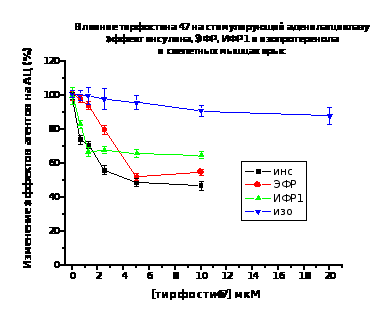
Рис. 10. По оси ординат - снижение стимулирующего эффекта пептидов и изопротеренола на АЦ (принятого за 100%) в присутствии тирфостина 47
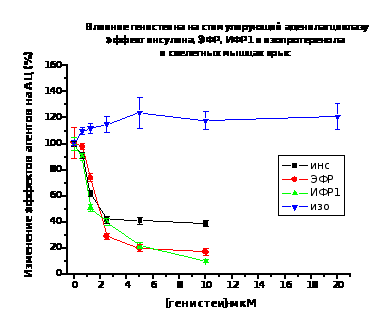
Рис. 11. По оси ординат - снижение стимулирующего эффекта пептидов и изопротеренола на АЦ (принятого за 100%) в присутствии генистеина
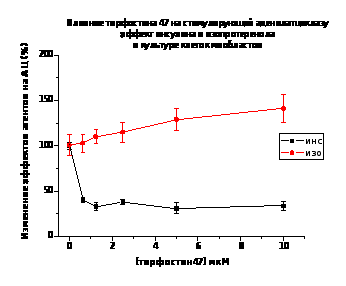
Рис. 12. По оси ординат - снижение стимулирующего эффекта инсулина и изопротеренола на АЦ (принятого за 100%) в присутствии тирфостина 47
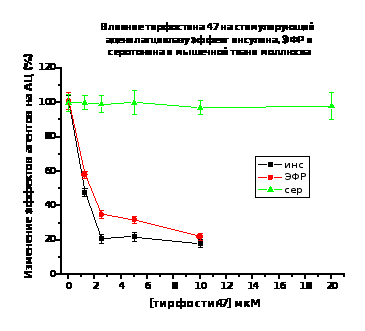
Рис. 13. По оси ординат - снижение стимулирующего эффекта пептидов и серотонина на АЦ (принятого за 100%)
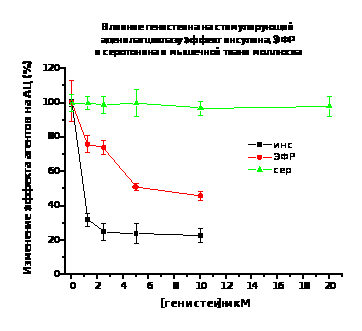
Рис. 14. По оси абсцисс – концентрация генистеина в мкМ; по оси ординат - снижение АЦ стимулирующего эффекта пептидов и серотонина (принятого за 100%) в присутствии генистеина
У моллюсков наиболее выраженное снижение АЦ стимулирующего эффекта пептидов наблюдалось в присутствии тирфостина 47 (2.5 мкМ). Эффект инсулина уменьшался до 20%, эффект ЭФР до 30-35%. (Рис. 13). В присутствии генистеина АЦ стимулирующий эффект пептидов снижался до 25% в случае инсулина (1.25 мкМ генистеин), и до 50-75% в случае ЭФР (5 мкМ генистеин) (рис. 14).
Необходимо подчеркнуть, что у моллюсков A.cygnea активность АЦ увеличивается не в присутствии изопротеренола, а в присутствии серотонина, реализующего свое действие также через рецепторы серпантинного типа (Pertseva et al., 1992). Исследование действия ингибиторов тирозинкиназ - тирфостина 47 и генистеина (0.5-20.0 мкМ) на стимулирующий АЦ эффект серотонина в мембранной фракции мышечных тканей моллюсков не выявило изменений в действии этого биогенного амина на активность АЦ.
Таким образом, в мембранной фракции крыс, моллюсков и культуры клеток куриных миобластов стимулирующее влияние исследуемых пептидов на АЦ снижалось в присутствии тирфостина 47 и генистеина в диапазоне концентраций - 1.25, 2.5, 5.0, 10, 20 мкМ во всех исследуемых объектах (Рис. 10-14).
Стимулирующее действие изопротеренола (крысы, куры) или серотонина (моллюски) на АЦ, реализуемое через рецепторы серпантинного типа не изменялись в присутствии тирфостина 47 или генистеина в исследуемых объектах (см. Рис. 10-14).
Можно заключить, что в мышечной ткани млекопитающих (крысы), птиц (куры), культуре клеток куриных миобластов и в мышцах моллюсков активирующее действие инсулина, ИФР-1, ЭФР на АЦ осуществляется с участием рецепторов тирозинкиназного типа, специфичных для действия этих пептидов. (Pertseva et al., 1996; Plesneva et al., 2003).
Участие G-белков в реализации АЦ стимулирующего эффекта инсулина
Для доказательства участия G-белков в действии инсулина на активность АЦ был применен широко распространенный подход, в котором используется набор гуаниновых нуклеотидов, способных в разной степени либо стимулировать ГТФ-азную активность G-белков в присутствии ГТФ и его аналогов - ГТФγS, ГИДФ и тем самым активировать АЦ, либо ингибировать ГТФ-азную активность G-белка в присутствии ГДФβS.
Было исследовано влияние ГТФ и ряда его негидролизуемых аналогов на активность АЦ в присутствии и отсутствии гормона (Табл. 6).
Таблица 6. Влияние гуаниновых нуклеотидов в отсутствии и присутствии инсулина на активность АЦ во фракции мышечных мембран крысы и моллюска
Воздействия |
Животные |
|
|
Крыса |
Моллюск |
|
|
Активность АЦ (%) |
||
|
Контроль |
100±1.01% |
100±1.3% |
|
Инсулин (10-8М) |
222±1.3% (+122%) |
186±1.8% (+86%) |
|
ГТФγS (10-5М) |
242±1.4% (+142%) |
470±9.4% (+370%) |
|
ГИДФ (10-5М) |
236±1.8% (+136%) |
269±4.9% (+169%) |
|
ГТФ (10-5М) |
135±1.05% (+35%) |
163±5.1% (+63%) |
|
ГДФβS (10-5М) |
95±1.2% (-5%) |
92±2.4% (-8%) |
|
Инсулин + ГТФγS |
473±2.5% (+373%) [109%] |
726±20.3% (+626%) [170%] |
|
Инсулин + ГИДФ |
399±8.2% (+299%) [41%] |
441±12.3% (+341%) [86%] |
|
Инсулин + ГТФ |
277±10.1% (+177%) [20%] |
279±8.4% (+179%) [30%] |
|
Инсулин + ГДФβS |
102±5.4% (+2%) [-17%] |
105±4.3% (+5%) [-86%] |
Примечание: в круглых скобках – активирующий АЦ эффект используемых агентов в% по отношению к базальной активности, принятой за 100%. В квадратных скобках – потенцирование эффекта гормона в присутствии гуаниновых нуклеотидов в %.
Согласно представленным данным, ГТФγS, ГИДФ, ГТФ стимулируют активность АЦ в мышечных мембранах крыс и моллюсков. При совместном действии инсулина и гуаниновых нуклеотидов происходит усиление (потенцирование) эффекта гормона по сравнению с аддитивным эффектом гормона и гуаниновых нуклеотидов, действующих раздельно - в присутствии ГТФγS, ГИДФ и ГТФ на +109%, +41% и +20% у крыс и на +170%, 86% и 30% у моллюсков (табл. 6). ГДФβS же напротив снижает АЦ стимулирующий эффект инсулина как в мышцах крыс, так и моллюсков.
Потенцирование эффекта инсулина в присутствии ГТФγS, ГИДФ, ГТФ и отсутствие потенцирующего эффекта в присутствии ГДФβS свидетельствует о вовлеченности Gs-белков в АЦ сигнальный механизм действия пептидов инсулинового суперсемейства.
Таблица 7. Влияние коклюшного и холерного токсинов на базальную, инсулин- и ИФР1-стимулируемую активность АЦ в скелетных мышцах крысы и моллюска A.cygnea
|
Активность АЦ (пкмоль цАМФ/мин/мг белка) |
||||
|
Воздействия |
Скелетные мышцы крысы |
Гладкие мышцы моллюска |
||
|
Без КТ |
+КТ |
Без КТ |
+КТ |
|
|
Без пептидов |
39.7±3.4 |
48.5±2.0 |
63.2±4.1 |
69.1±9,6 |
|
(100%) |
(100%) |
(100%) |
(100%) |
|
|
Инсулин |
67.9±3.6 |
48.2±2.7 |
200.5±14.4 |
74.2±7.6 |
|
10-9М |
(171%) |
(99%) |
(317%) |
(108%) |
|
ИФР-1 |
57.4±2.1 |
43.1±1.6 |
139.2±12.4 |
76.8±7.3 |
|
10-9М |
(145%) |
(89%) |
(220%) |
(111%) |
|
Без ХТ |
+ХТ |
Без ХТ |
+ХТ |
|
|
Без пептидов |
39.6±2.6 |
79.7±2.7 |
47.4±3.0 |
94.3±5.6 |
|
(100%) |
(100%) |
(100%) |
(100%) |
|
|
Инсулин |
69.3±2.8 |
105.8±7.4 |
151.7±9.8 |
134.0±7.5 |
|
10-9М |
(175%) |
(133%) |
(320%) |
(142%) |
|
ИФР-1 |
56.7±4.2 |
106.2±6.5 |
100.0±5.4 |
122.6±8.8 |
|
10-9М |
(143%) |
(133%) |
(210%) |
(130%) |
Примечание: В скобках – активность АЦ в%. Активность АЦ без пептидов принята за 100%.
Для выяснения типов G белков, вовлеченных в АЦ сигнальный механизм действия инсулина и ИФР-1 были использованы бактериальные токсины (коклюшный и холерный), которые модифицируют α-субъединицы Gi и Gs белков.
Коклюшный токсин вызывает АДФ-рибозилирование αi-субъединицы Gi белка, что ведет к потере его функциональной активности (Milligan, 1988; Reisine, 1990). Известно, что βγ-димер Gi белка обладает собственной регуляторной способностью и может стимулировать активность ФИ-3-К. Обработка мышечных мембран крысы и моллюска коклюшным токсином приводила к блокированию АЦ стимулирующего эффекта, как инсулина, так и ИФР-1 (таблица 7), что можно объяснить нарушением диссоциации гетеротримерного Gi белка на αi-субъединицу и βγ димер в условиях действия коклюшного токсина.
Таким образом, коклюшный токсин, предотвращая индуцируемую инсулином или ИФР-l стимуляцию активности ФИ-3-К, реализуемую через βγ-зависимый механизм, тормозит активацию АЦ.
Влияние холерного токсина на мембраны приводит к блокаде ГТФ-азной активности αs-субъединицы и тем самым переводит её в перманентно активированное состояние. В связи с этим обработка мембран холерным токсином может повлечь за собой стимулирование каталитической активности АЦ и наряду с этим ослабление регуляторных эффектов гормонов, действие которых на АЦ осуществляется через Gs белок (Milligan, 1988; Reisine, 1990). Обработка фракции мышечных мембран крысы и моллюска холерным токсином приводит к 2х-кратному увеличению базальной активности АЦ и снижению стимулирующего эффекта инсулина и ИФР-1 на активность фермента (таблица 7), что полностью согласуются со сведениями литературы и указывает на вовлеченность Gs белка в активацию АЦ с участием инсулина или ИФР-1.
Таким образом, совокупность данных, полученных с использованием коклюшного и холерного токсинов, указывает на участие как Gi, так и Gs белков в АЦ сигнальном механизме действия инсулина и ИФР-l.
Участие фосфатидилинозитол-3 киназы в реализации АЦ стимулирующего эффекта инсулина и ИФР-1
Для выяснения участия ФИ-3-К в АЦ сигнальном механизме действия пептидов инсулинового суперсемейства (инсулина и ИФР-1) был использован специфический ингибитор этого фермента - вортманнин. Инкубация мышечных мембран крысы и моллюска с вортманнином (10-9–10-7М) несколько снижает базальную активность АЦ (таблица 8). В отсутствии ингибитора инсулин и ИФР-1 отчетливо стимулируют активность АЦ. Между тем, АЦ стимулирующий эффект инсулина и ИФР-1 снижается в зависимости от концентрации ингибитора (10-9–10-7М). Ингибирующее действие вортманнина было наиболее выражено при концентрации 10-7М (таблица 8). Установленные факты свидетельствуют об участии ФИ-3-К в АЦ сигнальном механизме действия инсулина и ИФР-1 в мышечных тканях изучаемых объектов.
Таблица 8. Влияние вортманнина (10–9М–10–7М) на стимуляцию ИФР-1 (10–8М) и инсулином (10–8 М) активности АЦ в мембранной фракции скелетных мышцах крыс и гладких мышц моллюска Anodonta cygnea
|
Активность АЦ (пкмоль цАМФ/мин/мг белка) |
||||||
|
объекты |
Крысы |
Моллюски |
||||
|
воздействия |
без пептида |
ИФР-l |
инсулин |
без пептида |
ИФР-l |
инсулин |
|
без ворманнина |
21±1.6 |
38.2±1.0* |
41.4±2.3* |
17.8±1.0 |
41.1±2.6* |
24.5±1.0* |
|
+вортманнин 10–9М |
17.9±2.0 |
9.4±1.3 |
9.7±1.4 |
15.8±2.0 |
14.6±1.3 |
14.2±0.4 |
|
+вортманнин 10–8М |
16.5±2.3 |
8.6±1.3 |
8.4±1.3 |
14.6±2.3 |
13.9±0.8 |
11.6±1.0 |
|
+вортманнин 10–7М |
13.2±1.9 |
6.3±0.9 |
6.8±0.8 |
14.3±0.9 |
13.8±1.8 |
7.4±0.5 |
Примечание: значения активности АЦ в присутствии пептидов, достоверно отличающиеся от активности фермента в отсутствии пептидов (р<0.05), отмечены звездочкой.
Для проверки гормоноспецифичности ингибирующего действия вортманнина на АЦ стимулирующие эффекты инсулина и ИФР-1 были использованы изопротеренол и серотонин, гормоны неродственные пептидам инсулиновой природы и реализующие действие через рецептор серпантинного типа, не связанный с ФИ-3-К сигнальной системой. Результаты этих опытов показали отсутствие влияния вортманнина на катехоламинчувствительную АЦ сигнальную систему (данные приведены в диссертации). Этот факт указывает на участие ФИ-3-К в, обнаруженным нами, АЦ сигнальном механизме действия инсулина и ИФР-1.
Участие протеинкиназы С в АЦ сигнальном механизме действия пептидов инсулинового суперсемейства
Для доказательства участия ПКС в АЦ сигнальном механизме действия пептидов инсулиновой природы использовали селективный блокатор ПКС – кальфостин (Yoing et al., 2005). В отсутствии кальфостина АЦ активирующий эффект инсулина и ИФР-1 составлял +101% и +73% у крыс, и +78% и +86% у моллюсков соответственно, по отношению к базальной АЦ, принятой за 100%. Как обнаружено нами, кальфостин (10-10–10-8М) блокировал АЦ стимулирующие эффекты инсулина и ИФР-1 в мембранных фракциях мышц крысы и моллюска. Наиболее выраженный ингибирующий эффект кальфостина обнаруживается при концентрации 10-8М. В присутствии кальфостина (10-8М) АЦ стимулирующий эффект инсулина и ИФР-1 снижался на 46% и 32% у крыс, и на 47% и 50% у моллюсков, соответственно, по отношению к максимальному АЦ стимулирующему эффекту пептидов, принятому за 100% (данные в диссертации).
Для идентификации изоформы ПКС, участвующей в АЦ сигнальном механизме действия пептидов инсулиновой природы использовали моноклональные антитела к ПКСζ, которая по данным литературы является одним из участников реализации сигналов инсулиновой природы.
Таблица 9. Влияние антител к ПКСζ на АЦ активирующий эффект ИФР-1 (10-8М) и инсулина (10-8М) в мышечных мембранах крысы и моллюска A.cygnea
|
Активность АЦ ( |
||||||
|
Объекты |
Крысы |
Моллюски |
||||
|
Воздейтсвия |
Без пептида |
ИФР-1 |
Инсулин |
Без пептида |
ИФР-1 |
инсулин |
|
без антител |
100±4.4 |
253±17 |
247±24 |
100±12 |
307±24 |
255±18 |
|
АТ 1:1000 |
104±9.5 |
102±14 |
108±16 |
166±25 |
251±21 |
254±12 |
|
АТ 1:100 |
98±8.2 |
95±12 |
103±5 |
163±18 |
327±27 |
237±20 |
|
АТ 1:10 |
94±6.8 |
68±3.6 |
88±8 |
145±5 |
403±33 |
238±25 |
Активность АЦ выражена в % к контрольным величинам, принятым за 100%.
Антитела к ПКСζ почти полностью блокировали АЦ стимулирующий эффект инсулина и ИФР-1 в мышечных мембранах крыс (таблица 9). Таким образом, использование моноклональных антител к ПКСζ показало, что эта изоформа фермента вовлечена в стимулирующее действие инсулина и ИФР-1 на АЦ в скелетных мышцах крыс. Между тем, в гладких мышцах моллюска эти антитела не оказывали блокирующего действия на АЦ стимулирующий эффект инсулина и ИФР-1. Мышцы моллюска обладают иным набором ПКС (Sossin et а1., 1996) и в АЦ стимулирующем действии этих пептидов инсулинового суперсемейства, по-видимому, участвует другая изоформа ПКС, близкая по своим свойствам к ПКСε из мозга позвоночных.
Таким образом, настоящее исследование привело к обнаружению и расшифровке ранее неизвестного АЦ сигнального механизма действия инсулина, ИФР-1 и ИПП моллюска в мышечных тканях позвоночных и беспозвоночных животных. Этот механизм имеет принципиально сходную структурно-функциональную организацию в случае инсулин- ИФР-1- и ИПП-компетентных АЦ сигнальных систем. Он может быть представлен в клетке шестикомпонентным сигнальным каскадом: рецептор-тирозинкиназа Ю Gi-белок (βγ-димер) Ю фосфатидилинозитол-3-киназа Ю протеинкиназа Сz Ю Gs-белок Ю аденилатциклаза. АЦ является генератором внутриклеточного посредника – цАМФ, который способен через активацию цАМФ-зависимой протеинкиназы “A” передавать гормональный сигнал к различным эффекторным системам.
В плане изучения функциональной роли, обнаруженного нами, АЦ сигнального механизма, генерирующего цАМФ, было исследовано его участие в реализации регуляторного действия пептидов инсулиновой природы на такие фундаментальные клеточные процессы, как клеточный рост и апоптоз.
Участие АЦ сигнального механизма в митогенном действии пептидов инсулиновой природы
Для изучения митогенного действия пептидов инсулинового суперсемейства мы использовали фибробластоподобную культуру клеток Swiss 3T3, любезно предоставленную нам из банка культур Института цитологии РАН (Санкт-Петербург). Проведена функциональная характеристика АЦ системы в культуре Swiss3T3 клеток. Установлено, что АЦ система в культуре этих клеток
Таблица 10. Функциональные свойства АЦС культуры Swiss3T3 клеток
|
Воздействия |
Активность АЦ (пкмоль цАМФ/мин/мг белка) |
Стимулирующий АЦ эффект в % |
|
Базальная |
30.59±1.41 |
100% (базальная) |
|
NaF 10-2 М |
178.91±4.15 |
585% (+485%) |
|
форсколин 10-5 М |
99.26±3.21 |
324% (+224%) |
|
ГИДФ 10-6 М |
111.20±3.48 |
364% (+264%) |
|
ГТФ 10-5 М |
82.98±2.92 |
271% (+171%) |
|
ЭФР 10-9 М |
168.31±4.75 |
550% (+450%) |
|
ИФР-1 10-9 М |
102.14±3.34 |
334% (+224%) |
|
Инсулин 10-9 М |
74.89±2.11 |
245% (+145%) |
В скобках – активирующий АЦ эффект агентов гормональной и негормональной природы (в%), по отношению к базальной активности АЦ, принятой за 100%, стимулируется классическими негормональными активаторами АЦ - NaF, форсколином, ГИДФ, ГТФ, а также инсулином, ИФР-1 и ЭФР (таблица 10).
Проведенные нами исследования показали, что в культуре Swiss 3T3 присутствует АЦС с функциональными свойствами, близкими к АЦС других клеток и тканей позвоночных, которая способна к восприятию внеклеточных сигналов различной природы.
Оценив функциональные свойства АЦ сигнальной системы культуры Swiss3T3 клеток, была исследована способность инсулина, ИФР-1 и ЭФР индуцировать в культуре клеток Swiss3T3 митогенный эффект, оцениваемый по включению [14C]-тимидина в ДНК (Рис. 15-1). Показано, что инсулин (1000 нг/мл), ИФР 1 (50 нг/мл) и ЭФР (10 нг/мл) стимулировали синтез ДНК (прирост от 100% до 250%).
Исследуемые пептиды в тех же концентрациях оказывали стимулирующее влияние (2,5 мин) на активность АЦ. (Рис. 15-2). Для подтверждения участия цАМФ в реализации митогенного эффекта был использован его дибутириловый аналог цАМФ, обладающий способностью проникать в клетку. Этот аналог, взятый при низких концентрациях (10-12-10-9 М), вызывал четкий митогенный эффект, по величине даже превосходящий аналогичный эффект ЭФР и ИФР-1. Эффект оценивали по включению [14C]-тимидина в ДНК (Рис. 15-3).
Представленные экспериментальные данные подтверждают нашу гипотезу (Перцева, 2000) об участии АЦ сигнального механизма действия пептидов инсулинового суперсемейства и, продуцируемого им цАМФ, в реализации митогенных процессов.
Участие аденилатциклазного сигнального механизм в антиапоптотическом действии инсулина и инсулиноподобного фактора роста 1
Нами подобрана модель апоптоза, включающая клеточные линии, с разной степенью устойчивости к условиям, вызывающим незапрограммированную гибель клеток (апоптоз). В экспериментах использовали культуру клеток E1A+cHa-ras, обладающую высокой проапоптотической чувствительностью к удалению ростовых факторов и действию ДНК-повреждающих агентов («впадают в апоптоз») (Bulavin et al., 1999) и культуру клеток Е1А+Е1В с высокой устойчивостью как к действию ДНК повреждающих агентов, так и к удалению ростовых факторов из среды («не впадают в апоптоз»). В клеточных культурах была охарактеризована чувствительность АЦС к действию инсулина и ИФР-1 (Таблица 11).
Полученные результаты свидетельствуют о том, что клетки культуры линий Е1А+сНа-ras и Е1А+Е1В способны отвечать на действие инсулина и ИФР-1 (10-8М) активацией АЦ, что указывает на наличие в них рецепторов инсулина и ИФР-1, а также АЦС, чувствительной к этим пептидам. Клетки сохраняют чувствительность АЦС к инсулину и ИФР-1 как в среде с 10% сывороткой, так и в среде с 0.5% сывороткой.
Согласно данным литературы пептиды инсулинового суперсемейства – инсулин и ИФР-1, а также цАМФ, образующийся в результате активации АЦ, способны оказывать антиапоптотическое действие на клетки. Показано, что инсулин (10-7М), ИФР-1 (10-8М) и дибутирил-цАМФ (10-9М) оказывают ингибирующее влияние на апоптоз, вызванный удалением ростовых факторов сыворотки, в культуре клеток E1A+cHa-ras (Плеснева, 2003). Оценка антиапоптотического эффекта инсулина, ИФР-1 и дибутирил-цАМФ проводилась на клетках культуры E1A+cHa-ras с использованием метода клоногенной выживаемости, который относится к числу наиболее чувствительных способов тестирования антиапоптотического действия агентов. Обнаружено, что культивирование
Таблица 11. Влияние инсулина и ИФР-1 на активность АЦ в грубой мембранной фракции культур клеток E1A+cHa-ras и E1A+E1B
|
Условия |
Активность АЦ (пмоль цАМФ/мин/мг белка) |
||||||
In vitro |
E1A+cHa-ras (клетки, впадающие в апоптоз) |
Е1А+Е1В (клетки, не впадающие в апоптоз) |
|||||
|
Контроль |
Инсулин |
ИФР-1 |
Контроль |
Инсулин |
ИФР-1 |
||
|
Среда + 10% сыворотка |
33.9±3.4 (100) |
48.1±2.1 (142) |
56.4±1.3 (166) |
4.9±0.5 (100) |
14.3±1.2 (292) |
17.6±1 (359) |
|
|
Среда + 0.5% сыворотка (апоптоз) |
95,9±3,4 (100) |
137,0±9,0 (143) |
181,6±8,2 (189) |
26.7±0.5 (100) |
61.4±1.2 (230) |
86.3±2.1 (323) |
|
In vivo |
E1A+cHa-ras (клетки, впадающие в апоптоз) |
Е1А+Е1В (клетки, не впадающие в апоптоз) |
|||||
|
Контроль |
Инсулин |
ИФР-1 |
Контроль |
Инсулин |
ИФР-1 |
||
|
Среда +10% сыворотка |
4.1±0.29 (100) |
6.0±0.9 (146) |
12.2±0.5 (297) |
5.2±0.3 (100) |
8.5±1.0 (163) |
11.4±1.3 (219) |
|
|
Среда + 0.5% сыворотка (апоптоз) |
11.0±1.2 (100) |
17.2±1.2 (156) |
24.8±2.2 (225) |
5.8±0.6 (100) |
10.0±0.7 (172) |
13.6±0.6 (234) |
|
Примечание. В опытах in vitro гормоны (10-8М) добавляли прямо в пробу, содержащую грубую мембранную фракцию клеток, для определения активности АЦ. Время инкубации 2.5 мин. В опытах in vivo инсулин (10-7М) и ИФР-1 (10-8М) добавляли к культурам клеток, время инкубации 5 мин. Цифры в скобках - эффект гормонов в процентах к контролю, принятому за 100%. Апоптоз индуцировали удалением ростовых факторов сыворотки из среды.
Трансформантов на среде без ростовых факторов уменьшает число живых клеток, способных дать потомство в клональном посеве минимум в 2 раза, по сравнению с клетками, культивируемыми в нормальных условиях (среда+10% сыворотки).
Показано, что только 43% культуры клеток «выживают» в условиях, когда клетки впадают в апоптоз (среда +0.5% сыворотки) по сравнению с контролем (среда+10% сыворотка, принято за 100%). В экспериментах, когда в среду с 0,5% сывороткой был добавлен инсулин, ИФР-1 или дибутирил-цАМФ в указанных выше концентрациях, способность клеток давать жизнеспособное потомство восстанавливалась до значений, составляющих около 70% (для инсулина: 77%, для ИФР-1: 67%, для дибутирил цАМФ: 66% по сравнению с контролем, принятым за 100%).
Таким образом, эксперименты показали способность инсулина и ИФР-1 через, обнаруженный нами, АЦ сигнальный механизм и продуцируемый им цАМФ, оказывать митогенное и антиапоптотическое действие в клеточных культурах.
Исследования подтверждают участие АЦ сигнального механизма в реализации антиапоптотического действия пептидов инсулинового ряда - инсулина и ИФР-1.
Функциональное состояние АЦ сигнального механизма действия инсулина при сахарном диабете
На основе концепции молекулярных дефектов в гормональных сигнальных системах как ключевых причин эндокринных заболеваний (Перцева, 2004) исследовано функционирование АЦ сигнального механизма при экспериментальном стрептозотоциновом сахарном диабете 1-го и 2-го типа у позвоночных (крысы) и диабетоподобном состоянии у беспозвоночных (моллюски).
Диабет вызывали однократным введением (i.p.) стрептозотоцина (80 нг/г веса животного). На 30-сут стрептозотоцинового диабета обнаружена гипергликемия в крови крыс, в 4,2 раза превышающая уровень глюкозы у контрольных крыс. Впервые выявлено увеличение уровня глюкозы в гемолимфе моллюсков (в 2,5 раза) на 2-е и 4-е сутки развития диабетоподобного состояния. Обнаружено при диабете снижение АЦ-стимулирующего эффекта инсулина и его потенцирования гуаниновыми нуклеотидами у крыс и у моллюсков.
Инсулин независимый диабет (2-го типа) вызывали введением новорожденным крысятам (1-2 сут) однократно стрептозотоцина (80 нг/г веса животного). При этом типе диабета также возникают нарушения в АЦ сигнальном механизме действия инсулина. АЦ стимулирующий эффект инсулина и потенцирование не проявляется.
На основании полученных данных выявлены функциональные дефекты в АЦ сигнальном механизме действия инсулина при диабете, в мышцах крыс и моллюсков, затрагивающие дистальные звенья АЦ сигнального механизма на уровне каталитического компонента – АЦ, Gs-белка и его сопряжения с АЦ.
Заключение
Настоящее исследование привело к обнаружению и расшифровке ранее неизвестного АЦ сигнального механизма действия инсулина, ИФР-1 и ИПП моллюска в мышечных тканях позвоночных и беспозвоночных животных. Эти оригинальные данные расширяют современные представления о круге сигнальных путей действия пептидов инсулинового суперсемейства и способствуют формированию нового позитивного взгляда на вовлеченность АЦ сигнального механизма в действие гормонов и ростовых факторов инсулиновой природы, осуществляемого через рецепторы тирозинкиназного типа. До наших исследований в литературе существовала точка зрения об участии АЦ сигнального механизма только в действии гормонов, обладающих рецепторами серпантинного типа.
Важными представляются доказательства, полученные в работе, о распространенности обнаруженного АЦ сигнального механизма действия изученных пептидов в тканях как позвоночных, так и беспозвоночных животных. Установлена принципиально сходная структурно-функциональная организация инсулин-, ИФР-1- и ИПП-компетентной АЦ сигнальных систем. На современном этапе наших исследований она представлена в клетке шестикомпонентным сигнальным каскадом: рецептор-тирозинкиназа Ю Gi-белок (βγ-димер) Ю фосфатидилинозитол-3-киназа Ю протеинкиназа Сz Ю Gs-белок Ю аденилатциклаза. АЦ сигнальный механизм охватывает стадии от рецептора тирозинкиназного типа до фермента – АЦ, являющейся генератором вторичного внутриклеточного посредника – цАМФ. Образовавшийся цАМФ способен через активацию цАМФ-зависимой протеинкиназы “A” передавать гормональный сигнал к различным эффекторным системам.
Открытый нами АЦ сигнальный механизм действия пептидов инсулиновой природы по своей структурно-функциональной организации наряду со сходством, обладает и существенными отличиями от известных до сих пор гормональных АЦ сигнальных систем. Эти отличия сводятся:
- во-первых, к участию в одном АЦ сигнальном механизме сразу дух типов гетеротримерных G-белков (Gs и Gi), которые обычно вовлечены в разные сигнальные системы;
- во-вторых, к взаимодействию рецепторов тирозинкиназного типа, специфичных для гормонов инсулиновой группы с Gi-белком, выступающим в качестве донора βγ субъединиц, а не αi-субъединицы как во многих других сигнальных системах.
- в-третьих, к большему числу, составляющих его блоков (шесть компонентов, во всяком случае) по сравнению с трехкомпонентным АЦ сигнальным механизмом действия биогенных аминов (рецептор серпантинного типа Ю Gs или Gi-белок Ю АЦ);
За период, прошедший со времени обнаружения нами АЦ сигнального механизма действия пептидов инсулинового суперсемейства (Plesneva et.al., 1994; Kuznetsova et al., 1999; Plesneva et al., 2001) в литературе появились данные, касающиеся отдельных его сигнальных блоков, подтверждающие установленную нами структурно-функциональную организацию этого АЦ сигнального механизма. Так показано, что рецепторы инсулина и ИФР-1 функционально сопряжены с Gi-белком (Kuemmerle, Murthy, 2001; Dupont et al., 2003; Kreuzer et al., 2004). Также установлено участие ФИ-3-К и ПКСz и связь их с продукцией цАМФ в ряде сигнальных путей действия пептидов инсулинового суперсемейства (Dessauer, Nguyen, 2005; Nguyen, Dessauer, 2005).
В плане изучения спектра функций, обнаруженного нами АЦ сигнального механизма, генерирующего цАМФ, установлено его участие в реализации регуляторного действия пептидов инсулиновой природы на такие фундаментальные клеточные процессы, как клеточный рост (стимуляция) (Плеснева и др. 1999) и апоптоз (ингибирование) (Плеснева и др., 2003), способствующие в итоге выживанию клетки.
Таким образом, выдвинутая нами гипотеза (Перцева, 2001) о важной роли АЦ сигнального механизма в реализации регуляторного действия инсулина и ИФР-1 на жизненно-важные клеточные процессы – клеточный рост, апоптоз нашла подтверждение в наших исследованиях (Плеснева и др., 1999; Плеснева и др., 2003).
Основываясь на эволюционном подходе Л.А. Орбели ко всем изучаемым явлениям (Орбели, 1958) мы использовали комплекс методов эволюционной физиологии применительно к изучению биохимических систем организма. Исследование включало несколько аспектов: а) изучение трех эволюционно родственных пептидов инсулинового суперсемейства – инсулина и ИФР-1 позвоночных, а также ИПП беспозвоночных (моллюска Anodonta cygnea); б) изучение действия этих пептидов на АЦС в тканях-мишенях животных разного филогенетического уровня (позвоночные – млекопитающие и птицы; а также беспозвоночные – моллюск Anodonta cygnea); в) часть исследований (птицы) проведена в онтогенезе; г) исследованы АЦ сигнальные механизмы действия пептидов инсулинового суперсемейства и выявлены функциональные нарушения в них при патологии – сахарном диабете.
В плане развиваемой в лаборатории концепции (Перцева, Шпаков, 2004) молекулярных дефектов в гормональных сигнальных системах как ключевых причин эндокринных заболеваний проведено исследование функциональных нарушений в АЦ сигнальном механизме действия инсулина и ИФР-1, возникающих при сахарном диабете. Впервые обнаружены дефекты в этом сигнальном механизме на уровне каталитического компонента – АЦ, Gs-белка и его сопряжения с АЦ, а также ослабление регуляторных метаболических эффектов гормона у крыс с экспериментальным стрептозотоциновым диабетом 1-го и 2-го типов.
Использование эволюционного подхода позволило выявить не только существование АЦ сигнального механизма действия ряда пептидов инсулинового суперсемейства у