Роль эндофрина в нейроэндокринной регуляции функций иммунной системы
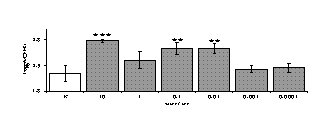
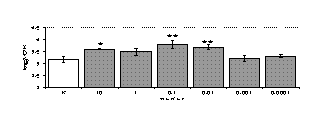
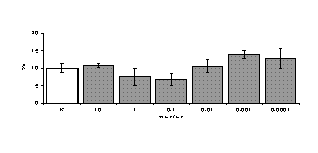
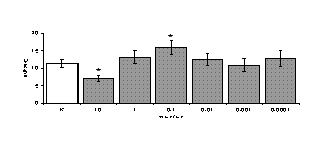
Рис. 3. Влияние DADLE на относительное и абсолютное число АОК, выраженность реакции ГЗТ и клеточность в регионарном лимфатическом узле в индуктивную фазу иммунного ответа.
* - p<0,05; ** - p<0,01; *** - p<0,001 к контролю по t-критерию Фишера наименьшей значимой разницы.
на клеточноопосредованный ответ. Способность пептида взаимодействовать с d-рецептором проявилась только при введении высокой дозы, что, в свою, очередь указывает на возможность реализации через d-рецептор иммуносупрессивных эффектов, напротив блокада m-рецепторов отменяет эффекты пептида независимо от вводимой дозы. В эффекторную фазу влияния β-эндорфина на иммунный ответ не выявляется.
Параллельно нами изучалось сравнительное влияние селективных m и d-агонистов на выраженность локального иммунного ответа. Как видно из рис. 3, в индуктивную фазу иммунного ответа введение d-агониста DADLE в дозах 10,0; 0,1; 0,01 мкг/мл стимулирует количество АОК по абсолютным и относительным параметрам, не влияет на степень выраженности иммунного воспаления (ГЗТ) и оказывает разнонаправленное действие на клеточность регионарного лимфатического узла, при этом в дозе 10 мкг/кг угнетая, а в дозе 0,1 мкг/кг - увеличивая содержание ЯСК. Введение m-агониста DAGO статистически достоверно влияет только на относительное число АОК и клеточность регионарного лимфатического узла. В дозах 10,0; 1,0; 0,0001 мкг/кг пептид активирует образование антителопродуцентов по относительным показателям и в диапазоне доз 10-
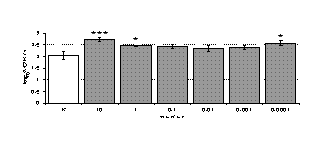
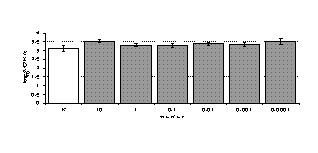
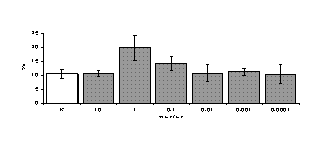
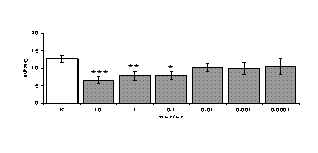
Рис. 4. Влияние DAGO на относительное и абсолютное число АОК, выраженность реакции ГЗТ и клеточность в регионарном лимфатическом узле в индуктивную фазу иммунного ответа.
* - p<0,05; ** - p<0,01; *** - p<0,001 к контролю по t-критерию Фишера наименьшей значимой разницы.
0.1 мкг/кг угнетает количество ЯСК (рис. 4). Таким образом, по нашим данным, в системе in vivo эффекты b-эндорфина и аналогов энкефалинов с m,d-селективным спектром связывания DAGO и DADLE значительно варьируют по направленности действия, эффективному диапазону доз, взаимодействию с опиатных рецепторов различных типов, а так же зависят от этапа, на котором конкретный опиоидный пептид вмешивается в развитие иммунных реакций. В то же время наиболее выраженное активирующее влияние наблюдается при введении экспериментальным животным селективного агониста d-рецепторов DADLE.
Влияние β-эндорфина, 88-91 фрагмента липотропина MPF, селективных лигангдов DAGO, DADLE на пролиферативный ответ лимфоцитов. Степень выраженности эффектов исследуемых опиоидных пептидов в системе in vitro зависит от их концентрации и присутствия митогена в культуральной среде. Все лиганды опиатных рецепторов проявляют активность только на стимулированных митогеном культурах. Как видно из рис. 5, b-эндорфин в концентрации 10-7М статистически значимо усиливает пролиферативный ответ лимфоцитов в культурах с ФГА 5 мкг/мл. Внесение пептида в культуры
A
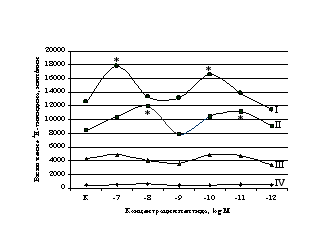
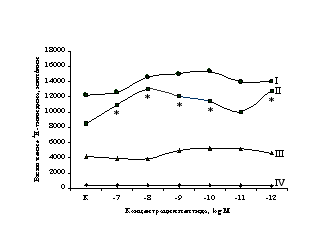
Рис. 5. Влияние b-эндорфина (A) и DAGO (Б) на ФГА-индуцированный пролиферативный ответ лимфоцитов.
Здесь и на рис. 6: I - ФГА 5 мкг/мл, II - ФГА 2,5 мкг/мл, III - ФГА 1,25 мкг/мл, IV – без внесения ФГА. Число наблюдений в группах с b-эндорфином n=9, в группах с DAGO - n=8. * - р<0.05 к контролю по парному t-критерию Фишера наименьшей значимой разницы..
в концентрации 10-8М приводит к стимуляции реакции бласттрансформации в присутствии ФГА 2,5 мкг/мл. Низкие (10-10, 10-11М) концентрации b-эндорфина стимулируют пролиферативный ответ в культурах с ФГА 5,0 и 2,5 мкг/мл соответственно. Внесение b-эндорфина в концентрации 10-12М, отражающей фоновый уровень пептида в плазме крови, не оказывает существенного влияния на пролиферацию лимфоцитов. А.А. Зозулей и С.Ф. Пшеничкиным (1990) высказано предположение, что иммуномодулирующие эффекты b-эндорфина могут проявляться через С-концевой участок пептидной цепи, невзаимодействующий с d-, m-рецепторами. В связи с этим представлял интерес анализ эффектов С-концевого тетрапептида b-эндорфина MPF (меланотропин-потенциирующего фактора) на пролиферативную активность лимфоцитов периферической крови. Как видно из рис. 6, MPF ни в одной из исследуемых концентраций статистически значимых эффектов на спонтанную и индуцированную митогеном пролиферацию лимфоцитов не оказывает. Это позволяет предположить, что выявленный стимулирующий эффект b-эндорфина на пролиферативную активность лимфоцитов не опосредуется через его С-концевой участок.
В связи с тем, что b-эндорфин N-концевой последовательностью связывается как с m-, так и d-опиатными рецепторами и не ясно, какой тип рецепторов в данном случае является основным проводником сигнала с поверхности клетки, мы сопоставили его эффекты на
A
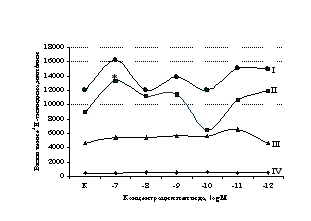
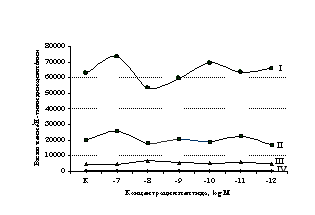
Рис. 6. Влияние DADLE (А) и MPF (Б) на ФГА-индуцированный пролиферативный ответ лимфоцитов.
Число наблюдений n=8. пролиферацию с эффектами селективных m- и d-агонистов. Данные о влиянии синтетического селективного агониста μ-опиатных рецепторов DAGO на пролиферативную активность лимфоцитов периферической крови представлены в рис. 5. Анализ зависимости эффектов от концентрации показал, что DAGO в высоких и низких концентрациях достоверно усиливает пролиферативный ответ лимфоцитов исключительно в присутствии субоптимальной концентрации (2,5 мкг/мл) митогена. На спонтанный пролиферативный ответ DAGO подобно b-эндорфину влияния не оказывает.
Аналогичные результаты получены при анализе влияния селективного d-агониста DADLE на пролиферацию лимфоцитов (см. рис. 6). Выявлено, что DADLE усиливает включение 3Н-тимидина лимфоцитами по сравнению с контролем в присутствии ФГА 2,5 мкг/мл и высокой концентрации (10-7 М) данного пептида.
В дальнейшем проводилась сравнительная оценка влияния β-эндорфина на пролиферативный ответ на фоне блокады опиатных рецепторов в нефракционированных и фракционированных, очищенных от моноцитов, лимфоцитарных культурах. Как видно из рис. 7, в нефракционированной лейкоцитарной суспензии стимулирующий эффект b-эндорфина на пролиферативный ответ не отменяется, а напротив, усиливается. При удалении моноцитов из фракции мононуклеаров b-эндорфин (F=13,07; p=0,006) и налоксон (F=10,21; p=0,011) оказывают высоко достоверные
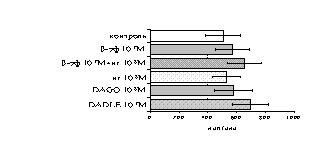
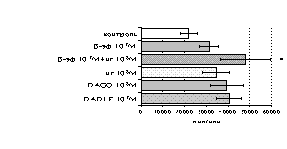
Рис. 7. Эффекты b-эндорфина на фоне блокады опиатных рецепторов, DAGO и DADLE на спонтанную (A) и индуцированную ФГА 2,5 мкг/мл (Б) пролиферативную активность лимфоцитов в нефракционированных клеточных культурах.
* - р<0,05 к контролю по парному t-критерию Стъюдента.
самостоятельные эффекты на ФГА-индуцированную пролиферацию, не проявляя статистически значимого взаимодействия между собой (F=4,08; p=0,074). Последующее сравнение средних величин показало, что направленность эффектов опиоидных пептидов противоположна влиянию, оказываемому b-эндорфином и налоксоном в присутствии фракции моноцитов (рис. 8). В частности, выраженное угнетение пролиферации лимфоцитов как по сравнению с контролем, так и с b-эндорфином наблюдается при совместном внесении в культуры b-эндорфина и налоксона. Угнетающий эффект на захват 3Н-тимидина лимфоцитами оказывает селективный m-агонист DAGO. Селективный агонист d-рецепторов DADLE на ФГА-индуцированную пролиферативную активность лимфоцитарной фракции не влияет. При этом эффекты исследуемых опиоидов в аналогичных культурах без митогена не обнаруживаются. Проведенный корреляционный анализ выявил статистически достоверную (r=0,73; р<0,05) зависимость между интенсивностью пролиферации лимфоцитов в нефракционированных культурах под воздействием b-эндорфина и в аналогичных культурах, очищенных от фракции моноцитов.
Анализ роли d-рецепторов в регуляции пролиферативного ответа в нефракционированной лейкоцитарной суспензии и фракции лимфоцитов (рис. 9) показал отмену стимулирующего эффекта b-эндорфина налтриндолом во фракции лейкоцитов. Во фракции лимфоцитов b-эндорфин и налтриндол на степень выраженности пролиферации не влияют, что свидетельствует о возможной
А Б
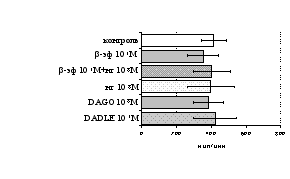
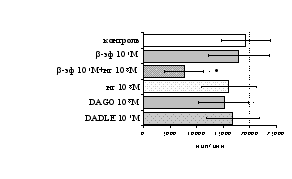
Рис. 8. Эффекты b-эндорфина на фоне блокады опиатных рецепторов, DAGO и DADLE на спонтанную (A) и индуцированную ФГА 2,5 мкг/мл (Б) пролиферативную активность лимфоцитов в клеточных культурах, очищенных от фракции моноцитов.
* - р<0,05 к контролю по парному t-критерию Стъюдента.
А Б
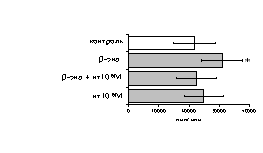
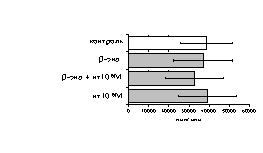
Рис. 9. Эффекты b-эндорфина на фоне блокады d-опиатных рецепторов на индуцированную ФГА 2,5 мкг/мл пролиферативную активность лимфоцитов во фракции лейкоцитов (А) и фракции лимфоцитов (Б).
* - р<0,05 к контролю по парному t-критерию Стъюдента.
реализации стимулирующего эффекта пептида через d-рецептор, но только в присутствии моноцитов.
Учитывая важную регуляторную роль моноцитов, в дальнейшем мы попытались оценить роль IL-1b и продуктов циклооксигеназного цикла в b-эндорфинопосредованной регуляции пролиферативного ответа лимфоцитов в присутствии ФГА (рис. 10А). Все обследованные здоровые доноры были разделены по индивидуальной чувствительности к b-эндорфину на две группы: у 1-й группы пептид стимулировал
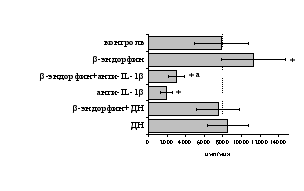
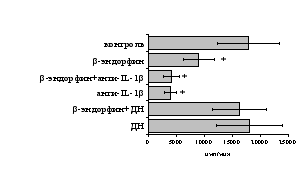
Рис. 10. Влияние b-эндорфина на ФГА-индуцированный пролиферативный ответ лимфоцитов в присутствии анти-IL-1b антител и на фоне блокады синтеза простагландинов ДН у доноров 1-й (А, n=9) и 2-й (Б, n=11) групп.
* - р<0,05 к контролю; а - р< 0,05 к анти-IL-1b по парному t-критерию Стъюдента.
пролиферативный ответ, а у 2-й – угнетал. В первой группе доноров на фоне моноклональных антител к IL-1b наблюдается резкое снижение пролиферативной активности, в то же время при внесении в культуры анти-IL-1b-антител в присутствии b-эндорфина наблюдается некоторое усиление пролиферативного ответа, достоверно отличающееся от культур с анти-IL-1b-антителами, но по сравнению с контролем уровень захвата метки был так же достоверно ниже. Как видно рис. 10Б, у второй группы доноров на фоне анти-IL-1b-антител интенсивность пролиферативного ответа в присутствии b-эндорфина не изменяется.
А
без ФГА ФГА 2,5 мкг/мл
Б
без ФГА ФГА 2,5 мкг/мл
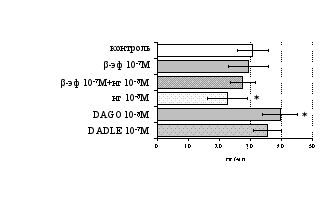
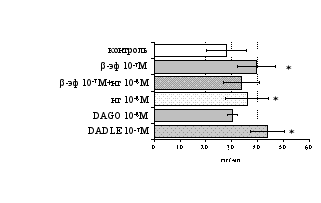
Рис. 11. Влияние b-эндорфина, DAGO, DADLE на продукцию IFN-g в нефракционированной (А) и фракционированной культурах (Б).
Здесь и на рис. 12 число наблюдений n=10. * - р<0,05 к контролю по парному t-критерию Стъюдента.
А
без ФГА ФГА 2,5 мкг/мл
Б
без ФГА ФГА 2,5 мкг/мл
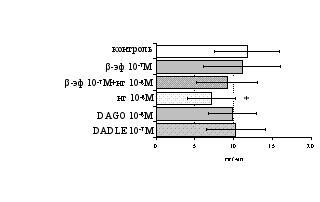
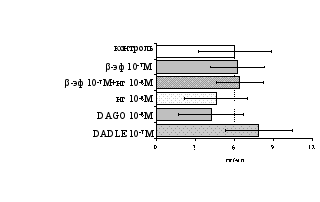
Рис. 12. Влияние b-эндорфина, DAGO, DADLE на продукцию IL-4 в нефракционированной (А) и фракционированной клеточных культурах (Б).
* - р<0,05 к контролю по парному t-критерию Стъюдента.
При культивировании лейкоцитов в присутствии диклофенака натрия как стимулирующий, так и угнетающий эффект b-эндорфина на пролиферативный ответ нивелируется, что подтверждает данные о возможном участии простагландинов (простагландина E2 (PGЕ2), в частности) в регуляции функциональной активности лимфоцитов под воздействием опиоидных пептидов. Таким образом, регуляция функциональной активности лимфоцитов b-эндорфином может опосредоваться как системой IL-1, так и простагландинами.
Влияние β-эндорфина и селективных лигандов опиатных рецепторов на процессы клеточной кооперации и переключение Th1/Th2 цитокинового профиля. Следующим этапом исследований являлось изучение роли b-эндорфина в регуляции продукции IL-4 и IFN-g в супернатантах нефракционированной лейкоцитарной взвеси, лимфоцитарной фракции и культуре CD4+ клеток. Как показано на рис. 11, уровень g-IFN в супернатантах под воздействием b-эндорфина, а также в случае комбинации b-эндорфина с налоксоном не отличается от контроля как в нефракционированных культурах, так и в культурах, очищенных от моноцитов, независимо от присутствия ФГА в среде культивирования. Однако в фракционированных клеточных культурах, стимулированных митогеном, регистрируется эффект селективного d-агониста DADLE на продукцию IFN-g, что, очевидно, обусловлено его прямым эффектом на рецепторные структуры клеточной поверхности лимфоцитов.
На рис. 12 приведены результаты исследования влияния b-эндорфина, DAGO, DADLE на продукцию IL-4 в нефракционированной лейкацитарной суспензии и фракции лимфоцитов. По нашим данным, под воздействием налоксона и DAGO в культурах без митогена регистрируются угнетающий и стимулирующий эффекты соответственно. Выраженный стимулирующий эффект на ФГА-индуцированную продукцию IL-4 оказывают b-эндорфин, налоксон и DADLE. В очищенной фракции лимфоцитов значимых эффектов исследуемые соединения на продукцию IL-4 не выявляется, за исключением угнетающего эффекта
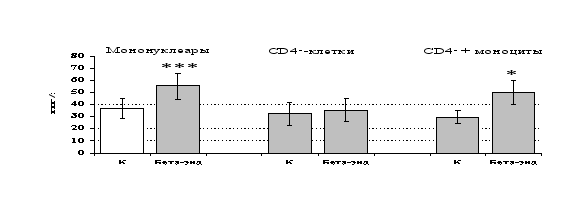
Рис 13. Влияние b-эндорфина 10-7 М на продукцию IL-4 фракцией мононуклеаров, CD4+-лимфоцитами и CD4+-лимфоцитами в присутствии моноцитов в присутствии ФГА 2,5 мкг/мл.
* - р < 0,05; ** - р < 0,01; *** - р < 0,001 к контролю по парному t-критерию Стъюдента.
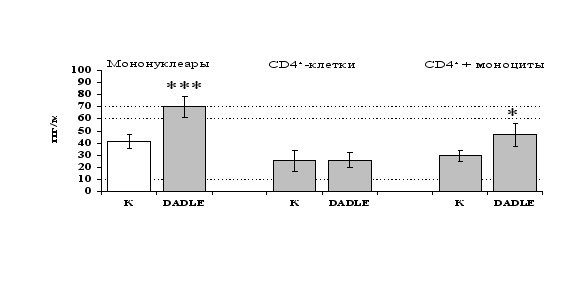
Рис 14. Влияние DADLE 10-7 М на продукцию IL-4 фракцией мононуклеаров, CD4+-лимфоцитами и CD4+-лимфоцитами в присутствии моноцитов в присутствии ФГА 2,5 мкг/мл.
* - р < 0,05; ** - р < 0,01; *** - р < 0,001 к контролю по парному t-критерию Стъюдента.
налоксона, зарегистрированного в культурах без добавления митогена. Корреляционный анализ выявил отрицательную зависимость (r=-0,68; р<0,05) между интенсивностью пролиферации и уровнем IL-4 в культурах с совместным внесением b-эндорфина и налоксона в присутствии ФГА. Таким образом, b-эндорфин, налоксон и селективный агонист δ-рецепторов DADLE, усиливая пролиферацию, способствуют изменению соотношения Т-хелперов в сторону Th2-клеток.
Учитывая, что во фракции лимфоцитов находятся Т-, В-лимфоциты, NК-клетки, присутствие которых может оказывать влияние на конечный результат, дальнейшие эксперименты проводились с использованием CD4+-клеток, основных продуцентов IL-4. Как видно из рис. 13, b-эндорфин усиливает продукцию IL-4 во фракции мононуклеаров и не влиет на уровень IL-4в культуре CD4+-клеток. Добавление к CD4+-лимфоцитам моноцитов приводит к восстановлению уровня продукции IL-4 под воздействием b-эндорфина. Аналогичный по силе и направленности эффект на продукцию IL-4 CD4+-лимфоцитами оказывает селективный d-агонист DADLE (рис. 14). Анализ влияния m-агониста DAGO выявил тенденцию
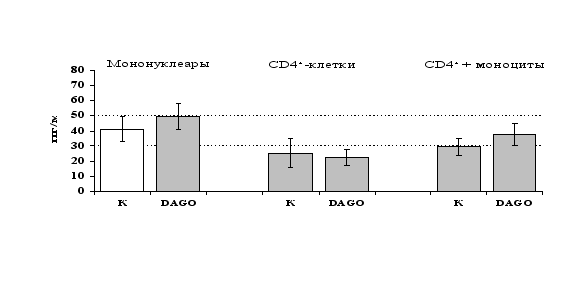
Рис 15. Влияние DAGO 10-8 М на продукцию IL-4 фракцией мононуклеаров, CD4+-лимфоцитами и CD4+-лимфоцитами в присутствии моноцитов в присутствии ФГА 2,5 мкг/мл.
* - р < 0,05; ** - р < 0,01; *** - р < 0,001 к контролю по парному t-критерию Стъюдента.
к усилению продукции IL-4 фракцией мононуклеаров (рис. 15), однако статистически достоверного эффекта достичь не удалось. Как видно из рис. 16, внесение b-эндорфина на ФГА-индуцированную продукцию IL-2 мононуклеарами, CD4+-лимфоцитами и комбинацией CD4+-лимфоциты+моноциты влияния не оказывает. Таким образом, полученные данные свидетельствуют о том, что от присутствия моноцитов зависит направленность влияния b-эндорфина и d-агониста DADLE на Th1/Th2-поляризацию лимфоцитов. Учитывая важное участие d-рецепторов в регуляции синтеза IL-4 была проанализирована их роль в эффекте b-эндорфина на продукцию данного цитокина. В условиях блокады d-рецепторов нивелируется усиливающее действие пептида на уровень IL-4 в нефракционированных клеточных культурах. Во фракции лимфоцитов b-эндорфин и налтриндол на продукцию IL-4 не влияют (рис. 17).
Таким образом, результаты проведённых исследований свидетельствуют о важной роли моноцитов в регуляции секреторной активности клеток адаптивного иммунитета, при этом как агонисты, так и антагонисты опиатных рецепторов оказывают самостоятельные эффекты на активность клеточных популяций.
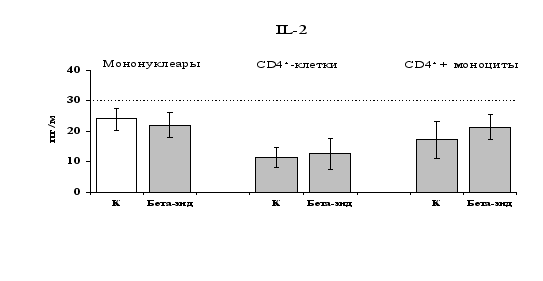
Рис 16. Влияние b-эндорфина 10-7 М на продукцию IL-2 фракцией мононуклеаров, CD4+-лимфоцитами и CD4+-лимфоцитами в присутствии моноцитов в присутствии ФГА 2,5 мкг/мл.
* - р < 0,05; ** - р < 0,01; *** - р < 0,001 к контролю по парному t-критерию Стъюдента.
А Б
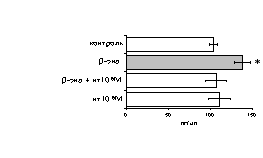
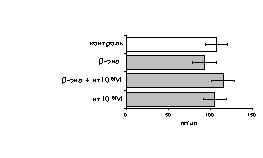
Рис. 17. Эффекты b-эндорфина на фоне блокады d-опиатных рецепторов на продукцию IL-4 в нефракционированной клеточной взвеси (А) и фракции лимфоцитов (Б) в присутствии ФГА 2,5 мкг/мл.
* - р < 0,05; ** - р < 0,01; *** - р < 0,001 к контролю по парному t-критерию Стъюдента.
Роль b-эндорфина в регуляции фагоцитарной активности клеток естественного звена иммунитета. По нашим данным, β-эндорфин в концентрациях 10-7 и 10-8 М (46,25±1,57 в контроле – 51,3±1,66 - β-эндорфин 10-7 М; P<0,001 к контролю) увеличивает процент фагоцитоза и фагоцитарное число нейтрофилов (0,61±0,02 в контроле - 0,68±0,03 β-эндорфин 10-7 М; P<0,001 к контролю). Помимо нейтрофилов пептид усиливает фагоцитарную активность моноцитов в концентрациях 10-7 – 10-8 М, увеличивая процент фагоцитоза (36,9±2,75 в контроле – 47,7±4,8 - β-эндорфин 10-7 М; P<0,05 к контролю) и фагоцитарное число (0,44±0,03 в контроле - 0,67±0,08 β-эндорфин 10-7 М; P<0,05 к контролю). Так же b-эндорфин стимулирует общий (суммарный) фагоцитоз. На фагоцитарную активность эозинофилов β-эндорфин не влияет.
Роль b-эндорфина в регуляции цитокинпродуцирующей функции моноцитов и нейтрофилов. Как видно из табл. 5, 6, ЛПС усиливает продукцию IL-1b, TNF-a, IL-6 только в культурах с фракцией моноцитов, в то время как в культуре лейкоцитов эффект ЛПС на синтез IL-1b, TNF-a, IL-6 отсутствует. В тоже время уровень IL-8 в ответ на ЛПС усиливается в нефракционированной клеточной фракции и не изменяется в очищенной моноцитарной фракции. В нефракционированной клеточной культуре b-эндорфин (10-7-10-11М) активирует LPS-индуцированную продукцию IL-1b, не влияя на синтез IL-6, TNF-a и угнетая продукцию IL-8 в концентрациях 10-7 и 10-11М. b-эндорфин в концентрациях 10-7 - 10-11М усиливает продукцию IL-1ra, рецепторного антагониста IL-1b. Значительно менее выраженный стимулирующий эффект пептид оказывает на спонтанную продукцию IL-1b в концентрациях 10-7 и 10-9М. На индуцированную субоптимальной дозой ФГА продукцию исследуемых цитокинов, а так же на их спонтанный и ЛПС-индуцированный синтез в очищенной фракции моноцитов b-эндорфин не влияет.
Данные, представленные на рис. 18 указывают на отсутствие отмены стимулирующего эффекта b-эндорфина на уровень IL-1b в условиях блокады опиатных рецепторов неселективным антагонистом налоксоном (d, m) и селективным d-антагонистом налтриндолом в течение 24 ч культивирования. Также обнаруживается самостоятельный стимулирующий эффект налтриндола на продукцию IL-1b. Выявленная динамика сохраняется в течение 48 ч культивирования. Действие b-эндорфина на продукцию антагониста IL-1b IL-1ra (рис. 19) имело картину, схожую с полученной нами при анализе продукции IL-1b. b-эндорфин и налтриндол
Таблица 5. Влияние b-эндорфина на продукцию IL-1b, TNF-a, IL-6 в нефракционированной лейкоцитарной суспензии
| Цитокин, | Экспериментальное | Концентрация b-эндорфина, M | |||
| пг/мл | воздействие | контроль | 10-7 | 10-9 | 10-11 |
| IL-1b, | Без индуктора | 193,01± | 271,66± | 266,57± | 238,22± |
| n=8 | 39,16 | 77,96* | 49,18* | 50,19 | |
| ЛПС 0,1 мкг/мл | 190,87± | 305,76± | 300,95± | 279,41± | |
| 54,43 | 49,50*** | 76,95** | 62,40* | ||
| TNF-a, | Без индуктора | 253,72± | 286,79± | 277,46± | 290,90± |
| n=8 | 52,60 | 61,43 | 67,08 | 62,32 | |
| ЛПС 0,1 мкг/мл | 269,59± | 297,93± | 295,42± | 295,49± | |
| 53,90 | 66,45 | 68,59 | 60,45 | ||
| IL-6, | Без индуктора | 1115,41± | 1084,09± | 1101,83± | 1109,70± |
| n=8 | 30,54 | 50,23 | 56,55 | 46,66 | |
| ЛПС 0,1 мкг/мл | 1094,73± | 1082,85± | 1051,07± | 1115,41± | |
| 36,40 | 28,72 | 36,16 | 33,88 | ||
| IL-8, | Без индуктора | 1353,68± | 1340,28± | 1664,63± | 1313,30± |
| n=4 | 114,42 | 104,42 | 44,10 | 156,25 | |
| ЛПС 0,1 мкг/мл | 1699,20± | 1278,40± | 1635,43± | 1364,28± | |
| 68,25а | 31,34*** | 68,31 | 59,85** | ||
| IL-1ra, | Без индуктора | 1811,38± | 1840± | 1817,25± | 1932,5± |
| n=4 | 272,30 | 275,54 | 431,75 | 297,55 | |
| ЛПС 0,1 мкг/мл | 1957,13± | 2346,5± | 2168,13± | 2175,13± | |
| 232,16 | 198,97*** | 261,74* | 198,06* | ||
Примечание. Здесь и в табл. 6: * - р < 0,05; ** - р < 0,01; *** - р < 0,001 к контролю по парному t-критерию Фишера наименьшей значимой разницы, a – р <0,05 – к спонтанной продукции.
стимулируют продукцию IL-1ra по сравнению с контролем как на 1-е, так и на 2-е сутки культивирования. Отмены стимулирующего влияния пептида на фоне блокады опиатных рецепторов не наблюдается. Анализ влияния пептида на продукцию IL-8 показал статистически достоверный угнетающий эффект как на 24, так и на 48 ч культивирования. В условиях блокады опиатных рецепторов налоксоном и налтриндолом угнетающее влияние b-эндорфина нивелируется. Внесение налоксона и налтриндола на продукцию IL-8 не влияет.
Таблица 6. Влияние b-эндорфина на продукцию IL-1b, TNF-a, IL-6 в очищенной фракции моноцитов
| Цитокин, | Экспериментальное | Концентрация b-эндорфина, M | |||
| пг/мл | воздействие | контроль | 10-7 | 10-9 | 10-11 |
| Без индуктора | 153,22± | 121,65± | 249,92± | 118,71± | |
| IL-1b, | 33,48 | 19,83 | 84,88 | 28,97 | |
| n=8 | ЛПС 0,1 мкг/мл | 230,26± | 202,84± | 223,97± | 235,21± |
| 42,25а | 36,47 | 71,16 | 53,29 | ||
| Без индуктора | 137,52± | 153,81± | 148,31± | 133,20± | |
| TNF-a, | 51,33 | 58,24 | 57,56 | 55,31 | |
| n=8 | ЛПС 0,1 мкг/мл | 163,21± | 178,81± | 174,97± | 178,73± |
| 60,48а | 69,78 | 68,63 | 70,21 | ||
| Без индуктора | 1204,61± | 1174,58± | 1281,19± | 1243,46± | |
| IL-6, | 354,15 | 356,34 | 357,40 | 332,03 | |
| n=8 | ЛПС 0,1 мкг/мл | 1435,55± | 1442,89± | 1346,26± | 1414,19± |
| 379,02а | 340,04 | 342,73 | 367,26 | ||
| Без индуктора | 1198,38± | 1230,63± | 1294,63± | 1148,68± | |
| IL-8, | 153,25 | 85,79 | 219,75 | 200,81 | |
| n=4 | ЛПС
0,1
Если Вам нужна помощь с академической работой (курсовая, контрольная, диплом, реферат и т.д.),
обратитесь к нашим специалистам. Более 90000 специалистов готовы Вам помочь.
Бесплатные корректировки и доработки. Бесплатная оценка стоимости работы.
Нужна помощь в написании работы?
Мы - биржа профессиональных авторов (преподавателей и доцентов вузов). Пишем статьи РИНЦ, ВАК, Scopus.
Помогаем в публикации. Правки вносим бесплатно.
Похожие рефераты: | ||||