Аллельные варианты генов-кандидатов подверженности туберкулезу у русского населения Западной Сибири
| Выборка | Количество детей в семье | Всего | ||||
| 1 | 2 | 3 | 4 | 5 | ||
| Полные семьи (изучены оба родителя и дети) | 19(57) | 0 | 0 | 0 | 1(7) | 20(64) |
| Неполные семьи (изучен один родитель и дети) | 16(32) | 1(3) | 0 | 0 | 0 | 17(35) |
| Нет данных о родителях | 0 | 5(10) | 0 | 0 | 0 | 5(10) |
Примечание. В скобках указано количество индивидов.
Часть пробандов–детей составили мальчики (n=10), а девочек было в 1,5 раза больше (n=15). Средний возраст пробандов–детей разного пола достоверно не различался (7,2 года у мальчиков и 7,5 лет у девочек). Среди взрослых пробандов было 7 женщин (средний возраст – 19,8 лет) и 10 мужчин (средний возраст – 23,9 лет). Всем пробандам был поставлен диагноз туберкулеза, причем первичный и вторичный генез заболевания встречался с одинаковой частотой. Среди обследованных родственников пробандов первой степени родства было 28 лиц мужского пола, из них 8 человек болели туберкулезом, и 39 -женского, из них с туберкулезом 14.
2.2 Методы исследования
2.2.1 Клинико-лабораторные методы исследования
Клинико – эпидемиологический анализ больных туберкулезом включал: возраст начала заболевания, социальную категорию, вредные привычки (курение, злоупотребление алкоголем, употребление наркотиков), сопутствующую патологию, наличие контакта с туберкулезным больным, а также данные о туберкулезе у родственников больного. Анализу подвергались выраженность клинических проявлений (жалобы, объективный статус больного), результаты лабораторных и инструментальных методов исследования (микроскопия и посев мокроты на МБТ, чувствительность к противотуберкулезным препаратам, рентгенологическое исследование легких, общий анализ крови) на момент начала заболевания.
Для решения задачи по оптимизации и стандартизации сбора информации о больном ТБ была разработана специальная карта "Унифицированный носитель информации", содержащая блоки, охватывающие сведения о жалобах больного, эпидемиологическом анамнезе, анамнезе заболевания, объективном статусе, результатах лабораторного и инструментального обследования. В дальнейшем на основании сведений из этих карт была создана электронная база данных в формате Microsoft Excel.
2.2.2 Молекулярно – генетические методы анализа полиморфизма генов
Всего было изучено 9 полиморфных вариантов пяти генов – кандидатов подверженности туберкулезу. Исследовали 4 полиморфных варианта гена NRAMP1: 469+14G/C (INT4) – трансверсия гуанина на цитозин в 4 интроне, С274Т – консервативная замена в 3 экзоне, 1465-85 G/A – транзиция в 13 интроне и D543N – неконсервативная замена цитозина на аденин в 15 экзоне; два полиморфизма VDR гена: B/b, F/f; полиморфный вариант IL1B гена в 5 экзоне +3953А1/А2; VNTR полиморфизм гена IL1RN, расположенный во 2 интроне. Также выборки генотипировали по полиморфизму гена IL12В, обусловленному трансверсией аденина на цитозин в 3`-UTR области (табл. 4).
Для генотипирования индивидов по указанным полиморфизмам использовали образцы тотальной ДНК, выделенной из цельной венозной крови по стандартной неэнзиматической методике [Маниатис Т. и др., 1984; Lahiri D. et al., 1992]. Выделенную ДНК замораживали и хранили при температуре -20° С до проведения эксперимента. Генотипирование осуществляли с помощью полимеразной цепной реакции (ПЦР), используя структуру праймеров и параметры температурных циклов, описанных в литературе (табл.5).
Смесь для ПЦР содержала 0,5-2,0 мкл специфической пары праймеров с концентрацией 1 о.е./мл, 1,2-1,8 мкл 10ґ буфера для амплификации с концентрацией MgCl2 0,5-2,0 mM, 0,5-1,0 е. а. Taq ДНК-полимеразы ("Сибэнзим", "Медиген", Новосибирск) и 100-200 нг геномной ДНК. Смесь помещали в 0,5 мл пробирки типа "Эппендорф", наслаивали сверху минеральное масло для предотвращения испарения и амплифицировали в автоматических минициклерах "MJ Rеsearch" (США) и "БИС 108" (Россия-Новосибирск).
Программа амплификации включала предварительную денатурацию при 94°С в течении 5 минут, с последующими 30-35 циклами отжига при температуре 60°С (1мин.), элонгации цепи при 72°С (40 сек.) и денатурации при 94°С (40 сек.). Программу завершала финальная элонгация при 72°С в течение 3 минут. Амплификат подвергали гидролизу соответствующей рестриктазой (табл.5) при оптимальной для фермента температуре в течении 12-24 ч. Рестрикционная смесь включала 5-7 мкл амплификата, 1,0-1,2 мкл 10ґ буфера для рестрикции, поставляемого фирмой – производителем ("Сибэнзим", Новосибирск), и 1-5 единиц активности фермента (в зависимости от эффективности его работы). Продукты рестрикции фракционировали в 3% агарозном геле при напряжении 120 В в течении 30 минут. Фрагменты ДНК окрашивали бромистым этидием и визуализировали в ультрафиолетовом свете.
Таблица 4Структура материала популяционных выборок г. Томска и Томской области, изученных по полиморфным ДНК-маркерам генов NRAMP1, VDR, IL1B, IL12B, IL1RN
| Ген | Полиморфизм | Выборка больных туберкулезом | Выборка здоровых индивидов |
| NRAMP1 | 469+14G/C | 279 | 137 |
| D543N | 278 | 139 | |
| 1465-85G/A | 279 | 135 | |
| 274C/T | 299 | 116 | |
| IL12B | 1188А/С | 279 | 129 |
| VDR | B/b | 293 | 108 |
| F/f | 298 | 113 | |
| IL1B | +3953A1/A2 | 301 | 139 |
| IL1RN | VNTR | 299 | 140 |
Таблица 5 Характеристики исследованных полиморфизмов
| Ген | Полимор-физм | Структура праймеров |
tо отжига прай-меров, оС |
Фермент рестрик-ции | Продукты гидролиза, п. н. | Литература | |||
| Аллель «дикого» типа | Мутантный аллель | ||||||||
|
|
274C/T |
5’-tgccaccatccctatacccag –3’ 5’-tctcgaaagtgtcccactcag –3’ |
60 |
Mnl I |
167;37;12 bp | 102;65;37;12 bp | Liu J. et al., 1995 | ||
| 469+14G/C |
5’-tctctggctgaaggctctcc –3’ 5’-tgtgctatcagttgagcctc – 3’ |
60 |
Apa I |
624 bp | 455;169 bp | ||||
| 1465-85G/A |
5’-gcaagttgaggagccaagac –3’ 5’-acctgcatcaactcctcttc –3’ |
60 |
Bsе 1I |
142;75;24 bp |
102;75;40;24 bp | ||||
| D543N |
5’-gcatctccccaattcatggt –3’ 5’-aactgtcccactctatcctg –3’ |
60 |
Bme 18I |
126;79;39 bp | 201;39 bp | ||||
|
IL12 |
A1188C |
5’-ttctatctgatttgcttta –3’ 5’-tgaaacattccatacatcc –3’ |
43 |
Taq I |
233 bp | 165;68 bp | Hall M. A. еt al., 2000 | ||
|
VDR |
B/b |
5’-aacttgcatgaggaggagcatgtc-3’ 5’-ggagaggagcctctgtcccatttg-3’ |
60 |
Pct I |
813 bp | 505;308 bp | Wilkinson R.J. et al., 2000 | ||
| F/f |
5’-agctggccctggcactgactctgctct-3’ 5’-atggaaacaccttgcttcttctccctc-3’ |
60 |
Fok I |
267 bp | 197;70 bp | ||||
|
IL1B |
+3953A1/A2 |
5’-gttgtcatcagactttgacc-3’ 5’-ttcagttcatatggaccaga-3’ |
58 |
Taq I |
220 bp | 148; 72 bp | Wilkinson R.J. et al., 1999 | ||
|
|
VNTR |
5’-tcctggtctgcaggtaa-3’ 5’-ctcagcaacactcctat-3’ |
60 |
А1-410 п.о. (4 повтора); А2-240 п.о. (2 повтора) А3-500 п.о. (5 повторов); А4-325 п.о. (3 повтора) А5-595 п.о. (6 повторов) |
Tarlow J.K. et al., 1993 | ||||
 NRAMP1
 IL1RN
2.2.3 Генетико – статистические методы анализа
Распределение генотипов по исследованным полиморфным локусам проверяли на соответствие равновесию Харди-Вайнберга (РХВ) с помощью точного теста Фишера [Вейр Б., 1995]. Рассчитывали ожидаемую гетерозиготность полиморфизма генов NRAMP1, IL12B, VDR, IL1B, IL1RN [Nei M., 1975]. Относительное отклонение ожидаемой гетерозиготности от наблюдаемой (D) рассчитывали по формуле:
D=(hobs–hexp)/hexp,
где hobs и hexp – ожидаемая и наблюдаемая гетерозиготность соответственно.
Для анализа ассоциации маркеров исследуемых генов с туберкулезом, а также с качественными патогенетически важными признаками заболевания, сравнивали частоты аллелей и генотипов в группах больных и здоровых индивидов, используя критерий χ2 с поправкой Йетса на непрерывность. При численностях генотипов менее пяти использовали точный тест Фишера. В дополнение к этому об ассоциации разных генотипов (или их комбинаций) с заболеванием судили по величине отношения шансов (odds ratio (OR)), которая показывает, во сколько раз выше вероятность заболеть для индивида с определенным генотипом (или комбинацией генотипов) [Pearce N., 1993].
OR= (A/B)/(C/D), где
А – число (процент) людей с данным генотипом (комбинацией генотипов) в группе больных;
С - число (процент) людей с данным генотипом (комбинацией генотипов) в группе здоровых;
В – число (процент) индивидов, не имеющих данного генотипа (комбинации генотипов) в группе больных;
D - число (процент) индивидов, не имеющих данного генотипа (комбинации генотипов) в группе здоровых.
Значения OR>1 указывают на возможную положительную ассоциацию с заболеванием. Обсуждение величин OR проводили при уровне значимости не более 5%.
На материале семейной выборки больных изучение ассоциаций полиморфизма исследованных генов с туберкулезом проводили с использованием теста на неравновесие при переносе (Transmission/Disequilibrium Test, TDT), который в случае диаллельного маркерного локуса М сводится к анализу таблицы сопряженности 2ґ2, где в ячейках матрицы суммированы случаи наследования и не наследования от родителей больными детьми маркерных аллелей [Spielman R. S. et al., 1993].
a – число случаев наследования аллеля М1 от родителей М1М1;
b – число случаев наследования аллеля М1 от родителей М1М2;
c – число случаев наследования аллеля М2 от родителей М1М2;
d – число случаев наследования аллеля М2 от родителей М2М2;
Используются данные только от гетерозиготных родителей. Статистика теста рассчитывается по формуле:
TDT=(b-c)2/(b+c)
и в случае верной нулевой гипотезы (Н0: нет ассоциации) асимптотически распределена как χ2 с 1 степенью свободы.
С целью выявления ассоциации маркеров исследуемых генов с количественными, патогенетически важными признаками туберкулеза, проводили сравнение средних значений уровней метрических показателей у носителей разных генотипов с помощью однофакторного дисперсионного анализа по Фишеру и теста LSD. При наличии зависимости признака от пола показатели анализировались отдельно в группе мужчин и женщин. В случае влияния возраста на количественный параметр проводилась его корректировка, которая осуществлялась с помощью уровня линейной регрессии и рассчитывалась по формуле [Лильин Е.Т. и др., 1984]:
y=x+b(t0 -t),
где y – коррегированное значение исходной величины (х) признака;
t – возраст индивида
t0 – определенный возраст, к которому приводятся все значения;
b – коэффициент линейной регрессии признака по возрасту, который рассчитывается по формуле:
b=rxt/st2
где rxt – коэффициент корреляции признака с возрастом;
st - стандартное отклонение возраста в выборке.
Проверку на нормальность распределений осуществляли с помощью критерия Колмогорова-Смирнова и Лилифорса. В случае неравных дисперсий использовали непараметрические тесты Манна-Уитни, Краскела-Уоллиса и медианный тест [Лакин Г.Ф., 1990]. Сравнение дисперсий проводили по критерию Левене.
Расчеты гаметического неравновесия между парами молекулярно-генетических маркеров проводили по Hill W. G. (1974). Все расчеты осуществляли с помощью программ "STATISTICA for Windows 6.0" и "Microsoft Excel 7.0".
3. Результаты и обсуждение
Учитывая поставленные задачи, исследование включало три аспекта: изучение популяционной распространенности полиморфизма генов NRAMP1, IL12B, VDR, IL1B, IL1RN, анализ связи исследованных генов с туберкулезом и поиск ассоциаций с патогенетически важными параметрами заболевания у русских жителей г. Томска. К настоящему времени получены результаты исследования аллельных вариантов генов подверженности к ТБ у тувинцев, выполненного по аналогичной схеме и с использованием того же набора полиморфизма генов [Рудко А.А. и др., 2003]. Это дало возможность провести сравнение полученных результатов между русскими жителями г. Томска и тувинцами.
3.1 Распространенность полиморфизма генов NRAMP1, IL12B, VDR, IL1B, IL1RN среди здоровых лиц (контрольная группа)
В настоящее время во многих популяциях мира достаточно широко исследованы полиморфные варианты гена NRAMP1, и в меньшей степени изучена распространенность аллелей генов VDR, IL12B, IL1B, IL1RN [Рудко А.А. и др., 2003; Имангулова М.М. и др., 2004; Bellamy R. et al., 1998; Ryu S. et al., 2000; Cervino A.C.L. et al., 2000;. Gao P. S., 2000; Baghdadi J. et al., 2004; Liu W. et al., 2004;]. Результаты исследований показали, что полиморфизм этих генов вносит вклад в возникновение туберкулеза.
Однако известно, что восприимчивость к инфекционному заболеванию определяется одновременно многими генами с различным вкладом каждого из них в формирование того или иного патологического фенотипа. К тому же, один и тот же ген может участвовать в формировании чувствительности (или резистентности) к нескольким инфекционным заболеваниям. Вероятно, для каждого гена (и их ансамблей) существует свое "поле действия", которое модифицируется средой [Пузырев В.П., 2000]. Сочетания генов предрасположенности к болезни могут быть неодинаковы в популяциях, обусловливая различия в подверженности к заболеванию у разных народов. В связи с этим перспективным направлением исследований генетических основ предрасположенности к туберкулезу является изучение вкладов конкретных сочетаний аллелей в подверженность к болезни в различающихся как по расовой, так и по этнической принадлежности популяциях.
У здоровых жителей г. Томска распределение генотипов по всем изученным полиморфным вариантам гена NRAMP1 (469+14G/C, D543N, 1465-85 G/A, 274 C/T), VDR (B/b, F/f), а также генов интерлейкинов (полиморфизм 1188A/C гена IL12B, полиморфизм +3953 A1/A2 гена IL1B) соответствовало ожидаемому при равновесии Харди-Вайнберга (РХВ), причем для большинства полиморфизмов наблюдаемая гетерозиготность (Hobs) превышала ожидаемую (Hexp) (табл.6). Лишь для частот генотипов VNTR полиморфизма гена IL1RN показано отклонение от ожидаемых при РХВ (χ2=16,75 р=0,010). При этом наблюдаемое количество гомозигот А2А2 превышало ожидаемое в 2,5 раза, а уровень гетерозиготности был меньше ожидаемого (D= –0,280). Возможно, этот факт объясняется тем, что анализируемая популяционная группа индивидов была выбрана не случайным образом из общей популяции, а включала только здоровых в отношении туберкулезной инфекции.
Сравнение распространенности полиморфизма генов NRAMP1, IL12B, VDR, IL1B, IL1RN у здоровых от туберкулеза русских и тувинцев показало статистически значимые отличия между этими этническими группами, которые имели место в распределении, как частот аллелей, так и генотипов по большинству изученных генов (табл. 7). Максимальные отличия между сравниваемыми этническими группами выявлены для полиморфизма B/b гена VDR, VNTR полиморфизма гена IL1RN и 1188А/С гена IL12B.
Таблица 6 Частоты аллелей и генотипов исследованных генов у здоровых жителей г. Томска
| Ген | Поли-морфизм | Гено-типы | N.O. | N.E. | Частота аллеля |
χ2 (df) |
Hobs |
Hexp |
D |
| NRAMP1 |
469+14 G/C |
GG GC CC |
97 38 2 |
98,22 35,56 3,22 |
G= 0,847 |
0,44 (1) |
0,277 | 0,260 | +0,069 |
| D543N |
DD DN NN |
127 12 0 |
127,26 11,48 0,26 |
D= 0,957 |
0,01 (1) | 0,086 | 0,083 | +0,045 | |
|
1465-85 G/A |
GG GA AA |
73 47 15 |
68,98 55,04 10,98 |
G= 0,715 |
2,60 (1) | 0,348 | 0,408 | -0,146 | |
| 274C/T |
CC CT TT |
80 34 2 |
81,11 31,78 3,11 |
C= 0,836 |
0,37 (1) |
0,293 | 0,274 | +0,070 | |
| IL12B |
1188 A/C |
AA AC CC |
85 43 1 |
87,92 37,15 3,92 |
A= 0,826 |
2,75 (1) |
0,333 | 0,288 | +0,157 |
| VDR | B/b |
BB Bb bb |
19 63 26 |
23,61 53,77 30,61 |
b= 0,532 |
2,93 (1) |
0,583 | 0,498 | +0,172 |
| F/f |
FF Ff ff |
42 54 17 |
42,13 53,73 17,13 |
F= 0,611 |
0,00 (1) |
0,478 | 0,476 | +0,005 | |
| IL1B |
+3953 A1/A2 |
A1A1 A1A2 A2A2 |
90 44 5 |
90,24 43,51 5,24 |
A1= 0,806 |
0,00 (1) |
0,317 | 0,313 | +0,011 |
| IL1RN | VNTR |
A1A1 A1A2 A1A3 A1A4 A2A2 другие |
93 27 4 3 12 1 |
86,49 40,94 3,96 2,20 4,84 1,57 |
A1= 0,786 A2= 0,186 A3= 0,018 |
16,8* (6) |
0,250 | 0,347 | -0,280 |
Примечание. N.O. и N.E. – наблюдаемая и ожидаемая численности генотипов соответственно; χ2 – критерий для сравнения ожидаемого и наблюдаемого распределения генотипов; d.f. – число степеней свободы; Hobs и Hexp – соответственно наблюдаемая и ожидаемая гетерозиготность; D – относительное отклонение наблюдаемой гетерозиготности от ожидаемой; * – p < 0,05
Таблица 7 Частоты аллелей и генотипов исследованных генов у русских жителей г. Томска и тувинцев
| Ген | Полимор-физм | Генотип / аллель |
Русские N (%) |
Тувинцы N (%) |
p |
| NRAMP1 | 469+14 G/C |
GG GC CC |
97 (70,8) 38 (27,7) 2 (1,5) |
224 (85,2) 36 (13,7) 3 (1,1) |
0,002 |
| G | 0,847 | 0,920 | 0,002 | ||
| D543N |
DD DN NN |
127 (91,4) 12 (8,6) 0 (0) |
198 (75,3) 57 (21,7) 8 (3) |
0,000 | |
| D | 0,957 | 0,861 | 0,000 | ||
| 1465-85 G/A |
GG GA AA |
73 (54,1) 47 (34,8) 15 (11,1) |
162 (61,6) 88 (33,5) 13 (4,9) |
0,057 | |
| G | 0,715 | 0,783 | 0,040 | ||
| 274 C/T |
CC CT TT |
80 (69) 34 (29,3) 2 (1,7) |
207 (78,7) 49 (18,6) 7 (2,7) |
0,072 | |
| C | 0,836 | 0,880 | 0,127 | ||
| IL12B | 1188 A/C |
AA AC CC |
85 (65,9) 43 (33,3) 1 (0,8) |
104 (39,5) 119 (45,3) 40 (15,2) |
0,000 |
| A | 0,826 | 0,622 | 0,000 | ||
| VDR | B/b |
BB Bb bb |
19 (17,6) 63 (58,3) 26 (24,1) |
2 (0,8) 88 (33,5) 173 (65,7) |
0,000 |
| b | 0,532 | 0,825 | 0,000 | ||
| F/f |
FF Ff ff |
42 (37,2) 54 (47,8) 17 (15) |
148 (56,3) 98 (37,3) 17 (6,4) |
0,001 | |
| F | 0,611 | 0,749 | 0,000 | ||
| IL1B | +3953 A1/A2 |
A1A1 A1A2 A2A2 |
90 (64,7) 44 (31,7) 5 (3,6) |
197 (74,9) 61 (23,2) 5 (1,9) |
0,086 |
| A1 | 0,806 | 0,865 | 0,035 | ||
| IL1RN | VNTR |
A1A1 A1A2 A2A2 другие |
93 (66,4) 27 (19,3) 12 (8,6) 8 (5,7) |
190 (72,5) 31 (11,8) 1 (0,4) 40 (15,3) |
0,000 |
|
A1 A2 A3 |
0,786 0,186 0,018 |
0,849 0,069 0,013 |
0,000 |
Примечание. N – численность лиц с соответствующими генотипами; р – достигнутый уровень значимости
У русских г. Томска по сравнению с тувинцами аллели b гена VDR и А1 гена IL1RN встречались реже, а аллель 1188А гена IL12B – чаще. Кроме того, рассматриваемые популяционные группы статистически значимо различались по частотам аллелей и генотипов полиморфизмов 469-14G/C, D543N гена NRAMP1 и F/f гена VDR. Так, у русских чаще, чем у тувинцев наблюдали аллель 543D и реже аллель 469+14G гена NRAMP1. Индивиды, гомозиготы и гетерозиготы по аллелю f гена VDR, чаще встречались среди жителей г. Томска. Распределение генотипов полиморфизма 1465-85G/A гена NRAMP1 и +3953A1/A2 гена IL1B в исследованных популяционных группах не отличалось, однако частоты аллелей этих полиморфизмов были статистически значимо ниже у русских. Лишь для варианта 274С/Т гена NRAMP1 не найдено отличий по частотам аллелей и генотипов у русских и тувинцев.
К настоящему времени накоплены результаты многочисленных исследований роли генов-кандидатов туберкулеза в патогенезе заболевания у представителей различных этнических групп. Это позволило провести сравнительный анализ частот генотипов между русскими г. Томска и другими изученными популяциями мира. Найдены статистически значимые отличия русских от других этносов по частотам аллелей генов NRAMP1, VDR, IL12B (табл. 8).
Частота аллеля 469+14G NRAMP1 у жителей г. Томска оказалась статистически значимо ниже, чем у африканцев из Гамбии, но выше, чем у китайцев [Bellamy R. et al., 1998; Liu W. et al., 2004]. Самым широко исследованным полиморфизмом гена NRAMP1 оказался D543N. Во все изученных популяциях этот генный маркер был низко полиморфным. Русские отличались по частоте аллелей D543N от коренных жителей Башкирии, у которых аллель 543N вообще не обнаружен [Имангулова М.М. и др., 2004]. При сравнении с другими исследованными популяциями (китайцы, корейцы, японцы, татары, гамбийцы) статистически значимых отличий для этого полиморфного варианта не показано (рис. 2, табл. 8) [Имангулова М.М. и др., 2004; Bellamy R. et al., 1998; Ryu S. et al., 2000; Gao P. S. et al., 2000; Liu W. et al., 2004].
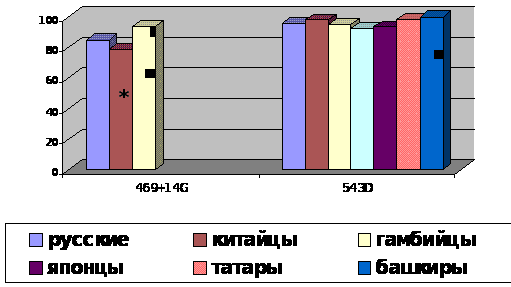 Рис.
2. Частоты аллелей
гена NRAMP1 у
русских г. Томска
и в других популяциях
мира (по данным
литературы).
* – р < 0,05
Таблица 8 Частоты аллелей генов-кандидатов туберкулеза в различных популяциях мира в сравнении с русскими г. Томска
| NRAMP1 / 469+14 G/C | |||||||||
| Популяции | Китайцы | Гамбийцы | |||||||
|
Частота ал. χ2 (p) |
G=0,785 3,83 (0,050) |
G=0,934 18,65 (0,000) |
|||||||
| NRAMP1 / D543N | |||||||||
| Популяции | Китайцы | Корейцы | Японцы | Гамбийцы | Татары | Башкиры | |||
|
Частота аллеля χ2 (p) |
D=0,981 1,84 (0,175) |
D=0,925 2,38 (0,123) |
D=0,933 1,30 (0,254) |
D=0,948 0,16 (0,690) |
D=0,983 0,94 (0,333) |
D=1,00 5,57 (0,018) |
|||
| VDR / F/f | |||||||||
| Популяции | Китайцы | Индийцы (Лондон) | |||||||
|
Частота аллеля χ2 (p) |
F=0,604 0,01 (0,935) |
F=0,806 20,28 (0,000) |
|||||||
| IL1B / +3953A1/A2 | |||||||||
| Популяции | Индийцы (Лондон) | ||||||||
|
Частота аллеля χ2 (p) |
A1=0,794 0,05 (0,825) |
||||||||
| IL1RN / VNTR | |||||||||
| Популяции | Индийцы (Лондон) | ||||||||
|
Частота аллеля χ2 (p) |
A1=0,719 A2=0,241 A3=0,039 A4=0 7,15 (0,067) |
||||||||
| IL12B / 1188A/C | |||||||||
| Популяции | Англичане | Камерунцы | Греки | Ирландцы | |||||
|
Частота аллеля χ2 (p) |
А=0,835 0,06 (0,812) |
А=0,625 18,37 (0,000) |
А=0,789 0,98 (0,323) |
А=0,802 0,23 (0,629) |
|||||
Примечание. χ2 – критерий использован для сравнения частот аллелей; р – достигнутый уровень значимости
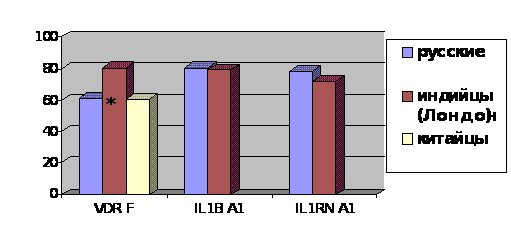
Рис. 3. Частоты аллелей полиморфизма F/f гена VDR, +3953A1/A2 гена IL1B, VNTR гена IL1RN у русских г. Томска и в других популяциях (по данным литературы). * – р < 0,05
Не показано различий при сравнении частот аллелей полиморфизма F/f гена VDR у русских г. Томска и китайцев [Liu W. et al., 2004]. Однако при сравнении с индийцами Лондона найдены статистически значимые отличия [Wilkinson R.J. et al., 2000]. В исследованной выборке русских аллель F гена VDR встречался реже (рис. 3, табл. 8).
Для полиморфных вариантов +3953А1/А2 гена IL1B и VNTR гена IL1RN не выявлено отличий частот аллелей у русских и индийцев Лондона. Аллель 1188А гена IL12B у жителей г. Томска встречался чаще, чем у камерунцев (χ2 =18,37 р=0,000). Не выявлено различий в распространенности этого маркера при сравнении с англичанами, ирландцами и греками (рис. 4, табл. 8) [Hall M.A. et al., 2000].
Установленные различия частот аллелей сравниваемых генов между русским населением г. Томска и другими популяциями мира свидетельствуют об этнической специфичности генов-кандидатов подверженности к туберкулезу. Возможно, это является одной из причин дифференциальной распространенности ТБ в этнических группах. Интересными представляются выявленные отличия по частотам аллелей для всех анализируемых маркеров у русских г. Томска при сравнении с жителями Тувы. Кроме того, известно, что по частотом аллелей рассматриваемых генов тувинцы значительно отличались не только от русских, но и от представителей иных популяционных групп [Рудко А.А. и др., 2003]. Вероятно, этот факт обусловлен длительной изоляцией тувинцев от других этносов, что привело к формированию уникального генофонда [Пузырев В.П. и др., 1999].
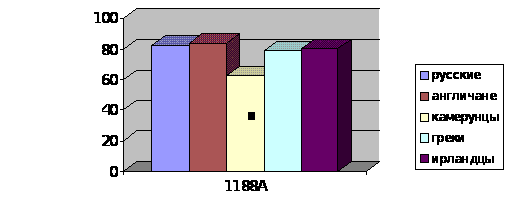
Рис. 4. Частоты аллелей полиморфизма 1188А/С гена IL12B у русских г. Томска и в других популяциях мира (по данным литературы). * – р < 0,05
Известно, что между неаллельными генами, расположенными близко на хромосоме, может возникнуть неравновесие по сцеплению в силу того, что в процессе мейоза кроссинговер между ними происходит реже, чем между далеко расположенными локусами. К тому же, под воздействием факторов популяционной динамики (естественного отбора) "сцепленными" могут оказаться гены, локализованные на разных хромосомах [Животовский Л.А., 1984]. Поэтому был проведен анализ гаметического неравновесия между исследованными полиморфными вариантами.
Известно, что гены NRAMP1, IL1B и IL1RN расположены на длинном плече второй хромосомы, ген VDR – на двенадцатой, а ген IL12B – на пятой хромосоме. У русских г. Томска установлено, что в неравновесии по сцеплению находятся четыре пары полиморфизмов гена NRAMP1: 469+14G/C и 274C/T, 469+14G/C и 1465-85G/A, 274C/T и 1465-85G/A, D543N и 1465-85G/A (табл. 9). Во всех случаях неравновесия в фазе притяжения были часто встречающиеся аллели.
Полиморфизм 274С/Т расположен в третьем экзоне гена, а 469+14G/C – в четвертом интроне. Такая локализация их в гене легко обьясняет наблюдаемое между ними сцепление (+0,104). Полиморфизм 1465-85G/A и D543N находятся в 13 интроне и 15 экзоне соответственно, что обусловливает неравновесие по сцеплению между ними (+0,017). Сила сцепления между полиморфизмом 1465-85G/A и вариантами 469+14G/C, 274C/T была примерно на одном уровне и составила +0,078 и +0,085, соответственно. Интересным представляется тот факт, что пары полиморфизмов гена NRAMP1, оказавшихся в неравновесии по сцеплению, были идентичны у тувинцев и русских [Рудко А.А., 2004]. Кроме того, у жителей г. Томска, в фазе притяжения оказались аллели гена VDR: b и F, сила сцепления между ними составила +0,053.
Аллельный вариант F/f гена VDR у русских оказался в фазе отталкивания с полиморфизмами 469+14G/C, 274C/T, 1465-85G/A гена NRAMP1, мера неравновесия для них была –0,040, -0,039, -0,058, соответственно. Во всех случаях в фазе отталкивания оказались часто встречаемые аллели.
Таблица 9 Неравновесие по сцеплению между парами исследованных полиморфных вариантов генов у русских г. Томска
| Ген | NRAMP1 | IL12B | VDR | IL1B | IL1RN | |||||
| Ген | Полимор-физм | 469+14G/C | 274C/T | 1465-85 G/A | D543N |
1188 A/C |
F/f | B/b |
+3953 A1/A2 |
VNTR |
| NRAMP1 |
469+14 G/C |
- | +0,104 | +0,078 | +0,078 | -0,009 | -0,040 | -0,012 | -0,030 | +0,002 |
| 274C/T | 70,39 | - | +0,085 | +0,002 | -0,019 | -0,039 | -0,003 | -0,026 | +0,003 | |
| 1465-85 G/A | 29,94 | 29,79 | - | +0,017 | -0,041 | -0,058 | -0,027 | -0,014 | +0,016 | |
| D543N | 1,54 | 0,085 | 4,69 | - | +0,001 | -0,010 | -0,005 | -0,001 | +0,013 | |
| IL12B | 1188A/C | 0,505 | 1,88 | 7,08 | 0,029 | - | +0,011 | +0,016 | +0,018 | -0,000 |
| VDR | F/f | 6,12 | 4,92 | 7,68 | 1,05 | 0,361 | - | +0,053 | -0,012 | +0,008 |
| B/b | 0,465 | 0,03 | 1,47 | 0,221 | 0,730 | 4,65 | - | +0,006 | -0,010 | |
| IL1B |
+3953 A1/A2 |
5,88 | 3,63 | 0,747 | 0,017 | 1,85 | 0,371 | 0,104 | - | -0,023 |
| IL1RN | VNTR | 0,024 | 0,042 | 0,890 | 3,08 | 0,001 | 0,162 | 0,217 | 2,65 | - |
 Примечание.
Над центральной
диагональю
указаны значения
меры неравновесия
по сцеплению
(D),
под диагональю
– соответствующее
значение χ2
для теста на
неравновесие
по сцеплению.
Выделены величины,
для которых
достигнутый
уровень значимости
составил 5% и
менееТакже
в фазе отталкивания
находились
аллели 1465-85G
гена NRAMP1
и 1188А гена IL12B,
469+14G
гена NRAMP1
и +3953А1 гена IL1B,
мера сцепления
для них была
–0,041 и –0,030.
Естественный отбор в теории популяционной генетики является важнейшим фактором эволюции, вызывающим адаптивные изменения в генетической структуре популяций. В случае формирования гаметического неравновесия между маркерами под воздействием естественного отбора, определенные комбинации аллелей разных локусов дают селективные преимущества их носителям и, следовательно, сохраняются при отборе и накапливаются в популяции [Алтухов Ю.П., 2003].
3.2 Анализ связи полиморфизма генов NRAMP1, IL12B, VDR, IL1B, IL1RN с туберкулезом
Туберкулез – инфекционное заболевание, обладающее клиническим полиморфизмом. Специфическая гранулема – субстрат болезни – может развиться в любом органе или ткани [Cтруков А.И., Кауфман О.Я., 1989; Ерохин В.В., Земскова З.С., 2003]. Современная классификация туберкулеза, в основу которой положено два признака: локализация процесса и клинико – рентгенологические особенности форм, насчитывает 23 основных клинических формы туберкулеза [Хоменко А.Г., 1996]. Такое разнообразие проявлений одного заболевания определяют множество факторов. Несомненно, в этом случае играют немаловажную роль свойства самой микобактерии туберкулеза, такие как вирулентность, резистентность к противотуберкулезным препаратам, а также массивность инфекции. От состояния естественных защитных сил организма (барьерная функция слизистой оболочки дыхательных путей и желудочно-кишечного тракта) также будет зависеть исход встречи человека и микобактерии туберкулеза.
Результаты современных генетических исследований не оставили сомнений в существовании наследственной предрасположенности к туберкулезу [Хоменко А.Г., 1996; Чуканова В.П., 2001; Hill A.V.S., 1999]. Они показали, что одной из причин, определяющих такое разнообразие клинических проявлений, является полиморфизм генов, чьи продукты экспрессии вовлечены в патогенез заболевания. В то же время, пока не ясно, какие именно варианты генов имеют решающее значение. В связи с этим важно изучить вклад конкретных сочетаний аллелей в развитие болезни.
В исследованной выборке 304 больных туберкулезом русских жителей г. Томска и Томской области проанализировано распределение генотипов и частот аллелей полиморфизма генов NRAMP1, IL12B, VDR, IL1B, IL1RN (табл. 10). Выявлено отклонение наблюдаемого распределения генотипов полиморфизма B/b гена VDR от ожидаемого при РХВ (χ2=6,95; р=0,008) за счет повышенной гетерозиготности (табл. 10). Учитывая неслучайный характер отбора индивидов в выборке, можно предположить наличие вероятного вклада гена VDR в патогенез туберкулеза. Для исследованных полиморфизмов генов NRAMP1, IL12B, IL1B, IL1RN в общей группе больных туберкулезом отклонение от РХВ не показано.
Известно, что у жителей Тувы больных туберкулезом выявлено отклонение от РХВ для полиморфизмов 1465-85G/A и D543N гена NRAMP1 за счет пониженного количества гетерозигот в обоих случаях и для полиморфизмов B/b и F/f гена VDR за счет повышенной гетерозиготности [Рудко А.А., 2004]. Таким образом, как для русских, так и для тувинцев, больных туберкулезом, характерно повышенное количество гетерозигот B/b гена VDR. Сравнение частот аллелей и генотипов у русских и тувинцев, больных туберкулезом, показало статистически значимые отличия для всех исследованных полиморфных маркеров (табл. 11). Максимальная степень отличий частот аллелей и генотипов показана для полиморфизма B/b гена VDR.
Таблица 10 Частоты аллелей и генотипов исследованных полиморфизмов у больных туберкулезом
| Ген | Поли-морфизм | Гено-типы | N.O. | N.E. | Частота аллеля |
χ2 (d.f.) |
Hobs |
Hexp |
D |
| NRAMP1 |
469+14 G/C |
GG GC CC |
179 94 6 |
183,07 85,86 10,07 |
G= 0,810 |
2,25 (1) |
0,337 | 0,308 | +0,095 |
| D543N |
DD DN NN |
263 14 1 |
262,23 15,54 0,23 |
D= 0,971 |
1,28 (1) |
0,050 | 0,056 | -0,099 | |
|
1465-85 G/A |
GG GA AA |
126 126 27 |
128,03 121,94 29,03 |
G= 0,677 |
0,25 (1) |
0,452 | 0,437 | +0,033 | |
| 274C/T |
CC CT TT |
163 122 14 |
167,82 112,37 18,81 |
C= 0,749 |
2,01 (1) |
0,408 | 0,376 | +0,086 | |
| IL12B |
1188 A/C |
AA AC CC |
162 100 17 |
161,09 101,82 16,09 |
A= 0,760 |
0,05 (1) |
0,358 | 0,365 | -0,018 |
| VDR | B/b |
BB Bb bb |
49 168 76 |
60,37 145,26 87,37 |
b= 0,546 |
6,95* (1) |
0,573 | 0,496 | +0,157 |
| F/f |
FF Ff ff |
124 134 40 |
122,42 137,16 38,42 |
F= 0,641 |
0,12 (1) |
0,450 | 0,460 | -0,023 | |
| IL1B |
+3953 A1/A2 |
A1A1 A1A2 A2A2 |
169 108 24 |
165,21 115,57 20,22 |
A1 0,741 |
1,16 (1) |
0,359 | 0,384 | -0,066 |
| IL1RN | VNTR |
A1A1 A1A2 A1A3 A1A4 A2A2 A2A3 другие |
158 100 10 1 25 4 1 |
152,43 110,16 11,53 0,43 19,90 4,17 0,38 |
A1= 0,714 A2= 0,258 A3= 0,027 |
6,35 (6) |
0,385 | 0,422 | -0,088 |
Примечание. Обозначения см. табл. 6
Таблица 11 Сравнение частот аллелей и генотипов у русских и тувинцев с ТБ
| Полимор-физм | Гено-типы | Частоты (%) | p | Ал-лели | Частоты | p | ||
| русские | тувинцы | русские | тувинцы | |||||
| NRAMP1 | ||||||||
| 469+14 G/C |
GG GC CC |
179 (64,2) 94 (33,7) 6 (2,1) |
198 (85) 32 (13,7) 3 (1,3) |
0,000 | G | 0,810 | 0,918 | 0,000 |
| D543N |
DD DN NN |
263 (94,6) 14 (5) 1 (0,4) |
191 (80,9) 39 (16,5) 6 (2,6) |
0,000 | D | 0,971 | 0,892 | 0,000 |
| 1465-85G/A |
GG GA AA |
126 (45,2) 126 (45,2) 27 (9,6) |
153 (65,7) 63 (27) 17 (7,3) |
0,000 | G | 0,677 | 0,794 | 0,000 |
| 274C/T |
CC CT TT |
163 (54,5) 122 (40,8) 14 (4,7) |
190 (80,5) 45 (19,1) 1 (0,4) |
0,000 | C | 0,749 | 0,900 | 0,000 |
| IL12B | ||||||||
| 1188 A/C |
AA AC CC |
162 (58) 100 (35,8) 17 (6,2) |
90 (38,6) 102 (43,8) 41 (17,6) |
0,000 | A | 0,760 | 0,605 | 0,000 |
| VDR | ||||||||
| B/b |
BB Bb bb |
49 (16,7) 168 (57,3) 76 (26) |
3 (1,3) 82 (35) 149 (63,7) |
0,000 | b | 0,546 | 0,812 | 0,000 |
| F/f |
FF Ff ff |
124 (41,6) 134 (45) 40 (13,4) |
125 (53,6) 102 (43,8) 6 (2,6) |
0,000 | F | 0,641 | 0,755 | 0,000 |
| IL1B | ||||||||
| +3953 A1/A2 |
A1A1 A1A2 A2A2 |
169 (56,1) 108 (35,9) 24 (8) |
185 (79,1) 47 (20) 2 (0,9) |
0,000 | A1 | 0,741 | 0,891 | 0,000 |
Примечание. р – достигнутый уровень значимости при сравнении частот аллелей и генотипов
У русских с ТБ и здоровых по сравнению с жителями Тувы чаще наблюдали гомозиготный по аллелею В и гетерозиготный генотипы. Среди жителей г. Томска, больных туберкулезом, по сравнению с тувинцами статистически значимо чаще встретились аллели 469+14C, 1465-85A, 274T гена NRAMP1, f гена VDR, и +3953А2 гена IL1В, реже регистрировались аллели 543N гена NRAMP1 и 1188С гена IL12B. В целом можно отметить, что отличия в распределении генотипов и аллелей между русскими и тувинцами были идентичными у больных и здоровых: у русских с туберкулезом преобладали те же аллели генов, что и у здоровых.
При сравнении распределений генотипов и частот аллелей в выборках больных и здоровых лиц, живущих в г. Томске и Томской области, выявлены статистически значимые