Макрофаги перитонеального экссудата как модель фагоцитоза и нарушений фагоцитарной активности
Полученные данные свидетельствуют, что преинкубация макрофагов с Fab-фрагментами aнти-FcR-антител полностью отменяет эффект усиления фагоцитоза S.typhimurium(взятую как объект проверки эффективности фагоцитоза), обусловленный IgG-антителами кролика против этого микроорганизма. Собственно Fab-фрагменты aнти-FcR-антител не оказывают какого-либо влияния на фагоцитоз несенсибилизированных антителами бактерий. Если к макрофагам предварительно добавляли Fab-фрагменты антител кролика против иммунного преципитата, образованного яичным альбумином и IgG-антителами кролика против этого антигена, это не оказывало никакого влияния на процесс фагоцитоза сенсибилизированных антителами бактериальных клеток.
Таким образом, Fab-фрагменты анти-FcR-aнтител избирательно подавляют фагоцитоз только сенсибилизированных антителами бактерий. С учетом результатов контрольных экспериментов это служит несомненным доказательством в пользу того, что усиление захвата корпускулярного антигена после его опсонизации IgG-антителами обусловленно взаимодействием Fc-уча-стка опсонизирующих антител с FcR макрофагов.
Обращает на себя внимание тот факт, что макрофаги, предварительно обработанные Fab-фрагментами aнти-FcR-антител, менее эффективно поглощают сенсибилизированные антителами бактериальные клетки, чем несенсибилизированные. Этот результат можно объяснить, исходя из представления, что после сенсибилизации бактерий у части из них происходит стерическое экранирование участка клеточной поверхности, посредством которого микроорганизмы прикрепляются к макрофагам. Фагоцитоз таких бактериальных клеток осуществляется, по-видимому, после взаимодействия двух молекул антител или более через их Fс-участки с несколькими FcR на цитоплазматической мембране макрофага. Если указанное предположение справедливо, захват этой части сенсибилизированных бактериальных клеток будет невозможен после блокирования FcR с помощью Fab-фрагментов aнти-FcR-антител.
Полученные в настоящей работе данные открывают новые подходы для регуляции процесса иммунного фагоцитоза, что может иметь существенное значение для детального анализа роли этого процесса при различных патологических состояниях.
УСИЛЕНИЕ С ПОМОЩЬЮ ХИТОЗАНА РЕАКЦИИ КОНТАКТНОГО
ВЗАИМОДЕЙСТВИЯ МАКРОФАГА С ТИМОЦИТАМИ in vitro
Старая и многогранная проблема иммуностимуляции приобрела новое выражение в связи с поиском путей к созданию искусственных вакцин. Основные усилия в данном направлении связаны с получением конъюгатов вакцинирующих антигенных детерминант с природными или искусственно синтезированными полимерными носителями. Роль носителя в таком молекулярном комплексе должна состоять в усилении специфического ответа на избранную антигенную детерминанту.
При поиске эффективного носителя, который мог бы быть использован при конъюгации с антигеном, необходимо иметь сведения о его адъювантном эффекте и отсутствии побочных патогенетических свойств. В этой связи было обращено внимание на хитозан — гомополисахарид, выделяемый из хитина наружного скелета беспозвоночных. Молекулярная масса изучаемого вещества ~ 120000 дальтон.
Цель исследования — выяснить влияние хитозана на процесс контактного взаимодействия макрофага с тимоцитами в опытах in vitro. Обращение к данным клеточным типам не случайно. Известно, что взаимодействие макрофага с тимоцитами является дополнительным фактором трансформации недифференцированных тимусзависимых клеток в зрелые Т-лимфоциты. В связи с этим интересно определить, оказывает ли какое-либо влияние избранный гомополимер на один из самых ранних этапов становления иммунной системы — формирование функционально активной популяции зрелых Т-клеток.
Было проведено 3 серии опытов. В 1-й серии изучали характер взаимодействия сингенных тимоцитов с прилипающими клетками перитонеального экссудата, которые инкубировали непосредственно перед постановкой реакции с одной из выбранных доз хитозана в течение различного времени. Установлено, что наиболее эффективно реакция гроздеобразования проходит при 30-минутной инкубации макрофагов с хитозаном. Количество тимоцитов, группирующихся вокруг макрофага, в 2,5 раза больше по сравнению с таковым в контроле. В этой же серии опытов решался вопрос об интенсивности взаимодействия анализируемых типов клеток в зависимости от дозы, использованного для инкубации хитозана, при оптимальном времени инкубации 30 мин. Выяснено, что наибольшее усиление реакции гроздеобразования наблюдается при добавлении в культуру 50 мкг полисахарида.
Во 2-й серии опытов анализ реакции гроздеобразования проведен в условиях предварительной 30- и 60-минутной инкубации тимоцитов с разными дозами хитозана. Инкубация в течение как 30, так и 60 мин приводила к усилению контактного взаимодействия тимоцитов с макрофагами. Как и в предыдущей серии опытов, оптимальная доза, усиливавшая эффект гроздеобразования, равнялась 50 мкг.
В заключительной 3-й серии опытов проведено изучение интенсивности гроздеобразования при внесении хитозана непосредственно в реагирующую систему макрофаг—лимфоцит. Как и в 2 предыдущих сериях опытов, констатировано усиление контактного взаимодействия тимоцитов с макрофагами.
Для объяснения выявленных фактов необходимо иметь в виду, что хитозан является поликатионом. В то же время интегральный заряд как тимоцитов, так и макрофагов отрицательный. Возможно, эффект усиления контактного взаимодействия связан с электростатическими межклеточными притяжениями под влиянием хитозана, включающими 2 этапа: 1-й этап — ад-гезия положительно заряженного хитозана на макрофаге или тимоците, 2-й — непосредственное взаимодействие отрицательно заряженной клетки с клеткой-партнером, проинкубированной с поликатионом и несущей в результате этого больший положительный заряд. Подобное представление подкрепляется тем, что эффект усиления реакции гроздеобразования не связан со схемой инкубации и будет одинаков независимо от того, какой тип клеток подвергался инкубации с хитозаном.
Второй момент, который требует объяснения, — это незначительное время инкубации клеток с хитозаном, при котором обнаруживается эффект усиления контактного взаимодействия. Возможно, что отсутствие эффекта при более длительной инкубации связано с фагоцитозом высокомолекулярного полисахарида, вследствие чего происходит восстановление исходного заряда взаимодействующих клеток. Однако представленное объяснение должно быть подтверждено дополнительными экспериментальным фактами.
АКТИВАЦИЯ ФАГОЦИТАРНЫХ КЛЕТОК И КЛЕТОЧНОГО ИММУНИТЕТА
СИНТЕТИЧЕСКИМИ ПОЛИЭЛЕКТРОЛИТАМИ
Ряд перспективных неприродных полиэлектролитов, использующихся для создания синтетических вакцин, обладает многими иммуномоделирующими потенциями: они усиливают миграцию стволовых клеток, Т- и В-лимфоцитов, являются стимуляторами Т- и В-клеток, замещают хелперную функцию Т-лимфоцитов и макрофагов. Эти свойства обеспечивают сильное стимулирующее действие на реакции гуморального и клеточного иммунитета.
Вместе с тем недостаточно ясным остается вопрос об их действии на систему фагоцитарных клеток, формирование клеточного, в частности трансплантационного, иммунитета. Целью настоящей работы было изучение этих вопросов.
Методика исследований была следующей: мышам гибридам(CBAXC57BL/6) внутрибрюшинно вводили различные дозы полиэлектролитов однократно, выделяли МФ через 48 ч и анализировали их.
Введение полианиона NA-5 вызывает в макрофагах мышей активацию гликолиза. Например, в 3 экспериментах усиление гликолиза по сравнению с контрольными клетками было в 1,45, 2,35, 4,3 раза. Это очень сильная активация гликолиза в клетках, свидетельствующая о переходе их на более высокий физиологический уровень метаболизма. Значительно возрастала в клетках и интенсивность гексозомонофосфатного шунта: в 2 из 3 опытов введение полианиона сопровождалось появлением макрофагов со средней активностью окисления глюкозы, соответствующей 8,67+1,47 и 7,24+1,95 МФЕ на 10б клеток (в контроле 5,17+0,95 и 4,1 + 1,29 МФЕ на 106 клеток). Еще более сильной оказалась интенсификация цикла мочевины, различия которого по сравнению с контрольными клетками были уже порядковыми. Например, в опытах 1—3 они составляли соответственно 8,43, 11,54 и 2,06 раза.
Существенное усиление гликолиза обусловливалось также введением животным карбоцепного полиамина Н-З: в 2 из 3 опытов активация была значительной, для ЛДГ она составляла в опытных макрофагах соответственно 89,27+7,41 и 39,54±4,56 МФЕ на 106 клеток, в контрольных — 26,36+8,36 и 20,59+3,86 МФЕ на 106 клеток. Столь же выраженным было усиление активности окисления глюкозы, которое превышало его в опытных макрофагах в сравнении с контрольными в 3 экспериментах соответственно в 2,11, 1,28 и 1,41 раза.
Крайне значительной была интенсификация цикла мочевины, так как активация ключевого фермента АРГ возрастала в различных опытах в 3,65—54,6 раза..
В то же время активность поликатиона D11-100э была значительно менее выражена, он не влиял существенно на состояние гликолиза и гексозомонофосфатного шунта макрофагов. Однако все же активность цикла мочевины в клетках достоверно увеличивалась, хотя и менее существенно, чем под влиянием Н-3 и NA-5.
В макрофагах мышей, стимулированных полианионом NA-5, почти двукратно повышалась активность лизосомальных гидролаз, составляя в опыте 27,42+4,09 нМ Р/ч на 10б клеток и в контроле 15,04+3,66 нМ P/ч на 10б клеток. Активность КФ после введения мышам Н-3 была еще большей — 35,51+4,82 нМ P/ч на 10б клеток. Подобное усиление свидетельствует о существенном возрастании в макрофагах переваривающей способности.
У макрофагов мышей полианион NA-5 вызывал не только интенсификацию некоторых путей метаболизма, но и повышение экспрессии рецепторов к IgG, которое было нерезко выраженным, но статистически достоверным.
Дозозависимым оказался ответ клетки, выявляемый по генерации кислородных радикалов у мышей, которым вводили различные дозы полиамина Н-3. Так, если доза 0,5 мг/мышь подавляла хемилюминесценцию макрофагов при фагоцитозе, не изменяя ее при адгезии клеток на стекло, то дозы 1, 5 и 10 мг/мышь уже обусловливали существенное возрастание хемилю-минесценции при фагоцитозе частиц. При адгезии эти дозы также оказались активирующими, за исключением дозы 5 мг/мышь. Оптимальное усиление генерации активных кислородных радикалов вызывало введение животным 1 мг/мышь препарата Н-3 — в этом случае повышалась хемилюминесценция максимально и при фагоцитозе, и при адгезии. Дальнейшее увеличение дозы не сопровождалось повышением действия на клетки. Подобное наблюдение полностью подтверждается данными литературы о влиянии этого препарата на различные иммунологические параметры.
Таким образом, синтетические полиэлектролиты—полианион NA-5 и карбоцепный полиамин Н-3 вызывают активацию макрофагов, усиливая гликолиз, гексозомонофосфатный шунт, цикл мочевины, активность лизосомальных гидролаз. Препараты повышают также экспрессию на плазматической мембране макрофагов Fcv-peцепторов. Имеются, однако, особенности, состоящие в том, что если Н-3 вызывает усиление генерации макрофагами активных кислородных радикалов, полианион NA-5 оказывается в этом отношении неактивным. Поликатион D11-100э оказывает менее выраженное влияние на макрофаги, однако существенно повышает на них экс- прессию Рс7-рецепторов, интенсифицирует цикл мочевины.
Формирование трансплантационного иммунитета изучали у животных, которые получали однократно внутрибрюшинно по 1 мг/мышь препаратов в день трансплантации кожи.
Результаты свидетельствовали, что все 3 препарата вызывали усиление трансплантационного иммунитета, выражающееся в достоверном ускорении отторжения трансплантата у мышей, которым их вводили. Причем, как и на других моделях, в частности при анализе состояния макрофагов в условиях воздействия препаратов, активность полииона D11-100э уступала активности NA-5 и Н-3. Можно сделать вывод, что полиион NA-5 и карбоцепный полиамин Н3 обладают способностью усиливать клеточный Т-опосредованный иммунитет, менее активным был D11-100э.
АКТИВАЦИЯ МАКРОФАГОВ ПОД ВЛИЯНИЕМ СИНТЕТИЧЕСКОГО АНТИОКСИДАНТА
Сейчас общепринятой считается закономерность: активация макрофагов (МФ) сопряжена с метаболическим (окислительным) взрывом, с активацией глюкозомонофосфатного шунта (ГМФШ), с продукцией и секрецией высокоактивных нестабильных продуктов восстановления кислорода — супероксиданионов О2~, перекиси водорода (Н2О2), радикалов ОН~ и синглетного кислорода (О2) .
Образующийся при этом избыток токсичных супероксидных радикалов, а также липопереки-си, накапливающиеся в фагосомах МФ в процессе фагоцитоза, могут обусловливать окислительное повреждение клеточных мембран и связанное с этим подавление функций МФ. У МФ описана собственная система антиоксидантной защиты, включающая супероксиддисмутазу, удаляющую избыток супероксидных радикалов, а также глу-татионпероксидазу и НАДФ-зависимую глутатионредуктазу, нейтрализующие липоперекиси.
Однако при недостаточности эндогенных антиоксидантов могут возникать различные нарушения функций МФ. Было показано, что алкилзамещенные производные 3-оксипиридина (8 ОП), оказывающие умеренное антиокислительное действие, являются эффективными ингибиторами свободнорадикальных реакций и могут быть использованы для защиты от деструктивного влияния свободных радикалов.
Целью работы было изучение влияния синтетических антиоксидантов на функции МФ. Из ряда синтетических производных ОП были выбраны 2-третбутил-З-оксипиридин (ТБОП), у которого была описана способность стабилизировать мембраны эритроцитов. Исследование проводились в сравнении со стандартным активатором МФ — бактериальным липополисахарида (ЛПС из Е. coli О55).
Данные, полученные при изучении непосредственного влияния ТБОП в сопоставлении с ЛПС на перитонеальные МФ таковы: для активации ГФДГ достаточно получасовой инкубации клеток с ТБОП. Судя по показателям прироста активности фермента, эффект ТБОП аналогичен действию стандартного активатора — бактериального ЛПС. Доля распластанных МФ возрастает по сравнению с контролем уже через 2 ч инкубации с испытуемыми препаратами. На ранних сроках (2 ч) эффект ТБОП более выражен по сравнению с эффектом стандартного активатора — ЛПС. На более поздних сроках культивирования (24 ч), активирующий эффект ЛПС продолжает нарастать, в то же время доля распластанных МФ под влиянием ТБОП имеет тенденцию к понижению по сравнению с ранними сроками, но остается достоверно повышенной в сопоставлении с постепенно возрастающим контрольным уровнем.
После внутрибрюшинного введения ТБОП уже через 1 ч он вызывает отчетливое повышение количества клеток в брюшной полости за счет МФ с преимущественным накоплением крупных МФ, причем и этот эффект аналогичен действию ЛПС.
МФ, извлеченные из брюшной полости мышей через 1 ч после внутрибрюшинного введения ТБОП, отличались усиленным распластыванием по сравнению с МФ контрольных животных. Фагоцитарная активность этих же МФ была повышенной, судя по интенсивности захвата ими клеток Candida albicans. В этих условиях эксперимента ТБОП по сравнению со стандартным активатором — бактериальным ЛПС — в большей степени активирует распластывание, а фагоцитарную активность повышает в меньшей степени. В более поздние сроки после введения исследуемого препарата (1.5— 24 ч) дальнейшего нарастания количества МФ в брюшной полости и их функциональной активности не наблюдали. В отличие от этого после введения ЛПС количество МФ в брюшной полости и их функциональная активность достигали максимального уровня лишь через 24 ч.
В связи с выявленными временными различиями стимулирующих эффектов при изучении влияния препаратов на интенсивность очищения брюшной полости мышей от введенных бактерий S. typhimurium (клиренс) ЛПС вводили за 24 ч, а ТБОП — за 1 ч до заражения. Для оценки клиренса вычисляли средние разности логарифмов концентрации бактерий через 1 ч после заражения у мышей контрольных и опытных групп. Было обнаружено значительное отставание интенсивности клиренса у мышей, получивших за 4 сут до заражения по 1 мл среды с тиогликолятом, по сравнению с контролем.
На рисунке видно, что ни ТБОП, ни стандартный активатор МФ бактериальный ЛПС не влияют на интенсивность очищения брюшной полости от введенных бактерий. Однако на фоне дефекта бактерицидности МФ, индуцированного предварительным введением среды с тиогликолятом, оба препарата в равной степени достоверно повышают исходно сниженную интенсивность очищения брюшной полости мышей. Под влиянием ТБОП, как и под влиянием бактериального ЛПС, наблюдали нормализацию уровня очищения брюшной полости, т. е. коррекцию моделированного в эксперименте дефекта бактерицидности МФ.
Таким образом, у изученного синтетического антиоксиданта ТБОП выявлена способность активировать мышиные перитонеальные МФ при непосредственном воздействии in vitro. После внутрибрюшинного введения того же препарата наблюдали повышение количества МФ в брюшной полости и их функциональной активности. У мышей с предварительно индуцированным дефектом функции клиренса брюшной полости препарат способствовал восстановлению нормального уровня антибактериальной защиты. По всем изученным тестам активирующего действия на МФ синтетический антиоксидант не уступал стандартному активатору МФ — бактериальному ЛПС. При введении мышам ТБОП наблюдали более ранние проявления активации МФ по сравнению с эффектами ЛПС.
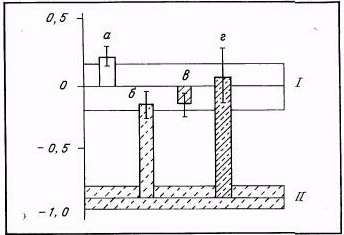
Показатели очищения брюшной полости мышей от введенных бактерий после инъекции испытуемых препаратов.
По оси ординат — средние величины разностей логарифмов концентрации бактерий в брюшной полости (М±т). I — доверительный интервал для контрольных мышей; // — доверительный интервал для мышей через 4 сут после введения среды с тиоглико-латом. а — через 1 ч после введения ТБОП; б — через 1 ч после введения ТБОП на фоне введения среды с тиогликолатом; в — через 24 ч после введения ЛПС; г — через 24 ч после введения ЛПС на фоне введения среды с тиогликолатом.
ФАГОЦИТАРНАЯ АКТИВНОСТЬ МАКРОФАГОВ ПЕРИТОНЕАЛЬНОГО ЭКССУДАТА
МЫШЕЙ ПРИ ДЕЙСТВИИ ПРЕПАРАТОВ ПЛАТИНЫ
Макрофаги способны вызывать лизис различных типов опухолевых клеток, не повреждая нормальные клетки того же гистогенеза. Нормальные «неармированные», неактивированные макрофаги осуществляют взаимодействие с опухолевыми клетками на стадии их возникновения и в период начальной стадии их развития. Вещества-цитостатики, применяемые в химиотерапии новообразований, оказывают влияние на иммунную систему макроорганизма, в частности, поражая и систему мононуклеаров. Влияние различных классов цитостатиков на функционирование макрофагального звена иммунитета достаточно глубоко изучено. Однако данных о характере влияния нового класса противоопухолевых соединений — координационных соединений платины на макрофаги в доступной литературе не встречается. Было проведено исследование — определение действия препаратов платины на фагоцитарную активность макрофагов перитонеального экссудата. В качестве препаратов были взяты Оксоплатина (цисдихлородиаминтрансдигидроксоплатина IV производства фирмы «Lachema») и циклоплатам (аминциклопептиламин-5-малатоплатина (II) отечественного производства).
В ходе проведенных исследований было установлено, что привнесении препаратов платины непосредственно в пробирки для счета при регистрации хемилюминесценции в опытах in vitro происходит незначительное увеличение высвобождения гидроксильного радикала (ОН~), супероксиданиона (О2-), синглетного кислорода ('02), перекиси водорода (H202), что косвенно позволяет судить о стимуляции фагоцитарной активности перитонеальных макрофагов препаратами платины in vitro. Так, для циклоплатама максимальное увеличение образования активных метаболитов кислорода наблюдалось в дозе, равной 0.5 МПД (LD=23 мг/кг), и индекс хемилюминесценции составлял 3,2 по сравнению с 2,28 в контроле, тогда как добавление оксоплатины в дозе, равной 1/4 МПД, к суспензии перитонеальных макрофагов вызывало увеличение индекса хемилюменисценции с 1,69 в контрольных пробах до 2,62 в опыте.
Неоднозначные и достаточно противоречивые результаты были получены при дальнейшем исследовании влияния оксоплатины и циклоплатама на фагоцитарную функцию перитонеальных макрофагов in vivo (при введении препаратов внутрибрюшинно мышам). Введение оксоплатины и циклоплатама неиммунным мышам вызывало подавление фагоцитоза (на 1-й день после введения циклоплатама во всех дозах, на 1-й и 2-й дни после введения оксоплатины во всех дозах, с установлением стимулирующего влияния в последующие дни для обоих препаратов).
Однако введение оксоплатины и циклоплатама в тех же дозах в аналогичные сроки совместно с антигенной стимуляцией дало противоположный эффект. На 1-й день после введения оба препарата вызвали дозозависимое увеличение индекса хемилюминесценции на 2 и более порядка (индекс хемилюминесценции Ихл для оксоплатины в дозе 1,0 МПД составил 106,9, для циклоплатама в дозе 1,0 МПД — 407,0, тогда как в контроле — 1,3—2,5). В последующие дни после введения препаратов иммунным мышам стимулирующее влияние на фагоцитарную активность перитонеальных макрофагов прослеживалось отчетливо для всех доз, но носило менее выраженный характер.
Предполагается, что при объяснении подобного явления нельзя оставить без внимания факт гетерогенности перитонеальных макрофагов и неизбежной реакции на внутрибрюшинное введение аллоантигена, выражающейся в перераспределении субпопуляций перитонеальных макрофагов в пользу так называемых воспалительных в отличие от резидентных. Не исключено появление незрелых резидентных макрофагов, также характеризующихся большей пероксидазной активностью.
Однако возможно, что при подобной постановке реакции регистрировался факт захвата и поглощения перитонеальными макрофагами частиц, коими могли быть (и явно были) не только гранулы зимозана, но и гетерологичные эритроциты барана. В пользу этого говорят данные работы, проделанной X. М. Исиной в лаборатории И. Я. Учителя , о том, что именно в 1-е сутки после иммунизации происходят максимальный захват, поглощение и разрушение макрофагами гетерологичных эритроцитов с последующей (к 48-му часу) стабилизацией процесса. Поэтому делается вывод, что 1-е сутки введения не могут рассматриваться как основополагающие при утверждении стимулирующего влияния оксоплатины и циклоплатама на фагоцитарную активность перитонеальных макрофагов, тогда как результаты последующих дней являются достоверным подтверждением подобного явления
ИЗУЧЕНИЕ ФАГОЦИТАРНОЙ АКТИВНОСТИ ПЕРИТОНЕАЛЬНЫХ МАКРОФАГОВ В
ОТНОШЕНИИ YERSINIA PESTIS С ДЕФЕКТНЫМИ И ПОЛНОЦЕННЫМИ
FRA-ГЕНАМИ
Известно, что возможность развития чумной инфекции во многом определяется исходом взаимодействия клеток возбудителя Y. pestis с фагоцитами, который зависит от степени бактерицидной активности макрофагов (МФ) и наличия антифагоцитарных факторов у микробов. К антифагоцитарным субстанциям Y. pestis относят термоиндуцируемый капсульный антиген «фракция I», антигены вирулентности V, W, I и др.. Не исключено существование неидентифицированных компонентов с той же функцией. Действие фракции I связывают с ингибицией бактерицидной активности МФ, ее участие в процессе захвата бактерий МФ отрицается. Специфическая иммунизация животных приводит к изменению МФ, которое способствует ускорению поглощения вирулентных и вакцинных штаммов Y. pestis и последующего их лизиса. В последние годы установлено, что детерминанты фракции I и VW-антигенов локализованы на плазмидах, которые, вполне вероятно, несут и другую генетическую информацию, пока неидентифицированную, но, возможно, связанную с антифагоцитарной активностью Y. pestis. Имеющиеся в литературе данные о фагоцитозе при чуме получены в опытах, в которых не идентифицировалось, связано ли нарушение синтеза исследуемых антигенов с дефектом отдельных конкретных генов или утратой соответствующей плазмиды целиком. Последнее событие может вызвать одновременно дефектность по другим, еще не исследованным антигенам. Это еще требует уточнения.
Цель работы — определение вклада фракции I в процесс взаимодействия возбудителя чумы с индуцированными МФ иммунизированных и интактных экспериментальных животных.
В опытах использовали природный вирулентный штамм Y. pestis 4 (Fra+) и изогенный штамм 4 (Fra-), у которого синтез фракции I был «выключен» встройкой элемента Tn10 в соответствующий ген плазмиды . Испытывали по 3 клона каждого штамма. Бактерии перед опытом выращивали в течение 48 ч при 28 и 37 °С на агаре LB («Difco») рН 7,2. Фагоцитоз изучали in vitro в культуре индуцированных перитонеальных МФ морских свинок и белых мышей, интактных и иммунизированных подкожно однократно в дозе 106 микробных клеток (МК) чумной вакциной. В опытах с фагоцитами нагрузка составляла 50 микробных клеток (мк) на МФ. Пробы инкубировали при 37 °С в течение 6 ч. Интенсивность фагоцитоза оценивали с помощью показателя активности фагоцитов (АФ) и индекса завершенности фагоцитоза (ИЗФ).
Все изученные бактерии, выращенные при 28 °С (28°-культуры), когда синтез фракции I находится на очень низком уровне, поглощались одинаково вне зависимости от способности их fra-генов нормально функционировать и от того, выделены испытываемые МФ от иммунизированных или интактных животных. В опытах с бактериями, выращенными при 37 °С (37°-культуры), эффективность захвата (АФ) во всех пробах была значительно ниже, чем при 28 °С.. Поскольку снижение наблюдали у штаммов как способных, так и неспособных продуцировать фракцию I, сделано предположение, что в 37°-культуре имеет место индукция синтеза или проявление функций не фракции I, а каких-то дополнительных компонентов клеточной стенки бактерий, мешающих установлению контакта бактерий и МФ. Необходима дальнейшая работа по идентификации этих компонентов.
МФ интактных белых мышей одинаково захватывали бактерии Fra+- и Fra-, МФ иммунизированных мышей несколько активнее поглощали Fra+-бактерии. МФ морских свинок независимо от того, получены они от интактных или иммунизированных животных, более активно захватывали Fra+-бактерии. Похоже, что в организме морских свинок в отношении испытанных МФ фракция I проявляет себя как неспецифический стимулятор фагоцитоза, тогда как в МФ белых мышей должна произойти специфическая перестройка, сопровождающая иммунизацию, прежде чем фракция I окажется способной слабо стимулировать захват бактерий возбудителя. Более высокие значения АФ у вакцинированных морских свинок в отношении как Fra+-, так и Fra--культур возбудителя чумы, выращенных при 37 °С, позволяют думать также о появлении у бактерий при этой температуре культивирования дополнительных факторов, которые обладают избирательной активностью именно в отношении МФ морских свинок. Еще более выраженный стимулирующий эффект этих дополнительных факторов проявляется при контакте МФ иммунизированных морских свинок с 37°-культурами, содержащими фракцию I, что позволяет предположить также и специфический элемент действия этого антигена, направленный на усиление захвата бактерий указанными фагоцитами.
Иными словами, данные экспериментов свидетельствуют, что помимо фракции I, возбудитель чумы, выращенный при 37 °С, содержит компоненты, снижающие фагоцитарную активность МФ интактных и иммунизированных животных, и компоненты, специфически способствующие захвату бактерий МФ морских свинок. Действие последних частично или полностью в присутствии фракции I нейтрализует эффект неидентифицированных негативных факторов. Фракция I способствует захвату бактерий чумы МФ и более значима для морских свинок.
В общем виде выводы по данному эксперименту можно сделать следующие: 1. Иммунизация чумной вакциной морских свинок индуцирует специфическую в отношении фракции I перестройку в макрофагах, обусловливающую усиление захвата и переваривания Fra+-Y. pestis выросших при 37 °С. Подобного не происходит у белых мышей.
2. Дефект Y. pestis по fra-генам и отсутствие фракции I обусловливают более выраженное снижение эффективности захвата бактерий, выращенных при 37 °С макрофагами морских сви-
нок, но не белых мышей и большую степень переваривания макрофагами морских свинок при всех условиях опыта, а макрофагами белых мышей — только в отношении 37°-культур.
3. Как в захвате, так и завершении фагоцитоза роль фракции более существенна в макрофагах морских свинок.
ВЛИЯНИЕ МОДИФИКАТОРОВ БИОЛОГИЧЕСКОГО ОТВЕТА ПРИРОДНОГО
ПРОИСХОЖДЕНИЯ НА ФУНКЦИОНАЛЬНУЮ АКТИВНОСТЬ МАКРОФАГОВ
(ОНКОЛОГИЧЕСКИЙ АСПЕКТ)
Несмотря на значительные успехи химиотерапии некоторых видов злокачественных новообразований, результаты применения противоопухолевых химиопрепаратов при наиболее распространенных локализациях рака остаются малоудовлетворительными. Становится все более очевидным, что одним из основных препятствий для успешной химиотерапии злокачественных опухолей является гетерогенность популяции неопластических клеток, которая выражается, в частности, в наличии в ней клонов клеток, резистентных к химиотерапевтиче-ским агентам. Более того, такая резистентность может относиться к целым классам препаратов, что может ограничивать эффективность и комплексной полихимиотерапии. Еще более осложняет положение генетическая нестабильность опухолевых клеток, которые, имея высокий уровень спонтанных мутаций, чрезвычайно легко подвергаются мутагенному воздействию химиопрепаратов и продуктов их метаболизма. Это в значительной мере усиливает гетерогенность опухолевой популяции, способствует генерации еще большего числа резистентных к химиотерапии клонов, усиливает их способность к метастизированию, рецидиву на фоне продолжающейся химиотерапии.
В конечном счете даже весьма радикальная (на 99,5 %) редукция опухолевой массы в процессе химиотерапии почти неизбежно приводит к возобновлению процесса за счет резистентных клонов — предшествовавших или возникших в процессе химиотерапии. Более того, такие клоны оказываются в далеко зашедшей стадии опухолевой прогрессии и, следовательно, более злокачественными.
В этих условиях вполне закономерными представляются поиски путей элиминации опухолевых клеток с так называемой множественной лекарственной устойчивостью с помощью других механизмов, в частности литического потенциала иммунокомпетентных клеток. Особый интерес в этом отношении представляют макрофаги. В отличие от других типов иммуноцитов их активность в меньшей степени подавляется в процессе интенсивной циторедуктивной терапии, они способны к эффективным противоопухолевым реакциям в соотношении эффектор/мишень, приближающемся к 1:1 и, инфильтрируя опухолевую строму, имеют достаточную возможность для контакта с опухолевой клеткой. Показана возможность активации цитолитического действия макрофагов с помощью различных модификаторов биологического ответа (МБО) после воздействия противоопухолевых химиопрепаратов, в то время как активность других эффекторных систем может быть существенно подавлена. Поэтому в настоящее время идет активная разработка методов адъювантной иммунотерапии с включением активаторов макрофагов. При этом предварительная оценка эффекта последних проводится in vitro и в основном по способности индуцировать цитолитическую и цитостатическую активность. По сохранению такой способности в процессе применения химиотерапевтических противоопухолевых препаратов оценивается и «совместимость» МБО с ними. Однако индукция цитотоксичности является только одной стороной активации макрофагов, под влиянием МБО происходят другие значительные изменения функциональной активности этих клеток, в частности усиливается продукция и секреция целого ряда ростовых факторов. В рамках такого подхода было изучено влияние БЦЖ и циклофосфамида на перитонеальные макрофаги мышей. Названные препараты выбраны как модельные в виду их достаточной изученности как индукторов противоопухолевой активности макрофагов in vitro и in vivo, а также достаточно широкого применения в клинической практике.
Известно, что цитотоксическая активность макрофагов in vitro достигает своего максимума к 48—72 ч культивирования, а затем быстро снижается. Была проведена оценка ростстимулирующей активности резидентных и БЦЖ-активированных макрофагов в процессе культивирования in vitro.
Установлено, что способность поддерживать рост опухолевых клеток прогрессивно снижается у резидентных макрофагов и нарастает у БЦЖ-активированных. Если