Наследственность, представления о генетическом коде, гены индивидуальности
2. Гены в хромосоме расположены линейно, каждый ген занимает в хромосоме определенный локус (место).
3. Гены , расположенные в одной хромосоме, образуют группу сцепления и вместе (сцеплено) передаются потомкам, число групп сцепления равно гаплоидному набору хромосом.
4. Сцепление не абсолютно, так как в профазе мейоза может происходить кроссинговер и гены, находящиесяв одной хромосоме, разобщаются. Сила сцепления зависит от расстояния между генами в хромосоме: чем больше расстояние, тем меньше сила сцепления. и наоборот. Расстояние между генами измеряется в процентах кроссинговера. 1% кроссинговера соответтствует одной морганиде.4
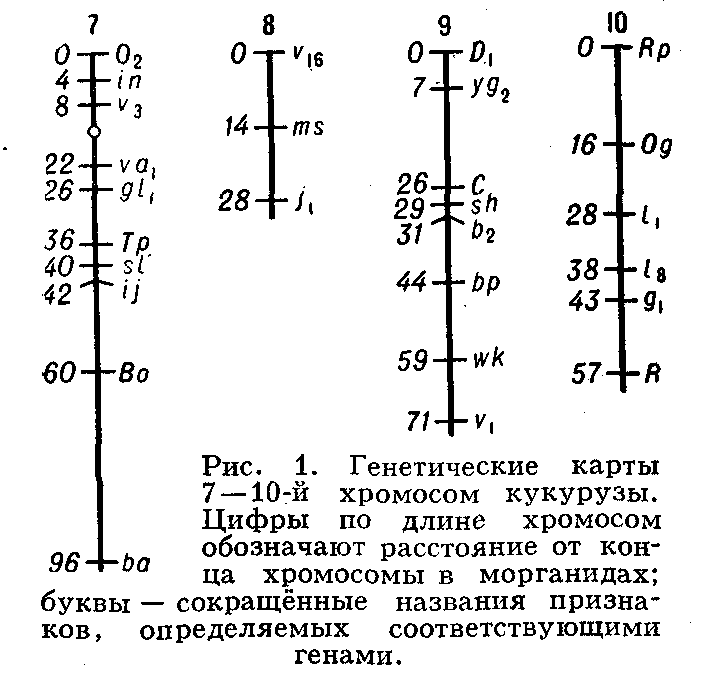
Генетические карты хромосом составляют для каждой пары гомологичных хромосом. Группы сцепления нумеруют последовательно, по мере их обнаружения. Кроме номера группы сцепления, указывают полные или сокращённые назв. мутантных генов, их расстояния в морганидах от одного из концов хромосомы, принятого за нулевую точку, а также место центромеры. Составить Генетические карты хромосом можно только для объектов, у которых изучено большое число мутантных генов. Например, у дрозофилы идентифицировано свыше 500 генов, локализованных в её 4 группах сцепления, у кукурузы — около 400 генов, распределённых в 10 группах сцепления (рис. 1). У менее изученных объектов число обнаруженных групп сцепления
меньше гаплоидного числа хромосом. Так, у домовой мыши выявлено около 200 генов, образующих 15 групп сцепления (на самом деле их 20); у кур изучено пока всего 8 из 39. У человека из ожидаемых 23 групп сцепления (23 пары хромосом) идентифицировано только 10, причём в каждой группе известно небольшое число генов; наиболее подробные карты составлены для половых хромосом.
Генетика пола. Количество групп сцепленных генов оказалось равным количеству пар хромосом, присущих данному виду. Важнейшие доказательства хромосомной теории наследственности были получены при изучении наследования, сцепленного с полом. Ранее цитологи открыли в хромосомных наборах ряда видов жиивотных особые , так называемые половые хромосомы, которыми самки отличаются от самцов. В одних случаях самки имеют 2 одинаковые половые хромосомы(XX), а самцы-разные(XY), в других - самцы-2 одинаковые(XX, или ZZ), а самки - разные(XY, или ZW). Пол с одинаковыми половыми хромосомами называется гомогаметным , с разными - гетерогаметным. Женский пол гомогаметен , а мужской гетерогаметен у некоторых насекомых ( в том числе у дрозофилы) и всех млекопитающих. Обратное соотношение - у птиц и бабочек. Ряд признаков у дрозофилы наследуется в
строгом соответствии с передачей потомству X-хромосом. Самка дрозофилы, проявляюща
рецесивный признак , например белую окраску глаз, в силу гомозиготности по этому гену, находящимуся в X-хромосоме, передает белую окраску глаз всем сыновьям, так как они получают свою X-хромосому только от матери. В случае гетерозиготности по рецессивному сцепленному с полом признаку самка передает его половине сыновей. При противоположном определении пола (самцы XX, или ZZ; самки-XY, или ZW) особи мужского пола передают сцепленные с полом признаки дочерям, получающим свою X( =Z ) хромосому от отца. Иногда в результате нерасхождения половых хромосом при мейозе возникают самки строения XXY и самцы XYY. Возможны также случаи соединения X-хромосом концами; тогда самки передают сцепленные X-хромосомы своим дочерям, у которых и проявляются сцепленные с полом признаки. Сыновья же похожи на отцов (такое наследование называется гологеническим ). Если наследуемые гены находятся в Y-хромосоме, то определяемые ими признаки передаются только по мужской линии - от отца к сыну (такое наследование называется голандрическим). Хромосомная теория наследственности вскрыла внутриклеточные механизмы наследственности, дала точное и единое объяснение всех явлений наследования при половом размножении, объяснила сущность изменений наследственности, то есть изменчивости.
Нехромосомная теория наследственности. Первенствующая роль ядра и хромосом в наследственности не исключает передачи некоторых признаков и через цитоплазму, в которой обнаружены структуры, способные к самовоспроизведению.Единицы цитоплазматической (нехромосомной) наследственности отличаются от хромосомных тем, что они не расходятся при мейозе. Поэтому потомство при нехромосомной наследственности воспроизводит признаки только одного из родителей (чаще матери ). Таким образом , различают ядерную наследственность, связанную с передачей наследственных признаков, находящихся в хромосомах ядра (иногда ее называют хромосомной наследственностью ), и внеядерную наследственность, зависящую от передачи самовоспроизводящихся структур цитоплазмы. Ядерная наследственность реализуется и при вегетативном размножении , но не сопровождается перераспределением генов, что наблюдается при половом размножении, а обеспечивает константную передачу признаков из поколения в поколение, нарушаемую только соматическими мутациями.
Молекулярная генетика. Применение новых физических и химических методов, а также использование в качестве объектов исследования бактерий и вирусов резко повысили разрешающую способность генетических экспериментов, привели к изучению наследственности на молекулярном уровне и бурному развитию молекулярной генетики. Впервые Н. К. Кольцов (1927 г) выдвинул и обосновал представления о молекулярной основе наследственности и о матричном способе размножения “наследственных молекул”.В 40-х гг. 20 в. была экспериментально доказана генетическая роль дизоксирибонуклеиновой кислотиы ( ДНК ) , а в 50-60-х гг. установлена ее молекулярная структура и выяснены принципы кодирования генетической информации. Генетическая информация,заложенная в наследственных структурах организмов (в хромосомах, цитоплазме, клеточных организмах), получаемая от предков в виде совокупности генов информация о составе, строении и характере обмена составляющих организм веществ (прежде всего белков и нуклеиновых кислот) и связанных с ними функциях. У многоклеточных форм при половом размножении генетическая информация передаётся из поколения в поколение через посредство половых клеток — гамет, единственная функция к-рых — передача и хранение генетической информации. У микроорганизмов и вирусов имеются особые типы ее передачи . Генетическая информация заключена преимущественно в хромосомах, где она зашифрована в определённой линейной последовательности нуклеотидов в молекулах дезоксирибонуклеиновой кислоты — ДНК (генетический код). Генетический код - это система зашифровки наследственной информации в молекулах нуклеиновых кислот, реализующаяся у животных, растений, бактерий и вирусов в виде последовательности нуклеотидов. В природных нуклеиновых кислотах — дезоксирибонуклеиновой (ДНК) и рибонуклеиновой (РНК)—встречаются 5 распространённых типов нуклеотидов (по 4 в каждой нуклеиновой к-те), разлчающихся по входящему в их состав азотистому основанию . В ДНК встречаются основания:
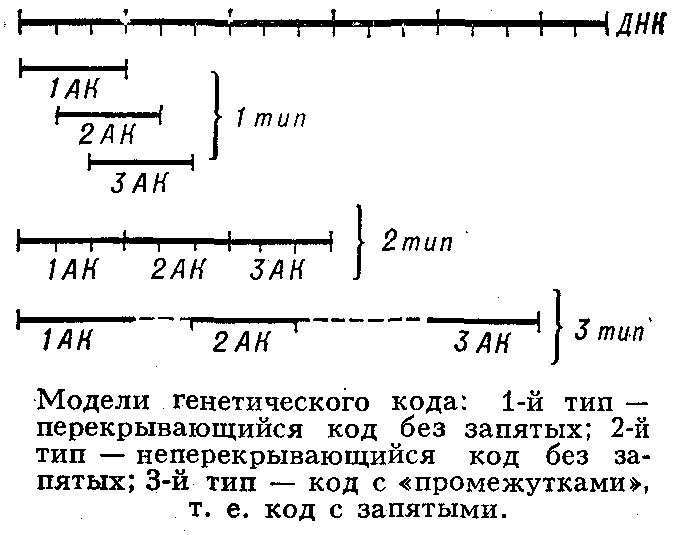
аденин (А), гуанин (Г), цитозин (Ц), тимин (Т); в РНК вместо тимина присутствует урацил (У). Кроме них, в составе нуклеиновых к-т обнаружено ок. 20 редко встречающихся (т. н. неканонических, или минорных) оснований, а также необычных Сахаров. Так как количество кодирующих знаков Генетического кода (4) и число разновидностей аминокислот в белке (20) не совпадают, кодовое число (т. е. кол-во нуклеотидов, кодирующих 1 аминокислоту) не может быть равно 1. Различных сочетаний по 2 нуклеотида возможно лишь 42 = 16, но этого также недостаточно для зашифровки всех аминокислот. Американский учёный Г. Гамов предложил (1954) модель т р и п л е т н о г о генетического кода, т. е. такого, в котором 1 аминокислоту кодирует группа из трёх нуклеотидов, называемых кодоном. Число возможных триплетов равно 43 = 64, а это более чем втрое превышает число распространённых аминокислот, в связи с чем было высказано предположение, что каждой аминокислоте соответствует несколько кодонов (так называемая вырожденность кода). Было предложено много различных моделей генетического кода, из которых серьёзного внимания заслуживали три модели (см. рис.): перекрывающийся код без запятых, неперекрывающийся код без запятых и код с запятыми. В 1961 Ф. Крик (Великобритания) с сотрудниками получил подтверждение гипотезы триплетного неперекрывающегося кода без запятых. Установлены след. осн. закономерности, касающиеся генетического кода: 1) между последовательностью нуклеотидов и кодируемой последовательностью аминокислот существует линейное соответствие (коллинеарность генетического кода); 2) считывание кода начинается с определённой точки; 3) считывание идёт в одном направлении в пределах одного гена; 4) код является неперекрывающимся; 5) при считывании не бывает промежутков (код без запятых); 6) генетический код, как правило, является вырожденным, т. е. 1 аминокислоту кодируют 2 и более триплетов-синонимов (вырожденность генетического кода уменьшает вероятность того, что мутационная замена основания в триплете приведёт к ошибке); 7) кодовое число равно трём;
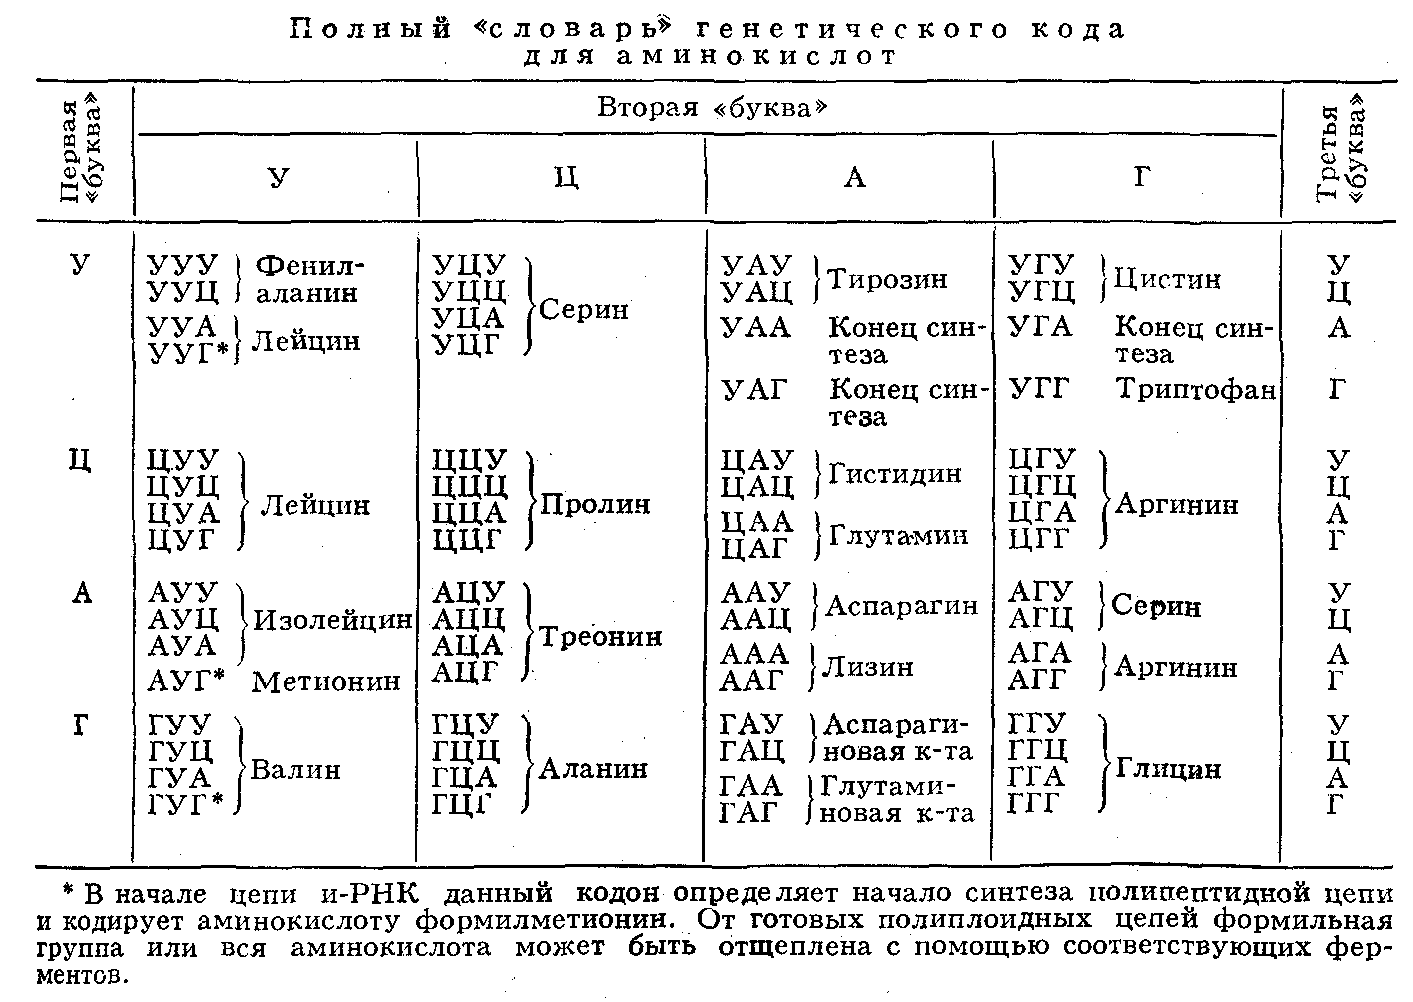
8) код в живой природе универсален (за нек-рыми исключениями). Универсальность генетического кода подтверждается экспериментами по синтезу белка in vitго. Если в бесклеточную систему, полученную из одного организма (например, кишечной палочки), добавить нуклеиновокислотную матрицу, полученную из другого организма, далеко отстоящего от первого в эволюционном отношении (например, проростков гороха), то в такой системе будет идти белковый синтез. Благодаря работам амер. генетиков М. Ниренберга, С. Очоа, X. Корана известен не только состав, но и порядок нуклеотидов во всех кодонах..
Из 64 кодонов у бактерий и фагов 3 кодона — УАА, УАГ и УГА — не кодируют аминокислот; они служат сигналом к освобождению полипептидной цепи с рибосомы, т. е. сигнализируют о завершении синтеза полипептида. Их наз. терминирующими кодонами. Существуют также 3 сигнала о начале синтеза — это т. н. инициирующие колоны — АУГ, ГУГ и УУГ,— к-рые, будучи включёнными в начале соответствующей информационной РНК (и-РНК), определяют включение формилметионина в первое положение синтезируемой полипептидной цепи. Приведённые данные справедливы для бактериальных систем; для высших организмов многое ещё не ясно. Так, кодон УГА у высших организмов может быть значащим; не совсем понятен также механизм инициации полипептида.
Реализация генетического кода в клетке происходит в два этапа. Первый из них протекает в ядре; он носит назв. транскрипции и заключается в синтезе молекул и-РНК на соответствующих участках ДНК. При этом последовательность нуклеотидов ДНК « переписывается » в нуклеотидную последовательность РНК. Второй этап — трансляция — протекает в цитоплазме, на рибосомах; при этом последовательность нуклеотидов и-РНК переводится в последовательность аминокислот в белке; этот этап протекает при участии транспортной РНК (т-РНК) и соответствующих ферментов.
Генетическая информация реализуется в ходе онтогенеза — развития особи — ее передачей от гена к признаку. Все клетки организма возникают в результате делений единственной ис
ходной клетки — зиготы — и потому имеют один и тот же набор генов — потенциально одну и ту же генетическую информацию. Специфичность клеток разных тканей определяется тем, что в них активны разные гены, т. е. реализуется не вся информация, а только её часть, необходимая для функционирования данной ткани.
По мере изучения наследственности на субклеточном и молекулярном уровне углублялось и уточнялось представление о гене. Если в опытах по наследованию различных признаков ген постулировался как элементарная неделимая единица наследственности, а в свете данных цитологии его рассматривали как изолированный участок хромосомы, то на молекулярном уровне ген-входящий в состав хромосомы участок молекулы ДНК , способный к самовоспроизведению и имеющий специфическую структуру, в которой закодирована программа развития одного или нескольких признаков организма. В 50-х гг. на микроорганизмах (американский генетик С. Бензер)было показано , что каждый ген состоит из ряда различных участков, которые могут мутировать и между которыми может происходить кроссинговер. Так подтвердилось представление о сложной структуре гена, развивавшееся еще в 30-х гг. А. C. Серебровским и Н. П. Дубининым на основе данных генетического анализа.
В 1967-69 гг. был осуществлен синтез вирусной ДНК вне организма, а также химический синтез гена дрожжевой аланиновой транспортной РНК. Новой областью исследования стала наследственность соматических клеток в организме и в культурах тканей. Открыта возможность экспериментальной гибридизации соматических клеток разных видов. В связи с достижениями молекулярной биологии явления наследственности приобрели ключевое значение для понимания ряда биологических процессов, а также для множества вопросов практтики.
Наследственность и эволюция. Еще Дарвину было ясно значение наследственности для эволюции организмов. Установление дискретной природы наследственности устранило
одно из важных возражений против дарвинизма: при скрещивании особей , у которых появились наследственные изменения, последние должны якобы “ разбавляться “ и ослабевать в своем направлении. Однако, в соответствии с законами Менделя,они не уничтожаются и не смешиваются, а вновь проявляются в потомстве в определенных условиях. В популяциях яв-
ления наследственности предстали как сложные процессы, основанные на скрещиваниях между особями, отборе, мутациях , генетико-автоматических процессах и др. На это впервые указал С. С. Четвериков (1926 г.) , экспериментально доказавший накопление мутаций внутри популяции. И. И. Шмальгаузен (1946 г.) выдвинул положение о “ мобилизационном ре
зерве наследственной изменчивости “ как материале для творческой деятельности естественного отбора при изменении условий внешней среды. Показано значение разных типов изменений наследственности в эволюции. Эволюция понимается как постепенное и многократное изменение наследственности вида. в то же время наследственность, обеспечивающая постоянство видовой организации, -это коренное свойство жизни, связанное с физико-химической структкрой элементарных единиц клетки, прежде всего ее хромосомного аппарата, и прошедшее длительный период эволюции.
Принципы организации этой структуры (генетический код), по-видимому, универсальны для всех живых существ и рассматриваются как важнейший атрибут жизни.
Под контролем наследственности находится и онтогенез, начинающийся с оплодотворения яйца и осуществляющийся в конкретных условиях среды. Отсюда различие между совокупностью генов, получаемых организмом от родителей, — генотипом и комплексом признаков организма на всех стадиях его развития — фенотипом. Роль генотипа и среды в формировании фенотипа может быть различна.
Но всегда следует учитывать генотипически обусловленную норму реакции организма на влияния среды. Изменения в фенотипе не отражаются адекватно на генотипич. структуре половых клеток, поэтому традиционное представление о наследовании приобретённых признаков отвергнуто, как не имеющее фак-тич. основы и неправильное теоретически. Механизм реализации наследственности в ходе развития особи, по-видимому, связан со сменой действия разных генов во времени и осуществляется при взаимодействии ядра и цитоплазмы, в к-рой происходит синтез тех или иных белков на основе программы, записанной в ДНК и передающейся в цитоплазму с информационной РНК.
Закономерности наследственности имеют огромное значение для практики сельского х-ва и медицины. На них основываются выведение новых и совершенствование существующих сортов растений и пород животных. Изучение закономерностей наследственности привело к научному обоснованию применявшихся ранее эмпирически методов селекции и к разработке новых приёмов (экспериментальный мутагенез, гетерозис, полиплоидия и др.).
Генетика человека - это отрасль генетики, тесно связанная с антропологией и медициной. Генетика человека условно подразделяют на антропогенетику, изучающую наследственность и изменчивость нормальных признаков человеческого организма, и генетику медицинскую, к-рая изучает его наследственную патологию (болезни, дефекты, уродства' и др.). Генетика человека связана также с эволюционной теорией, так как исследует конкретные механизмы эволюции человека и его место в природе, с психологией, философией, социологией. Из направлений Генетика человека интенсивно развиваются питогенетика, биохимич. генетика, иммуногенетика, генетика высшей нервной деятельности, физиологич. генетика.
В Генетике человека вместо классич. гибридологического анализа применяют генеалогический метод, к-рый состоит в анализе распределения в семьях (точнее, в родословных) лиц, обладающих данным признаком (или аномалией) и не обладающих им, что раскрывает тип наследования, частоту и интенсивность проявления признака и т. д. При анализе семейных данных получают также цифры эмпирического риска, т. е. вероятность обладания признаком в зависимости от степени родства с его носителем. Генеалогич. методом уже показано, что более 1800 морфологич., биохимич. и др. признаков человека наследуется по законам Менделя . Например, тёмная окраска кожи и волос доминирует над светлой; пониженная активность или отсутствие нек-рых ферментов определяется рецессивными генами, а рост, вес, уровень интеллекта и ряд др. признаков — «полимерными» генами, т. е. системами из мн. генов. Мн. признаки и болезни человека, наследующиеся сцепленно с полом, обусловлены генами, локализованными в Х- или У- хромосоме. Таких генов известно ок. 120. К ним относятся гены гемофилии А и В, недостаточности фермента глюко-зо-6-фосфат-дегидрогеназы, цветовой слепоты и др. Др. метод генетики человека— близнецевый м е т о д . Однояйцовые близнецы (ОБ) развиваются из одной яйцеклетки, оплодотворённой одним спермием; поэтому набор генов (генотип) у ОБ идентичен. Разнояйцевые близнецы (РБ) развиваются из двух и более яйцеклеток, оплодотворённых разными спермиями; поэтому их генотипы различаются так же, как у братьев и сестёр.
Наследственность и среда.
Гены проявляют свои функции не в пустоте , а в такой высокоорганизованной системе , как клетка , которая сама находится в определенном окружении – среди других клеток или во внешней среде. Каков бы ни был генотип , его свойства проявляются лишь в той степени , в какой это позволяют окружающие условия.
Растение , выращиваемое в темноте , остается белым и хилым ; оно неспособно извлекать из углекислого газа энергию , необходимую для обмена веществ , даже в том случае, когда все его клетки содержат генетическую информацию . необходимую для развития хлоропластов, а также синтеза и деятельности хлорофилла. В равной мере генетические потенции , определяющие цвет глаз , проявляются только в особых условиях , которые создаются в клеткахрадужной оболочки; эти потенции реализуются при условии, если предварительно благодаря действию многочисленных генов сам глаз дорстаточно развился.
Наконец , фенотип организма представляет собой результат взаимодействий между генотипом и средой в каждый данный момент его жизни и на каждом этапе его индивидуального развития.
Действия среды могут быть отнесены к двум типам , хотя в реальной обстановке они часто налагаются друг на друга. С одной стороны , это сильные воздействия , приводящие к полному или частичному подавлению выражения генетических потенций с другой – слабые влияния , выражающиеся лишь в небольших изменениях степени их выражения. Первый тип воздействий зависит от случайных обстоятельств . второй обычен и неазрывно связан с функционированием живой материи.
Индивидуальное развитие высшего организма начинается со стадии зиготы. Наследственные потенции , получаемые им от родителей , проявляются лишь постепенно , в ходе длительного и сложного процесса развития . и начиная с первых делений дробления яйца , в их реализации принимает участие среда.
Для генов будущего организма исходной средой служит цитоплазма яйца , происходящего от материнского организма и воплощающего в себе клеточную непрерывность. Этого может оказаться достаточно , чтобы ориентировать развитие эмбриона в направлении , не совпадающем с его собственным генотипом.
Сравнение внутрипарных различий между однояйцевыми и разнояйцевыми близнецами позволяет судить об относительном значении наследственности и среды в определении свойств человеческого организма. В близнецовых исследованиях особенно важен показатель конкордантности, выражающий (в % ) вероятность обладания данным признаком одним из членов пары ОБ или РБ, если его имеет другой член пары. Если признак детерминирован преимущественно наследственными факторами, то процент конкордантности намного выше у ОБ, чем у РБ. Например, конкордантность по группам крови, к-рые детерминированы только генетически, у ОБ равна 100%. При шизофрении конкордантность у ОБ достигает 67%, в то время как у РБ — 12,1%; при врождённом слабоумии (олигофрении) — 94,5% и 42,6% соответственно. Подобные сравнения проведены в отношении ряда заболеваний. Таким образом, исследования близнецов показывают, что вклад наследственности и среды в развитие самых разнообразных признаков различен и признаки развиваются в результате взаимодействия генотипа и внешней среды. Одни признаки обусловлены преим. генотипом, при формировании др. признаков генотип выступает в качестве предрасполагающего фактора (или фактора, лимитирующего норму реакции организма на действия внешней среды).
Болезни, связанные с мутациями. Геном человека включает несколько миллионов генов, способных к тому же по-разному влиять на развитие признаков. В результате мутаций и перекомбинации генов возникает присущее человеку разнообразие по самым разным признакам. Гены человека мутируют каждый с частотой от 1 на 100 000 до 1 на 10 000 000 гамет на поколение. Распространение мутаций среди больших групп населения изучает популяционная генетика человека, позволяющая составить карты распространения генов, определяющих развитие нормальных признаков и наследственных болезней. Особый интерес для популяционной генетики человека представляют изоляты — группы населения, в к-рых по каким-либо причинам (географич., экономич., социальным, религиозным и др.) браки заключаются чаще между членами группы. Это приводит к повышению частоты кровного родства вступающих в брак, а значит, и вероятности того, что рецессивные гены перейдут в гомозиготное состояние и проявятся, что особенно заметно при малочисленности изолята.
Исследования в области Генетики человека продемонстрировали наличие естественного отбора в человеческих популяциях. Однако отбор у человека приобретает специфические черты: он интенсивно действует только на эмбриональной стадии (например, самопроизвольные аборты — отражение такого отбора). Отбор в человеческом обществе осуществляется посредством дифференциальной брачности и плодовитости, то есть в результате взаимодействия социальных и биологических факторов. Мутационный процесс и отбор обусловливают огромное
разнообразие (полиморфизм) по ряду признаков, присущее человеку, что делает его с биологич. точки зрения необычайно пластичным и приспособленным видом.
Широкое использование в генетике человека цитологических методов способствовало развитию цитогенетики, где основной объект исследования — хромосомы, т. е. структуры клеточного ядра, в к-рых локализованы гены. Установлено (1946), что хромосомный набор в клетках тела человека (соматических) состоит из 46 хромосом, причём женский пол определяется наличием двух Х-хромосом, а мужской — Х-хро-мосомы и У-хромосомы. В зрелых половых клетках находится половинное (гаплоидное) число хромосом. Митоз, мейоз и оплодотворение поддерживают преемственность и постоянство хромосомного набора как в ряду клеточных поколений, так и в поколениях организмов. В результате нарушений указанных процессов могут возникать аномалии хромосомного набора с изменением числа и структуры хромосом, что приводит к возникновении хромосомных болезней, к-рые нередко выражаются в слабоумии, развитии тяжёлых врождённых уродств, аномалий половой дифференцировки или обусловливают самопроизвольные аборты.
История изучения хромосомных болезней берет начало с клинических исследований, проводившихся задолго до описания хромосом человека и открытия хромосомных аномалий .
Хромосомные болезни - болезнь Дауна , синдромы: Тернера , Клайнфелтера , Патау , Эдвардса.
С разработкой метода авторадиографии стала возможной идентификация некоторых индивидуальных хромосом, что способствовало открытию группы хромосомных болезней , связанных со структурными перестройками хромосом . Интенсивное развитие учения о хромосомных болезнях началось в 70х годах 20 в. после разработки методов