Строение, свойства и биологическая роль биотина и тиамина
7. Потребность организма в биотине.
Биотин необходим для человека, животных, растений и большого числа микроорганизмов. Он является фактором роста для многих штаммов, а также многих грибов и бактерий. Однако некоторые дрожжи, грибы и бактерии способны его синтезировать. Потребность в биотине у птиц и животных покрывается за счет синтеза его бактериями желудочно-кишечного тракта. У коров, овец и лошадей, содержащихся на обычном рационе, практически исключена недостаточность биотина. У свиней и птиц недостаточность биотина может создаваться при использовании кормов, бедных витаминами.
Потребность в биотине у человека покрывается за счет синтеза его микрофлорой кишечника, поэтому ее трудно оценить. С известной долей приближения можно считать, что (минимальной ежедневной дозой биотина для животных и человека являются следующие величины (Gyorgy, 1954): для человека— 150—200 мкг, обезьян—20 мкг, крыс— 0,5—3 мкг, цыплят — 0,65—1 мкг, свинец — 100 мкг.
В период беременности и лактации Потребность в биотине у женщин повышается до 250— 300 мкг в день. По другим данным, потребность в биотине значительно ниже и составляет для взрослого человека 30— 40 мкг в сутки.
7.1 Проявление недостаточности биотина
Наиболее подробно недостаточность биотина изучена в опытах на крысах и цыплятах при скармливании рационов с большим содержанием сырого яичного белка. Биотиновый авитаминоз у животных характеризуется прекращением роста и падением веса тела (до 40%), покраснением и шелушением кожи, выпадением шерсти или перьев, образованием красного отечного ободка вокруг глаз в виде «очков», атактической походкой, отеком лапок и типичной позой животного с согбенной (кенгу-руподобной) спиной. Дерматит, который развивается у животных при недостаточности биотина, может быть охарактеризован как себорея десквамационного типа, сходная с той, которая наблюдается у детей. У крыс авитаминоз биотина развивается через 4—5 недель скармливания опытного рациона, а у цыплят первые признаки авитаминоза появляются через 3 недели.
Помимо внешних признаков, биотиновый авитаминоз вызывает глубокие морфологические изменения в тканях и органах, а также нарушения в обмене веществ. Известны изменения в зобной железе, коже и мышцах крыс. Характерны обильный гиперкератоз, акантез и отеки. Разрушенные волосяные стволы перемешаны с гиперкератозными пластинками. Установлено расширение волосяных сумок, отверстия которых закупорены гиперкератозным материалом. В последней фазе развития авитаминоза наблюдается атрофия жира в гиперкератозных пластинках. Недостаток биотина в рационе крыс приводит к уменьшению его содержания в тканях. В печени и мышцах количество витамина снижается в 5 раз, а в мозговой ткани—на 15%. В крови авитаминозных крыс накапливается пировиноградная кислота, развивается ацидоз и снижается концентрация сахара. При этом глюкозурия не наблюдается, но уменьшается содержание редуцирующих Сахаров в печени при нормальном содержании их в мышцах; у животных развивается креа-тинурия.
Человек полностью удовлетворяет свою потребность в биотине за счет синтеза его микрофлорой кишечника, поэтому гиповитаминоз можно получить только в эксперименте. Экспериментальную недостаточность биотина у человека наблюдали Sydenstricker и соавторы (1942) путем включения в диету ежедневно 200 г сырого яичного белка. Через 3 недели появилось шелушение кожи без зуда. На 7—8-й день развилась пепельная бледность кожи и началась атрофия вкусовых сосочков языка. Позднее появились мышечные боли, повышенная чувствительность, болезненные ощущения, вялость, сонливость, тошнота и потеря аппетита. В крови уменьшилось содержание эритроцитов и холестерина. Выделение биотина с мочой снизилось в 7—8 раз против нормы (с 29— 52 до 3,5—7,3 мкг в сутки). Введение 150 мкг биотина уже на 3—4-й день устраняло депрессию, мышечные боли и восстанавливало аппетит.
Таким образом, недостаточность биотина у человека в первую очередь вызывает поражения кожи. Более тяжелые проявления требуют, по-видимому, большей длительности авитаминоза.
8. Профилактическое и лечебное применение биотина.
В настоящее время применение биотина в клинике с лечебной и профилактической целью изучено недостаточно. Большое значение биотина для нормального состояния кожных покровов привело к попыткам лечения биотином ряда кожных заболеваний. Биотин показан при себорейном дерматите у грудных детей, связанном, возможно, с явлениями недостаточности этого витамина. Заболевание излечивается при ежедневном введении 5—10 мкг биотина в течение 4 недель. Отмечен успех при длительном применении биотином в тех случаях дескваматозной эритродермии, когда недостаточность биотина была в числе причин заболевания. Лечебная доза биотина составляет 150—300 мкг в сутки; вводится он-парентерально.
Г. И. Бежанов в 1966 г. сообщил о применении биотина в комплексной терапии псориаза. Наблюдения, проведенные за большой группой больных, показали, что биотин проявлял противозудный эффект, а сочетание биотина с фумаратом, витаминами группы В и бальнеотерапией потенцированный и более быстрый клинический эффект. В процессе лечения у значительного большинства больных рассасывался инфильтрат, уменьшалось или полностью прекращалось шелушение. Автор рекомендует применять биотин в комплексном лечении псориаза.
В последние годы появился ряд сообщений о целесообразности применения фармакологических доз биотина п комплексной терапии атеросклероза и гипертонической болезни.. Эти данные представляют особый интерес в связи с участием биотина в синтезе холестерина.
О. К. Докусова и А. Н. Климов в 1967 г. сообщили о предотвращении биотином экспериментального атеросклероза у кроликов при скармливании больших доз холестерина. Введение биотина в количестве 400 мкг в день предупреждало развитие атеросклероза. Содержание холестерина, β -липопротеидов и фосфолипидов в стенке аорты животных, получавших холестерин и биотин, не отличалось от содержания этих компонентов в аорте здоровых кроликов, тогда как в аорте животных, получавших холестерин без биотина, содержание холестерина и β-липопро-теидов было резко повышено. Авторы считают, что снижение содержания холестерина вызвано окислением его в печени. В настоящее время известно, что пропионат является основным трехуглеродным фрагментом, отщепляющимся от боковой цепи холестерина на первых этапах окисления холестерина в желчные кислоты. Можно предположить, что стимуляция окисления холестерина биотином связана с активацией окисления пропионовой кислоты (через образование янтарной кислоты путем кар-боксилирования пропионовой кислоты), поскольку пропионил-КоА-кар-боксилаза является биотинсодержащим ферментом.
В. Д. Устиловский и др. (1967) сообщил, что после 7-дневного введения внутрь фармакологических доз биотина у больных атеросклерозом, отмечалось статистически достоверное снижение содержания общего, холестерина и β -липопротеидов в крови, тогда как у здоровых людей биотин не влиял на изучаемые показатели. У больных атеросклерозом и гипертонической болезнью применение фармакологических доз биотина приводит к значительному снижению выведения с мочой тиамина и аскорбиновой кислоты (М. А. Лис, 1967; Д. П. Калкун, 1967).
Таким образом, биотин способствует усвоению этих витаминов в организме больных. Учитывая благоприятное влияние биотина на ряд показателей липидного обмена у больных атеросклерозом и гипертонической болезнью, а также повышение усвоения тиамина и аскорбиновой кислоты, авторы рекомендуют применять биотин при этих заболеваниях в дозе 1 мг в день внутрь в комплексной терапии,
С возрастом в крови людей снижается содержание пантотеновой кислоты, витамина В6 и биотина (В. И. Титов, 1966). У больных гипертонией и атеросклерозом в возрасте 80—88 лет содержание биотина было в 2,4 раза меньше, чем у здоровых молодых людей. Установлено снижение содержания биотина в крови больных, жаловавшихся на слабость, недомогание и легкую утомляемость. Автор рекомендует применять пантотеновую кислоту, витамин В6 и биотин при преждевременной старости для устранения явлений гиповитаминоза и связанного с ним нарушением обмена веществ. Некоторыми исследователями обнаружено высокое содержание биотина в тканях ряда раковых опухолей, что привело к попыткам воздействовать на развитие рака путем вызывания биотиновой недостаточности. Однако эти попытки не дали положительных результатов.
Таким образом, сейчас накапливаются данные, позволяющие рекомендовать применение биотина при некоторых болезнях кожи, нарушениях жирового обмена и сердечно-сосудистых заболеваниях. Однако для более широкого использования биотина в клинике необходимо дальнейшее изучение как его физиологического действия, так и показаний к лечебному применению.
Тиамин
Исторические сведения
Первые упоминания о заболевании (какке, бери-бери), известном сейчас как проявление недостаточности тиамина, встречаются в древних медицинских трактатах, дошедших до нас из Китая, Индии, Японии (Bicknell, Prescott, 1953; Inouye, Katsura, 1965). К концу прошлого столетия клинически уже различали несколько форм этой патологии, но только Takaki (1887) связал заболевание с какой-то, как он тогда полагал, недостаточностью азотсодержащих веществ в пищевом рационе. Более определенные представления были у голландского врача С. Eijkman (1893—1896), обнаружившего в рисовых отрубях и в некоторых бобовых растениях неизвестные тогда факторы, предупреждавшие развитие или излечивавшие бери-бери. Очисткой этих веществ занимались затем Funk (1924), впервые предложивший сам термин «витамин», и ряд других исследователей (Wuest, 1962). Извлеченное из естественных источников активное вещество только в 1932 г. было охарактеризовано общей эмпирической формулой, а затем (1936) успешно синтезировано. Еще в 1932 г. высказывалось предположение о роли витамина в одном из конкретных процессов обмена веществ—декарбоксилировании пировиноградной кислоты, но лишь в 1937 г. (Lohman, Schuster) стала известна коферментная форма витамина—тиаминдифос-фат (ТДФ). Коферментные функции ТДФ в системе декарбоксилирования ct-кето-кислот долгое время представлялись почти единственными биохимическими механизмами реализации биологической активности витамина, однако уже в 1953 г. круг ферментов, зависящих от присутствия ТДФ, был расширен за счет транскетолазы, а совсем недавно и специфической декарбоксилазы γ-окси-α-кетоглютаровой кислоты. Нет оснований думать, что перечисленным исчерпывается перспектива дальнейшего изучения витамина, так как эксперименты на животных, данные, получаемые в клинике при лечебном применении витамина, анализ фактов, иллюстрирующих известную нейро- и кардиотропность тиамина, с несомненностью указывает на наличие еще каких-то специфических связей витамина с другими биохимическими и физиологическими механизмами (В. Б. Спиричев, 1966; Ю. М. Островский, 1971).
2. Химические и физические свойства витамина В1
Тиамин (В. М. Березовский, 1959; В. А. Девятнин, 1964), или 4-метил-5-β-оксиэтил-N- (2-метил-4-амино-5-метилпиримидил) -тиазолий, получается синтетически обычно в виде хлористо-или бромистоводородной соли:
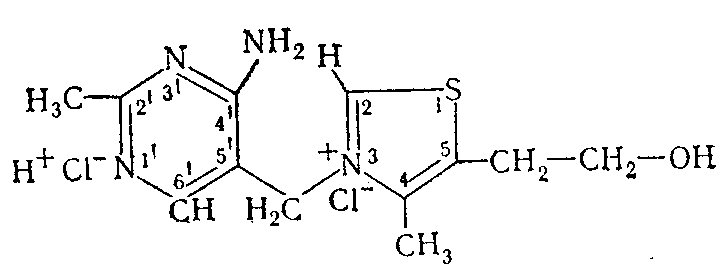
-Рйаминхлорид (М-337,27) кристаллизуется с Ѕ Н2О в бесцветных моноклинических иглах, плавится при 233—234° (с разложением). В нейтральной среде его спектр поглощения имеет два максимума — 235 и 267 нм, а при рН 6,5 Один — 245—247 нм. Витамин хорошо растворяется в вода и уксусной кислоте, несколько хуже в этиловом и метиловом спиртах и нерастворим в хлороформе, эфире, бензоле, ацетоне. Из водных растворов тиамин может быть осажден фосфорно-вольфра-мовой или пикриновой кислотой. В щелочной среде тиамин подвергается многочисленным превращениям (Metzler, 1960), которые, в зависимости от природы добавленного окислителя, могут завершаться образованием тиаминдисульфида (X) или тиохрома (IX).
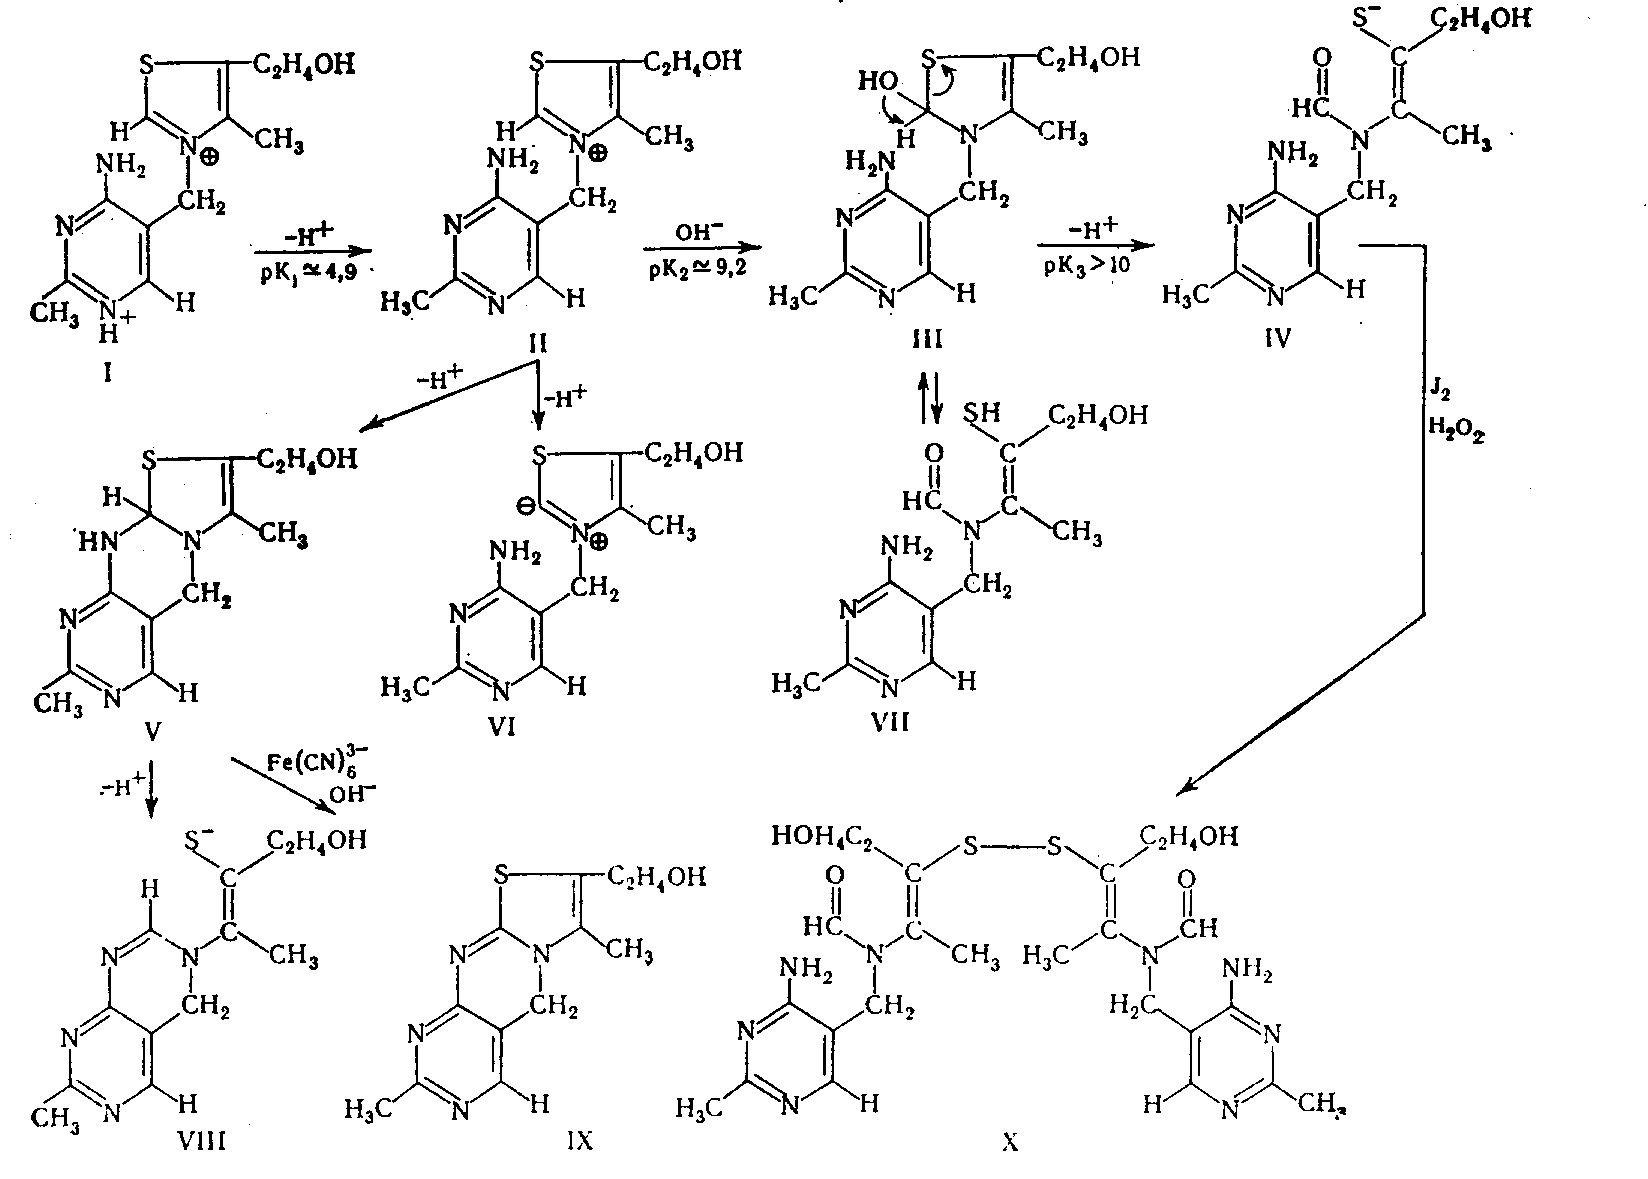
В кислой среде витамин разлагается только при длительном нагревании, образуя 5-гидрокси-метилпиримидин, муравьиную кислоту, 5-аминометилпиримидин, тиазоловый компонент витамина и З-ацетил-3-меркапто-1-пропанол. Среди продуктов распада витамина в щелочной среде идентифицированы тиотиамин, сероводород, пиримидодиазепин и др. Получены также сульфат и мононитрат витамина. Известны соли тиамина с нафталенсульфоновой, арилсульфоновой, цетилсерной и эфиры с уксусной, пропионовой, масляной, бензойной и другими кислотами.
Особое значение имеют эфиры тиамина с фосфорной кислотой, в частности ТДФ, являющийся коферментной формой витамина. Получены (Fragner, 1965; Schellenberger, 1967) гомологи тиамина путем различных замещений у второго (этил-, бутил-, оксиметил-, оксиэтил-, фенил-, оксифенил-, бензил-, тиоалкил-), четвертого (окситиамин) и шестого (метил-, этил) атомов углерода пиримидина метилированием аминогруппьь, замещением тиазоловогоинхла на пиридиновой (пиритиамин), имидозоловый или оксазфювый, модификациями заместителей у пятого углерода тиазола (метил-, оксиметил-, этил-, хлорэтил-, оксипропил- и др.). Отдельную большую группу соединений витамина составляют S-алкильные и дисульфидные производные (Matsukawa e. а., 1970). Среди последних наибольшее распространение как витаминный препарат получил тиаминпропилдисульфид (ТПДС).
3. Распространение витамина В1, в природе.
Тиамин распространен повсеместно и обнаруживается у разных представителей живой природы (Р. В. Чаговец и др., 1968). Как правило, количество его в растениях и микроорганизмах достигает величин значительно более высоких, чем у животных. Кроме того, в первом случае витамин представлен преимущественно свободной, а во втором — фосфорилированной формой. Содержание тиамина в основных продуктах питания колеблется в довольно широких пределах в зависимости от места и способа получения исходного сырья, характера технологической обработки полупродуктов и т. п. Величины, приводимые по этому поводу в литературе (Ф. Е. Будагян, 1961; В. В. Ефремов, 1969; П. И. Шилов, Т. Н. Яковлев, 1964), характеризуют, как правило, уровень витамина до кулинарной обработки, которая сама по себе значительно разрушает тиамин. В среднем можно читать, что обычное приготовление пищи разрушает около 30% витамина. Некоторые виды обработки (высокая температура, повышенное давление и наличие больших количеств глюкозы), разрушают до 704-90% витамина, а консервация продуктов путем обработки их сульфитом может полностью инактивировать витамин В злаковых семенах других растений тиамин, подобно большинству водорастворимых витаминов, содержится в оболочке и зародыше. Переработка растительного сырья (удаление отрубей) всегда сопровождается резким снижением уровня витамина в полученном продукте. Шлифованный рис, например, совсем не содержит витамина.
Содержание тиамина в некоторых продуктах питания (В. В. Ефремов, 1960)
|
Продукт |
Содержание тиамина в мкг % |
Продукт |
Содержание тиамина в мкг % |
|
Пшеница |
0,45 |
Томаты |
0,06 |
|
Рожь |
0,41 |
Говядина |
0,10 |
|
Горох |
0,72 |
Баранина |
0,17 |
|
Фасоль |
0,54 |
Свинина |
0,25 |
|
Kpупa овсяная |
0,50 |
Телятина |
0,23 |
|
>>гречневая |
0,51 |
Ветчина |
0,96 |
|
>> манная |
0,10 |
Куры |
0,15 |
|
Рис шлифованный |
0,00 |
Яйца куриные |
0,16 |
|
Макароны |
следы |
Рыба свежая |
0,08 |
|
Мука пшеничная |
0,2—0,45 |
Молоко коровье |
0,05 |
|
>> ржаная |
0,33 |
Фрукты разные |
0,02—0,08 |
|
Хлеб пшеничный |
0,10—0,20 |
Дрожжи пивные сухие |
5,0 |
|
>>ржаной |
0,17 |
Орехи грецкие |
0,48 |
|
Картофель |
0,09 |
» земляные |
0,84 |
|
Капуста белокочанная |
0,08 |
4. Обмен тиамина в организме
Витамин поступает с пищей в свободном, эстерифицированном и частично связанном виде. Под влиянием пищеварительных ферментов происходит почти количественное его превращение в свободный тиамин, который всасывается из тонкого кишечника. Значительная часть поступившего в кровь тиамина быстро фосфорилируется в печени, часть его в виде свободного тиамина поступает в общий кровоток и распределяется по другим тканям, а часть снова выделяется в желудочнокишечный тракт вместе с желчью и экскретами пищеварительных желез, обеспечивая постоянную рециркуляцию витамина и постепенное равномерное усвоение его тканями. Почки активно экскретируют витамин в мочу. У взрослого человека за сутки выделяется от 100 до 600 мкг тиамина.. Введение повышенных количеств витамина с пищей или парентерально увеличивает выделение витамина с мочой, но по мере повышения доз пропорциональность постепенно исчезает и в моче наряду с тиамином начинают в возрастающих количествах появляться продукты его распада, которых при введении витамина свыше 10 мг на человека может быть до 40—50% исходной дозы (А. В. Труфанов, 1959). Опыты с меченым тиамином (А. Я. Розанов, 1960) показали, что наряду с неизмененным витамином в моче обнаруживается некоторое количество тиохрома, ТДС, пиримидиновый, тиалозовый компоненты и различные углерод- и серусодержащие осколки, в том числе меченые сульфаты.
Таким образом, разрушение тиамина в тканях животных и человека происходит достаточно интенсивно, но до настоящего времени не установлены реакции, через которые этот процесс осуществляется. Попытки обнаружить в животных тканях ферменты, специфически разрушающие тиамин, пока не дали убедительных результатов (см. ниже), хотя имеются отдельные сообщения по этому вопросу (Somogyi, 1966). Суммарное содержание тиамина во всем организме человека, нормально обеспеченного витамином, составляет примерно 30 мг, причем в цельной крови его находится 3—16 мкг%, а в других тканях (Williams е. а., 1950) значительно больше: в сердце — 360, печени — 220, в мозге — 160, легких — 150, почках — 280, мышцах — 120, надпочечнике — 160, желудке — 56, тонком кишечнике — 55, толстом кишечнике — 100, яичнике — 61, яичках — 80, коже — 52 мкг%. В плазме крови обнаруживается преимущественно свободный тиамин (0,1— 0,6 мкг%; Ю. М. Островский, 1957), а в эритроцитах (2,1 мкг на 1011 клеток) и лейкоцитах (340 мкг на 1011 клеток) — фосфорилированный.
Свободный тиамин в норме легко определяется в кишечнике и почках, что может быть связано и с недостатками чисто методического порядка, так как эти ткани обладают исключительно высокой фосфатазной активностью и к моменту взятия материала на исследование уже может происходить частичное дефосфорилирование эфиров витамина. С другой стороны, эти же механизмы могут играть определенную роль в удалении витамина из крови в мочу или кал. Количество витамина в последнем у человека составляет примерно 0,4—1 мкг и вряд ли связано в какой-то заметной степени с биосинтезом витамина кишечной микрофлорой.
Некоторое представление о динамике обмена тканевых запасов витамина дают опыты, проведенные S35-тиамином (Ю. М. Островский, 1971). Обновление тиамина происходит в разных тканях с различной скоростью и практически полная замена нерадиоактивного витамина на радиоактивный (вводимый ежедневно) осуществляется к 8-му дню опыта лишь в печени, почках, селезенке и скелетных мышцах. В сердце, поджелудочной железе ткани мозга к указанному сроку процесс этот не завершается. Вторая фаза опыта (авитаминозный режим) позволяет выявить ряд интересных закономерностей в отношении расходования эндогенных запасов витамина различными тканями. Немедленно и с наибольшей скоростью теряется метка тканью печени и поджелудочной железы. Равномерно с первого дня лишения животных меченого тиамина падает радиоактивность в селезенке, скелетных мышцах, почке. Практически на одном и том же уровне остается радиоактивность через сутки после лишения животных тиамина в ткани сердца и очень медленно теряется метка из мозга. По-видимому, в 1-й день авитаминозного режима миокард еще ассимилирует из крови необходимое количество тиамина, поступившего в нее туда из других органов. Уровень метки в крови (рис. 6) остается вначале нормальным и заметно падает лишь к 15-му дню опыта (7-й день авитаминоза).
Если в конце авитаминозного режима мышам снова начать вводить S35-тиамин, то никакого усиленного потребления метки тканями не наблюдается, т.е. предварительная девитаминизация не создавала условий, благоприятствующих (последующей ассимиляции витамина. Можно считать, что связывании витамина определяется, по-видимому, не дефицитом соответствующих депо, а какими-то лимитированными промежуточными реакциями специфической или неспецифической протеидизации витамина. Интерес представляет и некоторое замедление ассимиляции повторно вводимого витамина в ткани мозга, сердца и печени. Возможно, это обусловлено дефицитом соответствующих апоферментов или межтканевой конструкцией в захвате меченого тиамина из крови. Одновременно исследованная у тех же животных активность транскетолазы тканей только для крови коррелировала в какой-то мере со степенью девитаминизации всего организма. В других тканях между содержанием витамина и активностью фермента в длительные промежутки времени прямая связь не выявляется. Только в условиях, когда количество витамина уменьшается в несколько раз, такая связь начинает проявляться. Нечто аналогичное для соотношений между уровнем тиамина и активностью ДФ-содержащих ферментов недавно отмечено и другими авторами (Dreyfus, Hauser, 1965). Наиболее существенный вывод из представленных результатов состоит в утверждении, что количество витамина, находящегося в тканях, во много раз выше того уровня, который необходим для обеспечения специфических ферментных систем ТДФ. По-видимому, значительные количества витамина присутствуют в тканях, особенно в сердце и печени, в виде его производных, осуществляющих какие-то другие некоферментные функции.
4.1 Образование тиаминфосфатов (ТФ). За период с 1937 по 1943 г. показано, что фосфорилирование тиамина активно происходит в дрожжах и различных животных тканях. Уже тогда выяснилось, что реакция идет за счет АТФ по общему уравнению: тиамин + АТФ—> ТДФ + АМФ.
В 1952 г. эти закономерности были подтверждены на частично очищенном препарате тиаминкиназы из растворимой фракции гомогената печени. Оптимум рН для образования. ТДФ этим ферментным препаратом лежал, в пределах 6,8—6,9. Фосфорилирование тиамина подавлялось АМФ и АДФ. В присутствии АМФ образовывались лишь следы, а в присутствии АДФ — весьма незначительные количества ТДФ. Если в среду вместо тиамина вносился ТМФ, то образование ТДФ тормозилось. Очищенный примерно в 600 раз препарат тиамикиназы был применен (Forsander, 1956) для изучения Механизма фосфорилирования витамина с использованием меченой γ-Р32-АТФ. После выделения ТДФ Forsander пришел к выводу, что и вэтой системе тиамин получает от АТФ целиком пирофосфатную группировку.
Серия работ по изучению тиаминкиназы, выделенной из дрожжей и животных тканей, недавно проведена в Японии. На достаточно очищенных препаратах (более чем в 100 раз), обладавших слабой АТФ-азной активностью и не содержащих аденилаткиназы и нуклеозиддифосфокиназы, установлено, что ионы марганца, магния - кобальта активировали, а кальция, никеля, рубидия и железа — в широком диапазоне концентраций не угнетали фермент. На этом же препарате фермента показаны возможность фосфорилирования тиамина за счет других нуклеотидтрифосфатов (ГТФ, ИТФ, УТФ и др.) но то, что основным продуктом реакции является ТДФ и небольшое количество ТМФ. Применением Р32-АТФ, как и в исследованиях предыдущих авторов, подтвержден механизм переноса на тиамин сразу пирофосфатной группировки.
Однако результаты, полученные in vitro, не нашли полного подтверждения при изучении фосфорилирования тиамина на целых организмах и в опытах с митохондриями. С одной стороны, как будто подтверждалось предположение о пирофосфорилировании: после внутривенного введения тиамина уже через 30—60 минут в крови животных обнаруживались меченные по фосфору ТДФ и ТТФ, но не ТМФ. С другой стороны, после внутривенного введения ТМФ кокарбоксилазная и транскетолазная (Н. К. Лукашик, 1964) активность крови нарастала быстрее, чем после введения свободного тиамина. Некоторые микроорганизмы легче образуют ТДФ из ТМФ, чем из свободного витамина, а тиаминкиназа, найденная ранее в печени, не обнаружена в митохонд-риях почек, в которых фосфорилирование тиамина идет другим путем. Механизм фосфорилирования витамина с участием только АТФ не всегда укладывается в простую схему переноса пирофосфатной группировки в целом хотя бы потому, что наряду с ТДФ в различном биологическом материале обнаруживаются в значительных количествах и другие ТФ, в том числе даже Т-полифосфаты.
Ряд исследований последних лет касается вопроса о локализаций систем, ответственных за фосфорилирование тиамина. Печень уже через час после введения тиамина захватывает 33—40% витамина, накапливая различные его фосфорные эфиры. По данным А. А. Рыбиной (1959), происходит быстрое фосфорилирование меченого витамина и в других органах (в порядке убывающей активности): печень, почки, сердце, семенники, головной мозг. При этом радиоактивность фосфорных эфиров тиамина убывает в ряду: ТТФ, ТДФ, ТМФ. По данным японских авторов, фосфорилирование тиамина идет активно в митохондриях (Shima-zono, 1965), микросомах и гиалоплазме.
Из изложенных выше фактов нетрудно сделать вывод, что общая -интенсивность процессов эстерификции витамина в организме или в отдельных тканях должна в значительной степени коррелировать с активностью процессов, поставляющих АТФ. Первые экспериментальные наблюдения в этом плане, проведенные ня гомогенатах печени или клеточных элементах крови, получили в дальнейшем полное подтверждение. Все яды дыхания и гликолиза или соединения, конкурирующие с Т за АТФ, как правило, снижают уровень ТДФ в крови и в тканях.
4.2 Роль отдельных группировок в молекуле тиамина для его связывания в тканях.
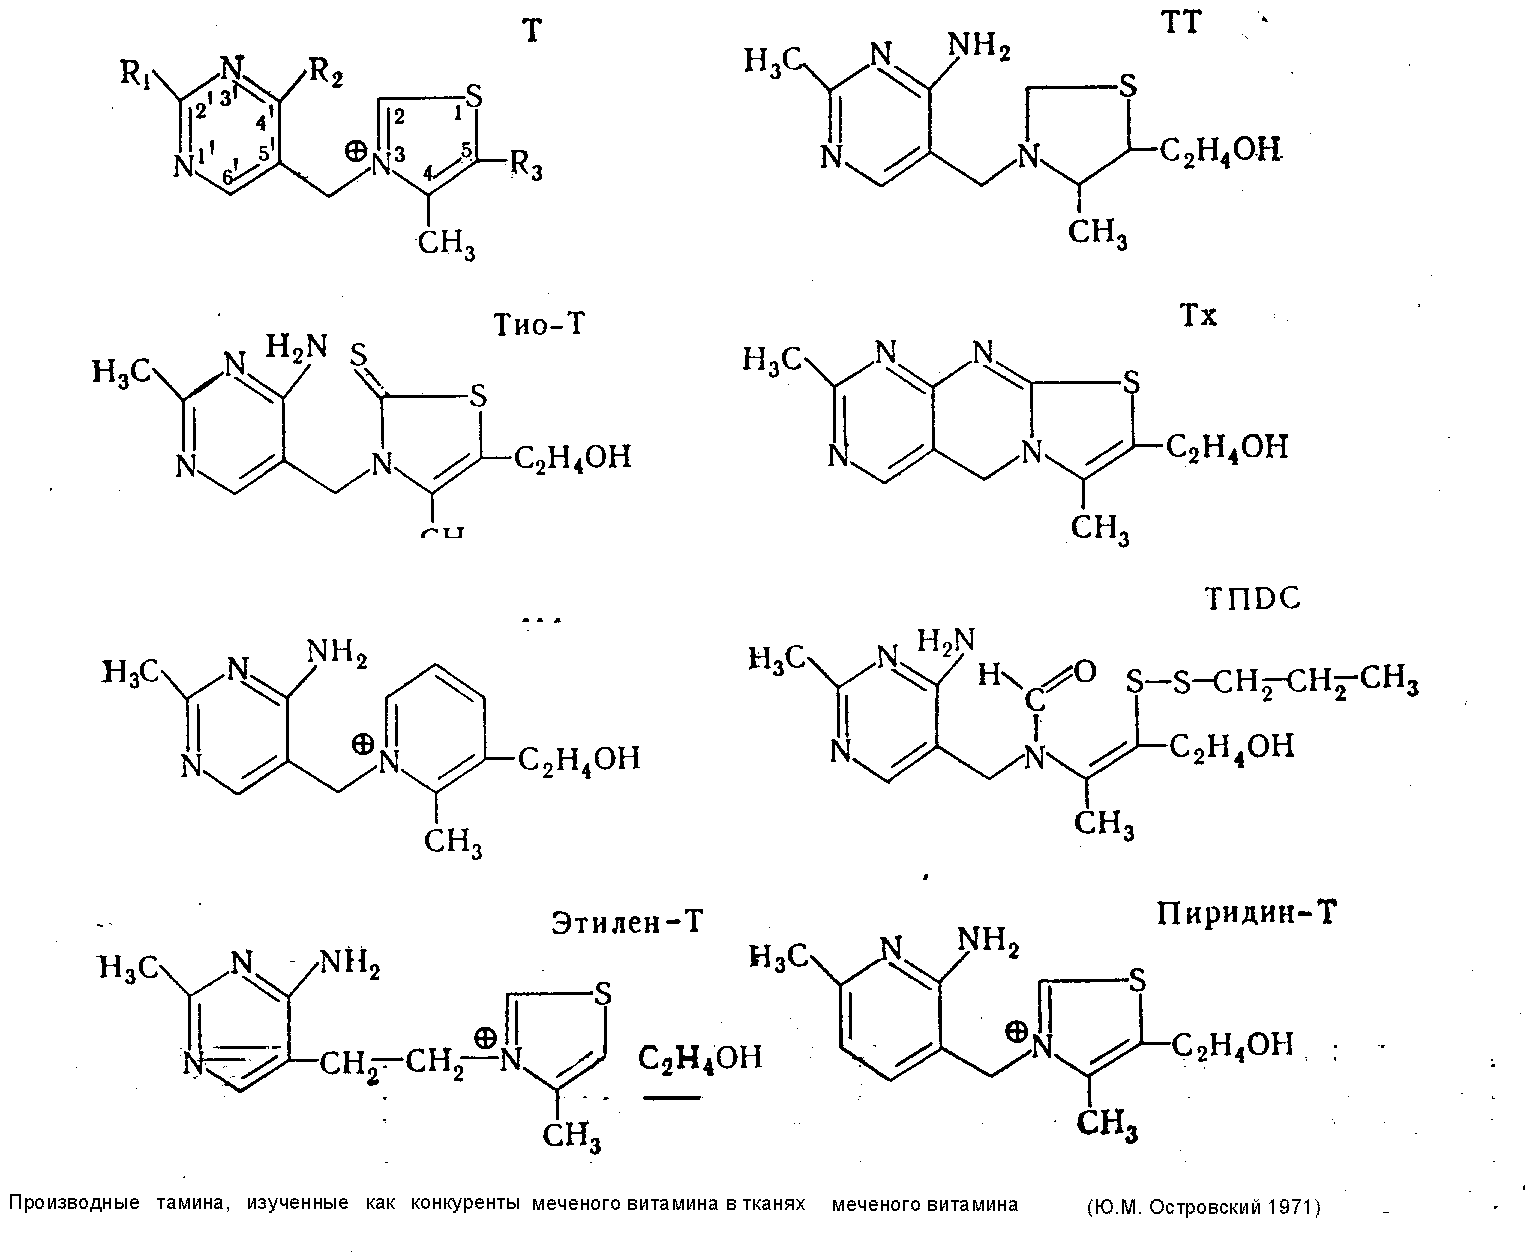
За последние годы синтезировано более десятка новых производных тиамина (смешанные дисульфиды, О-бензольные производные и др.), широко внедряемых в лечебную и профилактическую практику. Преимущества новых витаминных препаратов, как правило, выявлялись чисто эмпирически в связи с тем, что до настоящего времени мы не располагаем достаточными сведениями о молекулярных механизмах ассимиляции тиамина, о характере его взаимодействия со специфическими (ферменты) и неспецифическими (осуществляющими транспорт витамина) белками. Необходимость точных представлений в этом вопросе диктуется и широкими перспективами использования антивитаминов тиамина (ампрол, хлоротиамин, деокситиамин) для лечебных целей (см. ниже).
Работы по синтезу новых производных тиамина с заранее заданными физико-химическими свойствами, обусловливающими возможности целенаправленного воздействия на обменные процессы в организме, немыслимы без конкретных представлений о роли отдельных групп атомов витамина и его производных в этой области. Значение пирофосфатного радикала для специфической потеидизации ТДФ в составе соответствующих ферментов уже отмечалось выше. В последние годы становится все более очевидным участие тиамина в других реакциях, не имеющих ничего общего с коферменными функциями витамина. Разнообразию активных группировок в молекуле тиамина соответствует каждый раз особая форма- претеидизации, блокирующая одни и обнажающая одновременно другие, важные для соответствующей функции, участки молекулы витамина (Ю. М. Островский, 1971). Действительно, первый тип протеидизации (через пирофосфатный радикал) отвечает коферментной функции и оставляет свободными, доступными для субстрата 2-й углерод тиазола и аминогруппу пиримидинового компонента. С другой стороны, очевидно, что участие витамина в окислительно-восстановительных реакциях или в процессах перефосфорилирования должно сочетаться с исключением возможности одновременного функционирования его как кофермента, так как в первом случае необходима деполяризация и раскрытие тиазолового цикла, а во втором — свободное положение фосфорилированного оксиэтильного радикала. Поскольку 80—90% тиамина, присутствующего в тканях, освобождается лишь при кислотном и ферментативном гидролизе, можно считать, что все связанные формы витамина находятся в протеидизированном, т. е. связанном с белками, состоянии.
Представление о значении отдельных участков молекулы тиамина в этом процессе легко получить, определяя степень связывания тканями меченного по сере (S35) витамина и некоторых его производных, лишенных тех или иных активных центров, например аминогруппы — окситиамин (окси-Т), аминогруппы и оксиэтильного радикала — хлорокситиамин (ХОТ), четвертичного азота в тиазоловом цикле тетрагидротиамин (TТ) Некоторые ограничения на интерпретацию данных, полученных таким образом в короткие сроки опыта, накладывают физиологические механизмы, транспорта и экскреции вводимых соединений, в связи с чем дополнительно приходится исследовать также выведение витамина и самих меченых соединений с мочой. С другой стороны, результаты, получаемые в длительные сроки (24 часа), почти полностью соответствуют только представлениям о протеидизированной части витамина, а на основании рассмотрения конкурентных взаимоотношений между различными упомянутыми выше мечеными и другими немечеными производными витамина можно последовательно исключать роль отдельных атомов или группировок в механизмах фиксации тиамина тканями.
4.3 Коферментные функции тиаминдифосфата.
Известно значительное количество различных реакций, катализируемых ТДФ. Однако все их можно свести к нескольким типичным вариантам: простое и окислительное декарбоксидирование -кетокислот, ацилоиновая конденсация, фосфорокластическое расщепление кетосахаров. Ферментные системы, принимающие участие в этих реакциях по-видимому, едины в основных принципах своего действия; различна лишь последующая судьба «активного альдегидного осколка», возникающего на первых этапах процесса. Успехи, достигнутые в течение последних лет в изучении превращений -кетокислот (С. Е. Северин, 1964; А. А. Глемжа, 1964), позволили четко представить как роль собственно декарбоксилирующего фрагмента полиферментного комплекса дегидрогеназы, содержащего ТДФ, так и последовательность всех других, связанных с ним реакций:
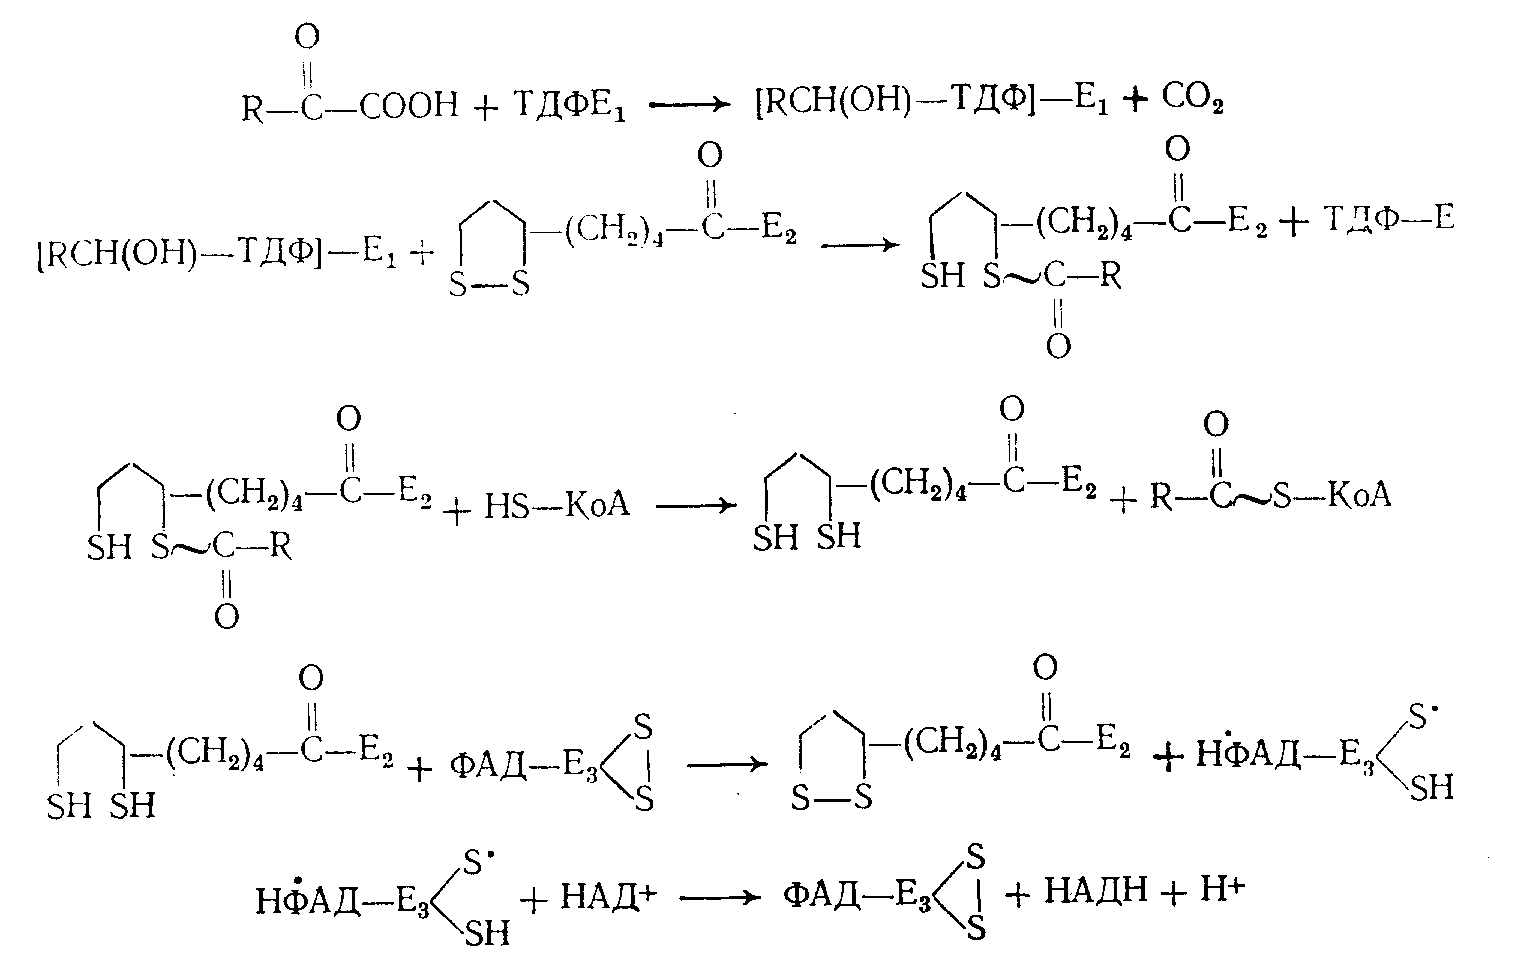
В