Энергетический обмен головного мозга
Важным является и то, что в митохондриях головного мозга при самых разнообразных воздействиях сохраняется доминирование пируватдегидрогеназной реакции над остальными путями метаболизма пирувата, несмотря на то, что скорость отдельных реакций обмена субстрата может меняться. Например, было показано явное преобладание окислительного декарбоксилирования пировиноградной кислоты при таких экстремальных состояниях, резко нарушающих энергетический баланс, как гипоксия, разобщение окислительного фосфорилирования, тяжелая форма гипертиреоза.
Напротив, в митохондриях печени, сердечной и скелетных мышц, почках и других органах при изменении функционального состояния, при метаболических сдвигах разной природы преобладающим может стать любой из основных путей метаболизма пирувата. Например, в митохондриях печени в условиях интенсивного глюконеогенеза или при голодании скорость реакции карбоксилирования пирувата в 5–10 раз и более превышает скорость ПДГ-реакции.
Таким образом, окислительное декарбоксилирование пировиноградной кислоты, осуществляющее ввод этого метаболита в ЦТК, играет в головном мозге особо важную роль.
Большое значение ПДГ-реакции для метаболизма нервной ткани подтверждается также более высокой по сравнению с другими тканями чувствительностью ее к недостатку тиамина. Нарушение образования тиаминпирофосфата при В у-авитаминозе вызывает значительное угнетение окислительного декарбоксилирования пирувата, особенно резко проявляющееся в головном мозге и приводящее к нарушениям его функциональной активности.
Регуляция активности сложного мультиэнзимного пируватдегидрогеназного комплекса осуществляется несколькими путями. В настоящее время наиболее детально исследован механизм ковалентной химической модификации фермента. Этот механизм включает АТФ-зависимое фосфорилирование с помощью ПДГ-киназы, приводящее к образованию неактивного комплекса, и дефосфорилирование, катализируемое специфической фосфатазой, которое приводит, напротив, к образованию активной формы комплекса. Реакциям фосфорилирования-дефосфорилирования подвергается лишь один из компонентов ПДГкомплекса, а именно пируватдекарбоксилаза.
Фосфатазная реакция, т.е. активирование ПДГ-комплекса, стимулируется высокими концентрациями ионов Mg+, низкими – Са». Реакция фосфорилирования, т.е. инактинация ПДГ-комплекса, усиливается в присутствии высоких концентраций АТФ и ионов магния, но тормозится при возрастании уровня АДФ, который конкурирует в реакции с АТФ, т.е. важным фактором в регуляции взаимопревращений активной инеактивной форм ЦДХ-комплекса является внутримитохондриальное отношение АТФ/АДФ.
Во многих тканях это отношение сильно зависит от функционального состояния и прежде всего от типа преимущественного субстрата окисления. Например, в печени, почках, сердечной мышце при усилении окисления свободных жирных кислот резко возрастает уровень длинноцепочечных ацил КоА. Эти соединения нарушают перенос АТФ и АДФ через митохондриалъные мембраны с помощью адениннуклеотидтранслоказы, что приводит к повышению интрамитохондриального отношения АТФ/АДФ. В свою очередь, это способствует образованию неактивной фосфорилированной формы ПДГ-комплекса. Так, по данным П. Виланда и соавторов, после 24-часового голодания доля активной формы ПДГ в 2,5–5 раз снижалась во всех тканях крыс, кроме головного мозга, где она оставалась практически неизменной.
Большое значение ПДГ-реакции в обеспечении энергетического обмена в мозге, а также то, что максимальная активность ПДГ-комплекса лишь немногим выше средней скорости потока пирувата в мозге взрослого интактного животного, указывает на существование в нервной ткани тонкой и эффективной системы регуляции ПДГ-комплекса. Установлено, что доля активной дефосфорилированной формы ПДГ в мозге значительно выше, чем во многих других тканях: в мозге активная форма составляет около 70% от общей активности фермента в ткани; в сердие – 40–60, в печени, жировой ткани – около 20%.
Недавно высказана гипотеза о том, что регуляция фосфорилирования ПДГ-комплекса играет существенную роль в модуляции пластичности синапсов, поскольку обнаружена тесная корреляция между степенью фосфорилирования ПДГ и процессами тренировки и обучения.
Значительный вклад в регуляцию скорости окислительного декарбоксилирования пирувата вносят изменения концентрации конечных продуктов реакции – ацетил-КоА и НАДН, накопление которых в митохондриях ведет к торможению ПДГ-реакции Следует отметить, что действие этих факторов включает как непосредственное ингибирование фермента продуктом реакции, так и влияние НАДН и ацетил-КоА на взаимопревращения Фосбооилированной и дефосфорилированной форм ПДГ.
АцетилКоА и НАДН являются конкурентными ингибиторами фермента по отношению к свободному КоА или НАД+ соответственно. Наряду с этим оба метаболита служат положительными эффекторами ПДГ-киназы, катализирующей переход фермента в неактивную фосфорилированную форму.
Относительная роль этих факторов в регуляции ПДГ-реак-ции в мозге неодинакова. Концентрация НАДН, а точнее – отношение НАД+/НАДН является весьма лабильной величиной, особенно в митохондриях тканей с высокой интенсивностью окислительно-восстановительных процессов. Поэтому этот фактор участвует в контролировании скорости ПДГ-реакции как в головном мозге, так и в других тканях. Напротив, регуляторная роль другого продукта реакции – ацетилКоА – в головном мозге меньше, чем в других тканях, которые способны к окислению больших количеств свободных жирных кислот и, следовательно, к значительным изменениям в концентрации ацетилКоА.
Таким образом, в митохондриях головного мозга доминирующий путь метаболизма пировиноградной кислоты – окислительное декарбоксилирование – контролируются главным образом изменением отношения АТФ/АДФ и НАД+/НАДН в митохондриях. Опыты с 2С-пируватом показали, что скорость использования образующегося в ПДГ-реакции ацетилКоА для синтеза цитрата в головном мозге в 3,0–4,5 раза выше, чем в печени, почках и сердце.
Свободные жирные кислоты и кетоновые тела как источники ацетилКоА в мозге. Образование ацетилКоА для цитратсинтазной реакции может происходить также в реакциях окисления свободных жирных кислот или кетоновых тел, а также в ходе метаболических превращений ряда аминокислот. Однако оба эти пути пополнения фондов ацетилКоА, имеющие большое значение для многих тканей, в мозге взрослых животных играют весьма скромную роль.
Например, в экспериментах с С глюкозой и, С пальмитиновой кислотой, выполненных на срезах мозга кролика, установлено, что до С02 и Н20 окисляется 385±15 нмоль глюкозы и лишь 0,02–0.04 нмоль жирной кислоты в расчете на I г ткани за 1 ч. Такая колоссальная разница в скорости утилизации двух энергетических субстратов объясняется низкой активностью ферментов, лимитирующих окисление свободные жирных кислот в мозге взрослых животных, в первую очередь – низкой активностью апилКоА-синтазы.
Напротив, в головном мозге растущих животных свободные жирные кислоты и особенно кетоновые тела окисляются гораздо интенсивнее, чем у взрослых. Это обусловлено несколькими факторами. Во-первых, более высокой концентрацией кетоновых тел в крови в неонатальный период, когда животное получает в основном молочную пищу. Во-вторых, с возрастом, по мере формирования гематоэнцефалического барьера, уменьшается скорость поглощения мозгом кетоновых тел из крови. Так, при одинаковой концентрации кетоновых тел в крови артериовенозная разница для мозга 16–20-дневных крысят в 3–4 раза выше, чем у взрослых.
Еще одним важным обстоятельством, обусловливающим более интенсивное использование кетоновых тел мозгом растущих животных, является высокая активность ферментов, лимитирующих скорость этого процесса: 3-р-окси-бутиратдегидрогеназы, КоА-трансферазы р-кислот и ацетоадетил – КоА-тиолазы Активность первых двух энзимов обнаруживается в мозте уже при рождении, достигает максимума к 20–25-му дню, а затем резко снижается. У 20–25-дневных крыс активность этих ферментов в 2–3 раза выше, чем у взрослых животных. Аналогичный характер имеют возрастные изменения активности митохондриальной формы ацетоацетил-КоА-тиолазы. Однако общая активность фермента в нервных клетках наиболее высока у новорожденных животных, а затем постепенно снижается. Ранняя постнатальная индукция «ключевых» ферментов метаболизма кетоновых тел контрастирует со значительно более медленным возрастанием активности лимитирующих ферментов гликолиза, ЦТК, а также пируватдегидрогеназного комплекса. Из-за значительного преобладания активности ацетилКоА-тиолазы над активностью ПДГ в мозге растущих животных ацетилирование свободного TCoA-SH происходит главным образом в тиолазной реакции а у взрослых – в пируватдегидрогеназ-ной.
В головном мозге растущих животных ацетилКоА, образующийся в ходе метаболизма кетоновых тел, расходуется не только на окисление в ЦТК, но в значительной мере идет на процессы биосинтеза специфических липидов мозга. Интенсивное окисление кетоновых тел характерно именно для периода миелинизации, роста аксонов и дендритов и образования функциональных синаптических комплексов.
Использование кетоновых тел в качестве источника ацетилКоА, но уже не для биосинтетических реакций, а для окисления в ЦТК, т.е. в виде энергетических субстратов, возможно и в мозге взрослых животных при ряде экстремальных состояний; в частности, это имеет место при длительном голодании, когда на фоне исчерпания углеводных ресурсов организма резко возрастает концентрация кетоновых тел в крови за счет распада и окисления липидов из жировых депо. Аналогичные ситуации наблюдаются также при тяжелых формах диабета или гипертиреоза. Но даже в этих условиях за счет окисления свободных жирных кислот и кетоновых тел покрывается не более 20% энергетических потребностей мозга.
Аминокислоты как источники ацетилКоА. Реакции превращения свободных аминокислот, ведущие к образованию ацетилКоА, у взрослых животных наиболее интенсивно протекают в печени и почках, где они могут эффективно пополнять пул этого метаболита. В головном мозге роль такого пути образования ацетилКоА весьма незначительна.
Превращения этих аминокислот, а также кетоновых тел в мозге взрослых животных сосредоточены главным образом в «малом» компартменте, где особенно ярко проявляется анаболическая функция ЦТК. Морфологически этот компартмент приурочен к глиальным клеткам. Напротив, катаболическая, энергетическая функция ЦТК наиболее четко проявляется в «большом» компартменте мозга, где интенсивно протекают реакции аэробного окисления глюкозы.
Скорости метаболических потоков для мозга мышей составляют: 1,25 мкмоль субстрата или 0,30 мкмоль субстрата за 1 мин в расчете на 1 г сырой массы ткани для «большого» и «малого» компартментов соответственно. Обмен метаболитов между компартментами осуществляется относительно медленно; скорость потока в данном случае составляет в среднем 0,14 мкмоль субстрата/ мин в расчете на 1 г ткани.
Использование аминокислот в качестве предшественников компонентов ЦТК Свободные аминокислоты, а также аминокислоты, образующиеся при расщеплении белков, могут претерпевать окисление и превращения их в различные компоненты ЦТК Как известно, существует несколько путей вхождения аминокислот в ЦТК, причем относительная роль их в пополнении пула метаболитов UTK различна в разных тканях.
Наиболее интенсивно метаболизм аминокислот протекает в печени, где эти соединения играют значительную роль в энергетическом обмене. В мозге взрослых животных свободные аминокислоты, плохо проникающие через ГЭБ, не могут рассматриваться как важные энергетические источники. Исключение в этом отношении составляют аминокислоты глутаминовой группы. Для головного мозга характерны высокое содержание аминокислот этой группы и значительная активность ферментов их обмена в митохондриях.
Активность аспартатаминотрансферазы в митохондриях мозга взрослых крыс составляет в среднем 30–35 мкмоль субстра-тамин- в расчете на 1 г ткани, что в 7–10 раз превышает активность фермента в мозге новорожденных животных и значительно выше, чем в митохондриях печени. Высокая активность трансамисназ и глутаматдегидрогеназы в митохондриях головного мозга, а также результаты опытов с С-аминокислотами указывают на возможность использования аминокислот этой группы в качестве дополнительного энергетического источника, что особенно важно при различных экстремальных состояниях, когда повышаются энергетические потребности мозга или замедляется поступление в мозг глюкозы.
Таблица 4. Средние данные о содержании аминокислот глутаминовой группы в головном мозге и печени крыс
|
Аминокислоты |
Содержание в целой ткани» мкмоль/г |
Содержание в обогащенных фракциях коры больших полушарий мозга, нмоль/г белка |
||
|
мозг |
печень |
нейроны |
нейроглия |
|
|
Глутаминовая кислота |
7,3–9,5 |
1,5–1,7 |
14,2±2Д |
23,0±2,9 |
|
Глутамин |
3,8–4,7 |
1,8–2,3 |
6,9±1,4 |
4,8±0,6 |
|
Аспарагиновая кислота + аспарагин |
4,8–5,8 |
0,4–0,7 |
6,0±1,5 |
6,3±0,8 |
|
ГАМ К |
1,9–2,4 |
Следы |
3,1 + 1,1 |
4,1±0,4 |
Из других путей метаболизма аминокислот, которые играют относительно небольшую роль в энергетическом метаболизме головного мозга, можно упомянуть превращение аспартата и аспарагина в оксалоацетат, а также аланина и серина – в пируват. Очень невелико и значение аминокислот как предшественников компонентов ЦТК – суклинил-KoA и фумарата.
Итак, основным путем ввода окисляемых субстратов в ЦТК в головном мозге служит образование ацетилКоА в пируватдегидрогеназной реакции. Дополнительным источником для пополнения пула метаболитов ЦТК могут быть аминокислоты глутаминовой группы, в то время как кетоновые тела и свободные жирные кислоты интенсивно окисляются лишь в мозге растущих животных.
Промежуточные компоненты ЦТК для разнообразных синтетических реакций в мозге в отличие от других тканей используются в незначительных количествах. Именно этим объясняется, что интенсивность потока метаболитов через ЦТК в головном мозге прямо пропорциональна потреблению кислорода тканью.
При рассмотрении особенностей регуляции ЦТК в головном мозге прежде всего следует остановить внимание на тех его неравновесных стадиях, которые являются лимитирующими. В табл. 5,5 приведены значения активностей ферментов ЦТК
Таблица 5. Содержание основных компонентов и активность ферментов ЦТК в головном мозге и печени крыс
|
Компоненты ЦТК |
Содержание, мкмоль/г ткани |
Ферменты ЦТК |
Активность ферментов в митохондриях, мкмоль субстрата • мг белка за 1 мин |
||
|
мозг |
печень |
мозг |
печень |
||
|
Ацетил-КоА* |
11,0±0,9 |
4,0–5,0 |
Цитратсинтаза |
8,210,3 |
6,410,3 |
|
Оксалоацетат |
7,4910,35 |
9,01±0,40 |
|||
|
Цитрат |
320±12 |
228±9 |
Аконитаза** |
46,013,1 |
– |
|
Изоцитрат |
27,313,5 |
24,013,0 |
НАД- изоцитратдегидрогеназа |
28,312,2 |
5,610,4 |
|
НАДФ-изоцитратдегидрогеназа |
19,611,5 |
32,012,4 |
|||
|
а – Кетоглутарат |
125±10 |
114±9 |
а – Кетоглутаратдегидрогенеза |
58,913,7 |
64,514,9 |
|
Сукцинат |
791±26 |
804±24 |
Сукцинатдегидрогеназа |
106,0115,7 |
145,2120,1 |
|
Фумарат |
– | – |
Фумараза |
– | – |
|
Малат |
356121 |
420128 |
НАД-малатдегидрогеназа |
407,0135,5 |
385,0140,2 |
содержание основных компонентов ЦТК в головном мозге печени крыс. Видно, что к наиболее медленным этапам, которые могут лимитировать скорость потока субстратов через цикл в мозге, как и в других тканях, относятся реакции синтеза и окисления цитрата.
5.2 Цитратсинтазная реакция и регуляция ее скорости в мозге
Скорость необратимой в физиологических условиях реакции биосинтеза лимонной кислоты находится под контролем нескольких одновременно действующих факторов. В опытах с очищенными ферментативными препаратами найдено, что АТФ является отрицательным аллостерическим модулятором цитратсин-тазы. Эффект нуклеотида обусловлен повышением константы Миха-элиса фермента для ацетилКоА.
Субстраты реакции – ацетилКоА и оксалоацетат также участвуют в регуляции активности цитратсинтазы. На основании сопоставления значений констант Михаэлиса, установленных в опытах на очищенных препаратах ферментов и реально существующих в тканях животных концентраций этих метаболитов, Кребс пришел к выводу, что in vivo основным из этих двух регуляторных факторов является концентрация щавелевоуксусной кислоты.
Таким образом, in vivo скорость цитратсинтазной реакции контролируется главным образом двумя факторами: концентрацией отрицательного аллостерического фактора фермента – АТФ и концентрацией щавелевоуксусной кислоты.
Цитратсинтазная реакция является не только важнейшим этапом ЦТК, но и компонентом системы образования ацетилхолина в холинергических нейронах. Вместе с ПДГ и цитратлиазой она обеспечивает поставку ацетил-КоА для биосинтеза нейротранс-миттера. О большом значении этой функции цитратсинтазы в мозге говорят наблюдения о том, что даже незначительные изменения активности фермента, еще не вызывающие сдвигов в энергетическом обмене, приводят к существенным нарушениям в синтезе ацетилхолина и блокируют холинергическую передачу.
5.3 Изоцитратдегидрогеназные реакции и их регуляция в мозге
Основным путем метаболизма лимонной кислоты является окисление ее в изоцитратдегидрогеназных реакциях после превращения ее под действием аконитазы в изолимонную кислоту. Активность аконитазы значительно превышает активность как цитратсинтазы, так и изоцитратдегидрогеназ и не лимитирует скорость взаимопревращения трикарбоновых кислот. В головном мозге взрослых животных до 98% нитрата подвергается дальнейшему окислению и лишь около 2% расщепляется в цитратлиазной реакции до ацетилКоА и щавелевоуксусной кислоты. В других тканях доля лимонной кислоты, подвергающаяся расшеплению цитратлиазой, может быть в несколько раз выше.
Окисление изолимонной кислоты осуществляется двумя типами изоцитратдегидрогеназ:
1. НАД-зависимым ферментом, который катализирует необратимую реакцию, протекающую исключительно в митохондриях;
2. НАДФ-специфичным ферментом, катализирующим обратимую реакцию как в митохондриях, так и в цитоплазме.
Роль НАД- и НАДФ-зависимых изоцитратдегидрогеназ в окислении изолимонной кислоты далеко не одинаково. В головном мозге основная часть субстрата окисляется по НАД-зависимому пути, поставляющему НАДН непосредственно в дыхательную цепь митохондрий и таким образом тесно связанному с поддержанием энергетического баланса клеток. Напротив, в печени, сердце и других тканях с помощью НАД-зависимой ИЦЦГ окисляется менее 10% изоцитрата, а основная масса субстрата используется в НАДФ-ИЦЦГ реакциях, особенно интенсивно протекающих в цитоплазме, где образующийся НАДФН может быть использован для разнообразных восстановительных биосинтезов.
Интересно, что явное преобладание НАД-зависимого пути окисления изолимонной кислоты в митохондриях характерно лишь для мозга взрослых животных. В то же время у растущих животных в период интенсивного липогенеза, связанного с процессами миелинизации, значительная часть изоцитрата окисляется в НАДФ-ИЦДГ-реакции и может служить источником НАДФН для биосинтеза специфических липидов мозга.
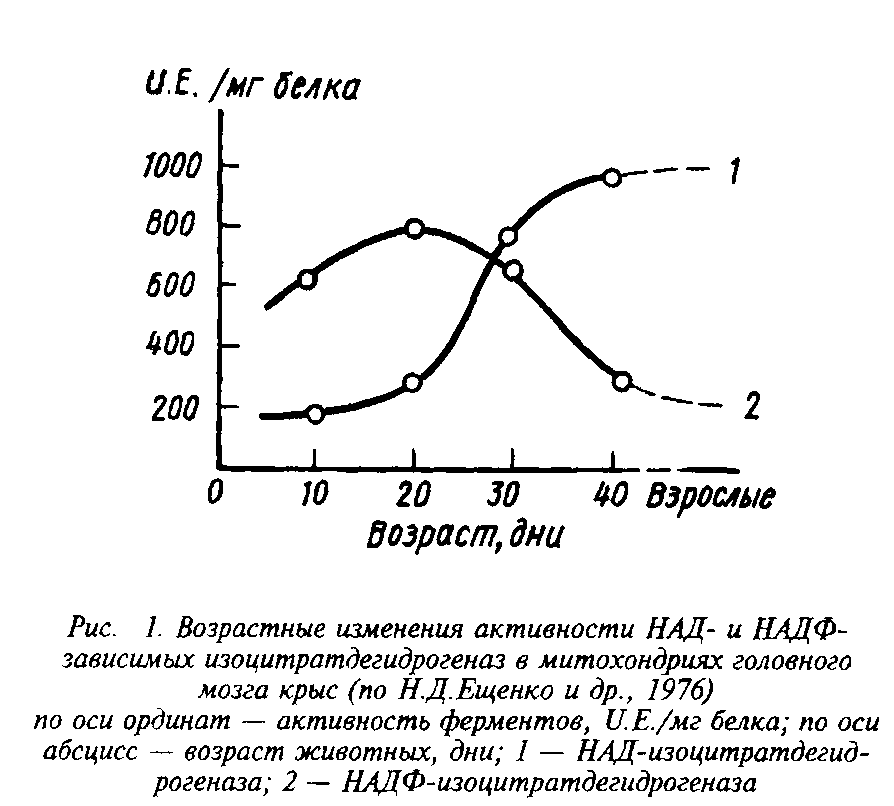
Регуляция скорости окисления изолимонной кислоты осуществляется главным образом за счет изменения активности НАД-специфичной дегидрогеназы.
В отличие от НАДФ-ИЦДГ НАД-зависимый фермент относится к числу регулируемых; положительным аллостерическим фактором служит АДФ, а АТФ, напротив, ингибирует фермент. Эффект АДФ обусловлен конформационными изменениями фермента, в результате чего возрастает в 3–10 раз его сродство к субстрату. Одновременно происходит сдвиг оптимума рН в щелочную сторону, т.е. эффектор стабилизирует НАД-ИЦДГ, обеспечивая высокую каталитическую активность в достаточно широком диапазоне рН. Установлено также, что АДФ вызывает агрегацию молекул фермента с образованием надмолекулярных форм.
Необходимо подчеркнуть, что эффективность адениннуклеотидного контроля активности НАД-ИЦДГ определяется не столько абсолютными концентрациями АТФ, АДФ и АМФ, сколько соотношением высоко- и низкоэнергетических компонентов адениннуклеотидной системы. В значительной степени эффективность адениннуклеотидного контроля НАД-ИЦДГ-реакции зависит от интрамитохондриальной концентрации ионов Са+, которые изменяют Км фермента для изоцитрата. Установлено, что низкие концентрации Са+, фумаразы, малатдегидрогеназы в мозге, как и в других тканях, превышает активность ферментов начальных стадий цикла и, следовательно, не ограничивает общую скорость цикла. Расчеты, выполненные на аналоговых вычислительных машинах, показывают, например, что на поддержание средней скорости потока метаболитов через ЦТК расходуется лишь 2–5% максимальной активности малатдегидрогеназы и около 15–20% активности сукцинатдегидрогеназы. Напротив, скорость потока метаболитов через ЦТК требует почти максимальной активности цитратсинтазы и НАД-изоцитратдегидрогеназы.
Заканчивая рассмотрение реакций ЦТК и особенностей их регуляции в головном мозге, следует кратко остановиться на значении сукцинатдегидрогеназной реакции. В отличие от других дегидрогеназ ЦТК сукцинатдегидрогеназа относится к флавин-зависимым ферментам. Она играет особую роль в энергетическом метаболизме при экстремальных состояниях, прежде всего таких, которые сопровождаются нарушениями на пиридин-нуклеотидном участке дыхательной цепи, например при облучении. При гипоксии, когда нарушается отношение между окисленными и восстановленными формами пиридиннуклеотидов, и в силу накопления НАДН возможно обращение конечных этапов ЦТК, окисление янтарной кислоты под действием сукцинатдегидрогеназы также приобретает большое значение для поддержания энергетического баланса ткани.
Из приведенных данных можно сделать вывод о следующих характерных для головного мозга особенностях в функционировании и регуляции ЦТК:
1) активность ферментов, катализирующих наиболее медленные этапы ЦТК – цитратсинтазы и НАД-изоцитратдегидроге-назы, в мозге значительно выше, чем во многих других тканях;
2) в головном мозге доминирующим механизмом регуляции скорости окисления изоцитрата является адениннуклеотидный контроль, что связано с преобладанием в митохондриях мозга НАД-зависимого пути окисления этого субстрата;
3) в головном мозге существует единый функциональный комплекс из двух ферментов – цитратсинтазы и НАД-изоцитратдегидрогеназы, обеспечивающий однонаправленное и синхронное изменение скорости наиболее медленных реакций ЦТК в зависимости от энергетических потребностей ткани, в первую очередь – от соотношения компонентов адениннуклеотидной системы;
4) на участке а-кетоглутарат–сукцинат наряду с универсальной для всех тканей последовательностью реакций в мозге возможно шунтирование с образованием в качестве промежуточного продукта биологически активной у-аминомасляной кислоты.
6. КОМПОНЕНТЫ ДЫХАТЕЛЬНОЙ ЦЕПИ МИТОХОНДРИЙ И ИХ СООТНОШЕНИЕ В ГОЛОВНОМ МОЗГЕ
Созревание и окончательная дифференцировка головного мозга животных сопровождается значительной интенсификацией окислительных реакций, при этом происходят интенсивные процессы образования митохондрий. Число митохондрий в расчете на клетку у взрослых крыс вдвое больше, чем у новорожденных. Подсчитано, что нейроны мозга взрослых крыс могут воспроизводить до 2000 митохондрий в день в расчете на клетку, что свидетельствует о быстром обновлении этих важных субклеточных структур.
С возрастом меняется не только общее количество митохондрий, но и локализация их в нервных клетках; больше митохондрий сосредоточивается в областях синоптических окончаний. Анализ ультраструктуры митохондрий с помощью электронного микроскопа показывает, что в зрелом мозге присутствует большее число относительно небольших по диаметру, но удлиненных митохондрий, чем в мозге новорожденных животных. Появление таких митохондрий приурочено к развитию дендритных сплетений.
Наряду с увеличением количества митохондрий в головном мозге с возрастом примерно вдвое повышается содержание основных компонентов дыхательной цепи митохондрий: цитохромов и флавопротеидов.
Накопление компонентов дыхательной цепи митохондрий мозга идет неравномерно: показано медленное нарастание уровня цитохромов в первые 15 дней постнатального развития и более интенсивное в интервале между 15-м и 30-м днями; к концу последнего периода содержание основных переносчиков дыхательной цепи митохондрий близко к уровню, характерному для взрослых животных. Именно период 2-й – 4-й недели развития для крыс связан с интенсивной миелинизацией, завершением развития нейронов, появлением электрической активности коры больших полушарий и двигательных реакций при электростимуляции мозга.
Одним из наиболее важных этапов в функционировании дыхательной цепи митохондрий является передача электронов от цитохрома а3 на кислород. Как известно, это наиболее медленная реакция среди окислительно-восстановительных реакций цитохромов. Активность цитохромоксидазы, как и количество компонентов дыхательной цепи, в головном мозге с возрастом увеличивается примерно вдвое. Активность цитохромоксидазы несколько большая в нейроглиальных клетках, чем в нейронах.
Таблица 6. Содержание основных компонентов дыхательной цепи митохондрий в головном мозге взрослых и растущих кроликов
|
Возраст животных, дни |
Митохондрии коры больших полушарий |
Митохондрии ствола мозга |
||||||||
|
флаво-гтро-теиды |
цитохромы |
флаво-про-теиды |
цитохромы |
|||||||
|
b |
а |
а3 |
с+с1 |
b |
а |
аз |
||||
|
1 |
0,60 |
0,20 |
0,21 |
0,24 |
0,07 |
1,23 |
0,42 |
0,41 |
0,49 |
0,13 |
|
15 |
0,76 |
0,20 |
0,22 |
0,4:1 |
0,06 |
0,85 |
0,48 |
0,31 |
0,54 |
0,09 |
|
30 |
1,47 |
0,45 |
0,45 |
0,51 |
0,15 |
2,64 |
0,72 |
0,67 |
0,99 |
0,27 |
|
Половозрелые |
1,81 |
0,67 |
0,64 |
0,78 |
0,20 |
2,48 |
0,90 |
0,90 |
1,23 |
0,27 |
Последовательность компонентов дыхательной цепи митохондрий и характер их взаимодействия в митохондриях мозга не отличаются от такового в митохондриях любой другой ткани. Как известно, скорость окислительно-восстановительных превращений компонентов дыхательной цепи значительно превышает скорость реакций дегидрирования субстратов, поэтому именно дегидрогеназные реакции определяют в конечном счете интенсивность окисления энергетических субстратов тканью. Этим же объясняется и значение для интенсивности окислительных процессов в ткани отношения активности дегидрогеназ к содержанию основных компонентов дыхательной цепи. Установлено, что в тканях с высокой скоростью окисления соотношение активности ферментов, лимитирующих ЦТК, к содержанию цитохромов а+а3 или цитохрома с обычно превышает такое соотношение для тканей с более низкой интенсивностью окислительных процессов.
Следовательно, существование подобного соотношения в митохондриях головного мозга можно рассматривать как структурную основу, обеспечивающую высокую интенсивность окислительного и энергетического обмена.
7. ФОНД МАКРОЭРГИЧЕСКИХ СОЕДИНЕНИЙ В МОЗГЕ; ИНТЕНСИВНОСТЬ ИХ ОБРАЗОВАНИЯ И ИСПОЛЬЗОВАНИЯ
Высокая скорость потребления головным мозгом глюкозы и кислорода сопряжена с интенсивным образованием макроэргических соединений. Среди богатых энергией соединений в мозге основная доля принадлежит компонентам адениннуклеотидной системы и креатинфосфату, в то время как трифосфаты гуанина, цитозина, уридина и других составляют менее 10% от суммы макроэргов. Средние данные по содержанию в головном мозге компонентов адениннуклеотидного пула, а также системы креатин-креатинфосфат представлены в табл. 7.
В целом соотношение адениновых нуклеотидов в тканях мозга и печени примерно одинаково', основной составляющей адениннуклеотидного пула является в обоих тканях АТФ. Однако уровень АДФ и особенно АМФ в мозге значительно ниже, чем в печени. Распределение основных макроэргических соединений примерно одинаково во всех отделах мозга.
Особого внимания заслуживают накопленные в последние десятилетия данные о минорном компоненте адениннуклеотидной системы – циклическом 35'-АМФ. Установлено, что содержание этого биологически важного соединения в головном мозге значительно выше, чем во многих других тканях, уровень цАМФ в мозге составляет в среднем 1–2 нмоль/г, а цГМФ – до 0,2 нмоль/г. Для мозга характерна также и высокая активность ферментов метаболизма циклических нуклеотидов. Очень высокая активность аденилатциклазы и гуанилатциклазы в синаптосомальных мембранах указывает на специфическую роль циклических нуклеотидов в мозге – они участвуют в синоптической передаче.
Важную роль в энергетическом метаболизме мозга играет система креатин-креатинфосфат. Высокое содержание креатина и его фосфорилированного производного, более чем в 2 раза превышающее сумму адениновых нуклеотидов, а также значительная активность креатинкнназы позволяют рассматривать креатин-креатинфосфат как мощную систему стабилизации уровня макроэргичеасих компонентов адениннуклеотидного пула.
В головном мозге до 25–30% активности креатинкиназы связано с митохондриями. Фермент локализован на внешней митохондриальной мембране. Равновесие катализируемой им реакции сдвинуто в сторону образования креатинфосфата в отличие от цитоПлазматической реакции. Вместе с АТФ-АДФ-транс-локазой, находящейся на внутренней мембране. митохондрий, креатинкиназа принимает участие в трансформациях макроэр-гических соединений, а также в переносе их из одного клеточного компартмента в другой.
Таблица 7. Содержание некоторых нуклеотидов, креатина и кратинфосфата в головном мозге и печени крыс, мкмоль/г
|
Головной мозг |
||||
|
Соединение |
средние данные |
кора больших полушарий |
мозжечок |
Печень |
| АТФ |
2,30–2,90 |
2,08 |
2,60 |
2,40–2,80 |
| АДФ |
0,30–0,50 |
0,12 |
0,16 |
0,80–1,00 |
| АМФ |
0,03–0,05 |
0,02 |
0,04 |
0,15–0,30 |
|
Значение «энергетического заряда» |
0,850–0,930 |
- | - |
0,810–0,870 |
| ГТФ |
0,20–0,30 |
0,29 |
0,39 |
0,19–0,26 |
| ГДФ |
0,15–0,20 |
0,10 |
0,07 |
0,18–0,25 |
| УТФ |
0,17–0,25 |
0,22 |
0,19 |
0,19–0,25 |
|
Креатин |
5,50–5,95 |
5,68 |
5,47 |
Следы |
|
Креатинфосфат |
3,50–4,75 |
3,90 |
4,21 |
Следы |
8. ЭНЕРГООБЕСПЕЧЕНИЕ СПЕЦИФИЧЕСКИХ ФУНКЦИЙ НЕРВНОЙ ТКАНИ
Изучение суммарных процессов окисления и образования энергопродукции в мозге представляет собой одну сторону проблемы; другая сторона – выявление специфических процессов в нервной ткани, требующих энергетических затрат. Характеристика этих процессов остается до настоящего времени во многом загадочной.
Еще в ранних работах, выполненных П. Мак-Ильвейном и другими исследователями на изолированных нервах, ганглиях или срезах мозга, установлено, что электростимуляция препаратов сопровождалась усилением потребления кислорода и глюкозы, причем обнаружена прямая зависимость между частотой электрической импульсации и степенью интенсификации окислительных процессов. Электрическое раздражение вызывает резкое и быстрое снижение уровня АТФ, вслед за которым уменьшается содержание креатинфосфата и накапливается неорганический фосфат; после прекращения электростимуляции препаратов в первую очередь восстанавливается уровень АТФ.
Впоследствии аналогичные данные об изменении уровня основных макроэргических соединений при изменении функционального состояния нервной системы были получены in vivo в экспериментах с мозгом целостных животных. Показано заметное ускорение расходования АТФ и креатинфосфата при возбуждении – условно-рефлекторном или вызванном фармакологическими препаратами; и, напротив, замедление использования этих соединений при торможении или наркозе. В этих экспериментах на интактных животных установлено, что при усилении энергозатрат в мозге сначала уменьшается уровень запасных энергетических субстратов – креатинфосфата и гликогена и лишь после исчерпания этих источников начинает быстро снижаться уровень АТФ; в период восстановления уровень АТФ первым возвращается к исходным значениям, а затем нормализуется содержание креатинфосфата и гликогена.
В последние годы для исследования интенсивности энергетического метаболизма различных структур мозга широко применяется радиоактивный дериват глюкозы – 2-дезоксиглюкоза; теоретическое обоснование использования этого соединения сделано в лаборатории американского нейрохимика Л. Соколова. Метод основан на том, что дезоксиглюкоза поглощается мозгом и вступает в гексокиназную реакцию со скоростью, прямо пропорциональной скорости использования глюкозы. Однако дальнейшие метаболические превращения дезок-сиглюкозо-6-фосфата в мозге практически не происходят.
Использование С- или дезоксиглюкозы с последующей авторадиографией срезов мозга позволило получить более детальное представление о поглощении глюкозы и интенсивности энергетического метаболизма в самых разных структурах мозга. Была установлена тесная корреляция между интенсивностью энергетического обмена и функциональной активностью определенных структур мозга в экспериментах, где контролем служили аналогичные структуры контрлатерального полушария того же самого животного. Например, обнаружено снижение на 35–60% потребления глюкозы структурами слуховой системы или зрительной системы после соответствующей депривации.
Подобные исследования дают представление лишь об итоговых, балансовых изменениях важнейших компонентов энергетического обмена, оставляя неясными количественные характеристики энергозатрат на специфические процессы, присущие только нервной ткани, интенсивность которых меняется при изменении функционального состояния. К сожалению, в настоящее время нет еще исчерпывающего ответа на один из кардинальных вопросов нейрохимии и нейрофизиологии: какие конкретные биохимические реакции лежат в основе целого ряда функций нервной ткани. Многие стороны этой важной проблемы нуждаются в уточнениях и дальнейших углубленных исследованиях. Некоторые специфические энергозависимые функции нервной ткани и биохимические процессы, лежащие в их основе, в общих чертах суммированы в табл. 8.
Одной из основных функций нервной ткани является передача импульсов от одного нейрона к другому. Толчком к расшифровке взаимосвязи между энергетическим метаболизмом и этой функцией послужили работы А. Ходжкина, установившего, что необходимым условием для прохождения импульсов по нервному волокну служит неравномерное распределение ионов натрия и калия по разным сторонам клеточной мембраны. Поддержание ионной асимметрии, восстановление ее после прохождения нервного импульса связано со значительными энергетическими затратами; прежде всего это относится к транспорту ионов натрия против градиента концентрации в момент перехода потенциала действия в потенштал покоя. Особое значение в этом процессе принадлежит К+, Na^-стимулируемой АТФазе.
Таблица 8. Основные энергозависимые процессы, лежащие в основе специфических функций нервной ткани
|
Функции |
Биохимические реакции |
|
1. Проведение нервных импульсов с последующим восстановлением ионной асимметрии |
К+, №+-АТФазная реакция |
|
2. Поддержание определенной пространственной ориентации и конформа-ции структурных единиц нейрона |
Фосфорилирование специфических белков нейрофиламентов и другие реакции |
|
3. Образование синаггтичес-ких структур; функционирование синапсов |
Синтез специфических белков, липо- и гликопротеидных комплексов; синтез и метаболизм нейромедиаторов, транспорт, выделение, обратный захват нейромедиаторов |
|
4. Хранение и переработка информации |
Синтез специфических белков, нейропеп-тидов, нуклеиновых кислот, липо- и гликопротеидных комплексов |
|
5. Трансмембранный перенос субстратов, нейромедиаторов |
Реакции, катализируемые АТФазными системами, транслоказные реакции |
|
6. Аксональный и ретроградный ток |
Фосфорилирование специфических белков |
Детально изучены свойства этого важнейшего фермента, определена роль липидов мембран в его активации. Установлено, что активность К+, фазы в головном мозге заметно выше, чем во многих других тканях, причем максимальная активность фермента обнаружена в коре больших полушарий, меньшая – в коре мозжечка и таламусе, затем – в экстрапирамидальных ядрах; минимальная активность найдена в белом веществе. Активность фермента значительно возрастает в ходе формирования и окончательного созревания мозга; например, у крыс в интервале между 5-м днем до рождения и 60-м днем постнатального развития она увеличивается в 10 раз.
Таким образом, обнаруживается четкий – параллелизм между повышением энергетических потребностей в ходе созревания мозга и увеличением активности фермента, обеспечивающего энергетику усиливающейся импульсавди. Следует добавить, что энергия, требующаяся на прохождение одного нервного импульса в мозге взрослых животных, гораздо выше, чем у новорожденных.
Сопоставление средней частоты прохождения нервных импульсов и объема, требующегося для обеспечения импульсации трансмембранного переноса ионов натрия и калия, со скоростью синтеза макроэргических соединений дает возможность приблизительно оценить затраты энергии на осуществление этой важнейшей функции нервной ткани. По расчетам М.И. Прохоровой, при стационарном состоянии эти затраты составляют около 10–15% от общего количества АТФ, образующегося в мозге за единицу времени; при изменении функционального состояния, особенно при возбуждении, расход АТФ возрастает. В работах других исследователей приводятся более высокие цифры; например, для коры больших полушарий мозга крыс общие затраты на трансмембранный перенос ионов натрия составляют около 40, для гиппокампа – 55%.
Детальные прижизненные исследования структурной организации механорецепторного нейрона рака методом «электронного зонда», а также параллельное определение ряда метаболических и электрофизиологических параметров показали, что основные структурные и метаболические перестройки и значительное усиление энергозатрат связаны с изменением функциональной активности, т.е. режима работы нейрона – переход от относительного покоя к возбуждению, смена возбуждения торможением и др. Причем установлено, что торможение нейрона характеризуется более быстрой и интенсивной активацией энергетического обмена по сравнению с возбуждением. Эти наблюдения отражают, таким образом, энергетическое обеспечение еще одной стороны специфической деятельности нервной клетки – ее интегративной функции.
К специфическим функциям нервной ткани – относятся также процессы хранения и переработки информации, поступающей в головной мозг. Синтез специфических белков и нейро-пептидов, компонентов липо- и гликопротеидных комплексов, участвующих в реализации отдельных этапов хранения и переработки информации, в процессе консолидации временных связей требует значительных энергетических затрат. Интенсивность синтеза ряда белков и пептидов мозга существенно превышает скорость биосинтеза белков в других тканях и заметно изменяется при нарушении энергетического обмена, вызванного недостатком кислорода.
Процессы, связанные с возникновением долговременного следа памяти, наиболее выражены в областях синаптических контактов; именно в синаптических окончаниях зарегистрирована интенсификация синтеза специфических белков при обучении.
Следовательно, чем интенсивнее протекают в том или ином образовании мозга процессы переработкой запоминания поступающей информации, тем выше потребность в богатых энергией соединениях и субстратах для синтетических реакций.
Кроме того, огромную роль в обеспечении функционирования синапсов играют процессы фосфорилирования белков, также связанные с потреблением АТФ или ГТФ. Циклы фосфорилирования – дефосфорилирования белков служат важным регуляторным механизмом, обеспечивающим пластичность на уровне нейронов. Процесс фосфорилирования является Са+-кальмодулинзависимым или циклонуклеотидзависимым; последнее обстоятельство делает понятным высокую t концентрацию циклических нуклеотидов и высокую активность ферментов их метаболизма в синаптических окончаниях. В синапсах процесс фосфофилирования специфических белков включается разнообразными нейромедиаторами. Изменение степени фосфорилирования белков, участвующих в функционировании синаптических окончаний, рецепторов, ферментов синтеза и метаболизма нейромедиаторов может существенно менять проводимость синапса; это доказано на примере фосфорилирования тирозингидроксилазы и ряда других белков.
Фосфорилирование специфических белков служит необходимым этапом синоптической передачи, обеспечивая выход некоторых нейромедиаторов в синаптическую щель. Энергозависимость процесса высвобождения нейромедиаторов в синаптическую щель, участие в нем АТФазных системна также энергозависимость процесса обратного захвата нейротрансмиттера из синаптической щели подтверждена результатами многих исследований. Последовательность протекающих; при этом процессов отражает схема 5.
Таким образом, осуществление такой важной и специфической функции нервной ткани, как синоптическая передача, требует значительных энергетических затрат. – В настоящее время трудно оценить количественно эти затраты, однако их большой объем не вызывает сомнений, поскольку число синоптических контактов на поверхности нейронов необычайно велико.
Еще одним важным обстоятельством, накладывающим определенный отпечаток на энергетический обмен