Культивирование, идентификация и очистка герпесвирусов
2.6 Типы частиц CMV
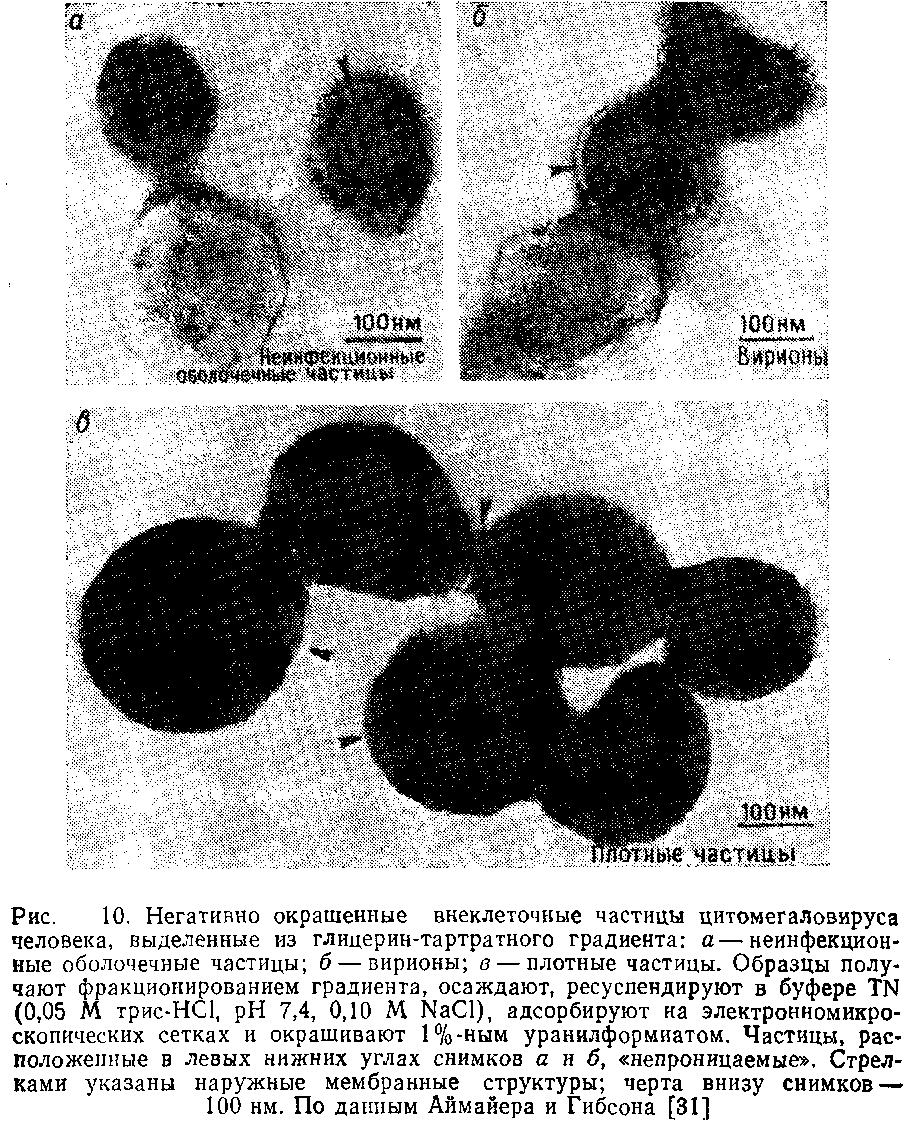
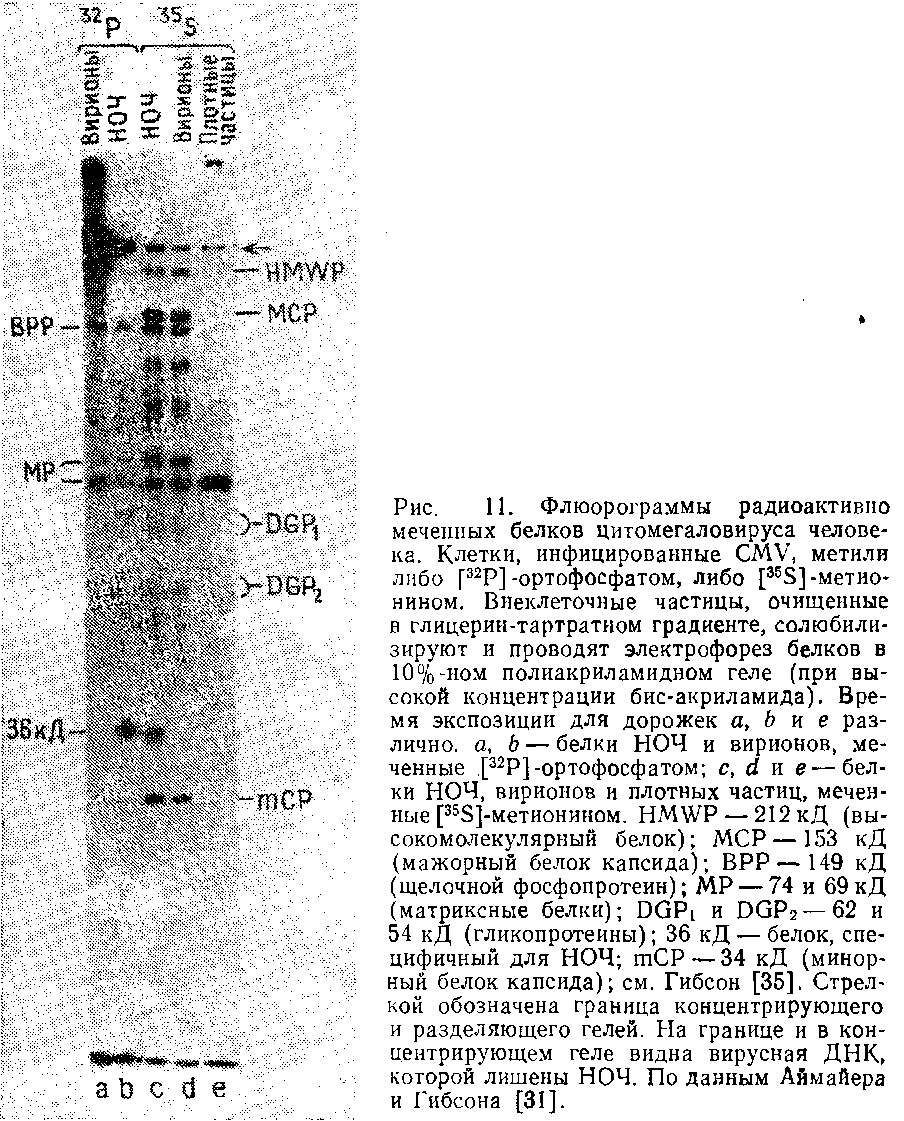
На рис. 10 представлены электронные микрофотографии частиц CMV различной морфологии, полученные методом негативного контрастирования. Спектры структурных полипептидов этих частиц, полученные электрофорезом в полиакриламидном геле, показаны на рис. 11.
2.6.1 Неинфекционные оболочечные частицы
Аймайер и Гибсон провели детальный анализ характерных признаков данных частиц. Несмотря на их сходство по внешнему виду и белковому составу со стандартными вирионами, они не содержат ДНК и, следовательно, неинфекционны.
2.6.2 Частицы высокой плотности
Структура и состав подобных частиц проще, чем неинфекционных оболочечных и стандартных вирионов. Эти частицы представляют собой большие плотные сферы, заполненные гомогенным материалом и окруженные внешней мембраной. Они не содержат ДНК., и 90% всего их белка приходится на матриксный белок, имеющий мол. массу 69 кД.
2.6.3 Вирионы
Гибсон опубликовал подробные спектры структурных белков многих штаммов CMV человека и сравнил их с CMV обезьян. Эти данные представлены на рис. 12 и в табл. 3.
3. Герпесвирус саймири
Герпесвирус саймири можно выделить из крови и культуры клеток большинства здоровых обезьян саймири. Для своих природных хозяев этот вирус не патогенен. Однако он стал предметом пристального внимания ученых после того, как была продемонстрирована его высокая онкогенность для тканей других приматов, в особенности мармозеток из рода Saguinus. У последних в течение 2 мес после заражения развиваются злокачественные опухоли лимфатической системы. Показано, что герпесвирус саймири относится к f-субгруппе герпесвирусов.
3.1 Получение заготовок вируса
Из большого количества проанализированных клеточных культур для литической инфекции и роста различных штаммов HVS наиболее пригодной оказалась линия клеток почки обезьян дурукули. Кроме того, за небольшим исключением, для получения заготовок HVS можно использовать и клетки линии Vero. Клетки ОМК можно выращивать на большинстве культуральных сред с добавлением ТС.
Для получения заготовок вируса клетки ОМК, растущие в роллерных флаконах, заражают вирусом и культивируют 4–5 дней при 37°С. Оптимальная температура культивирования – 34°С. Однако культивирование при этой температуре может привести к возникновению температурно-чувствительных мутантов. ЦПД проявляется в образовании шарообразных агрегатов клеток, не являющихся истинными синцитиями.
Как правило, ЦПД удается обнаружить на 4–5 день после заражения, хотя эти сроки могут варьировать для различных штаммов. Дочерние вирусы высвобождаются в культуральную среду, при этом в 50 мл среды одного роллерного флакона содержится примерно 2–106–2-107 БОЕ/мл. Вирусную суспензию с таким титром следует хранить при –70°С, кроме того, вирус можно предварительно сконцентрировать осаждением. Осажденный вирус обычно характеризуют отношением числа физических частиц к инфекционным. Для штамма HVS 11 данное отношение составляет 200–500, этот штамм на редкость стабилен при 4°С. Он теряет за месяц при хранении в культуральной среде всего лишь 0,51g инфекционности.
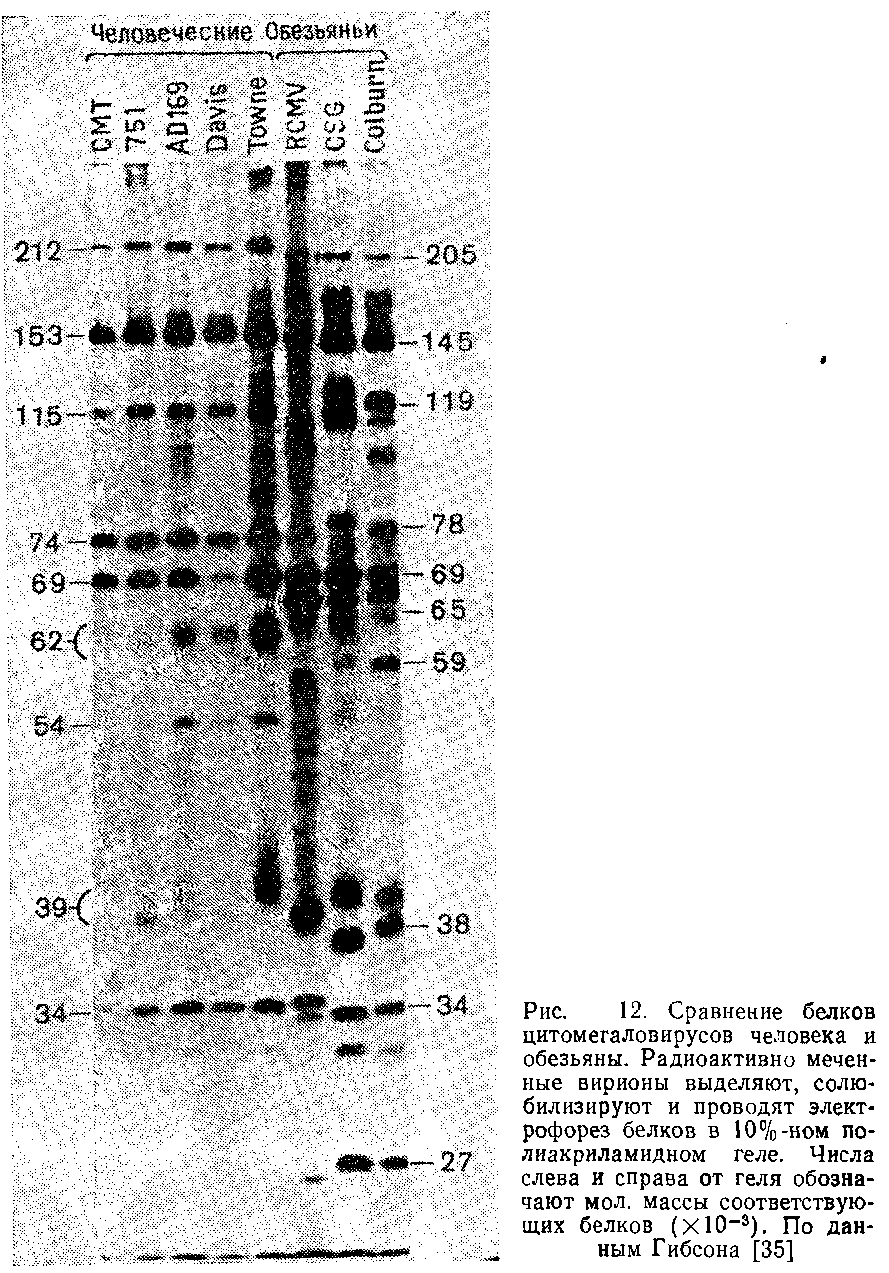
Таблица 3. Характерные особенности белков CMV
|
Сходные белки различных штаммов CMV |
Природа белков |
Характеристики |
|||
|
Colburn |
CSG |
RCMV |
HCMV 751 |
||
|
205 |
205 |
207 |
212 |
Высокомолекулярный белок |
Самый большой белок вириона |
|
163 |
263 |
- |
145 |
Кислый гликопротеин |
Кислый гликозилированный белок |
|
145 |
143 |
150 |
153 |
Основной белок капсида |
Главный, структурный белок капсида |
|
129 |
129 |
129 |
140 |
Белок отсутствует |
|
|
119 |
114 |
100 |
149 |
Щелочной фосфопротеин |
Мажорный фосфорили-рованный, щелочной белок |
|
119 |
н. о. |
н. о. |
– |
GP119 |
Гликозилированный, кислый |
|
112 |
112 |
112 |
115 |
Белок вириона |
|
|
100 |
н. о. |
н. о. |
– |
GP100 |
Гликозилированный, кислый |
|
94 |
90 |
92 |
79 |
Предранний |
Отсутствует в вирионе, кислый, фосфорилирован |
|
78 |
82 |
75 |
80 |
Содержится в вирионе |
|
|
69 66 |
69 66 |
69 66 |
74 69 |
Белок внешнего матрикса Белок внутреннего матрикса |
Мажорный белок, фосфорилирован Мажорный, фосфорилирован, локализуется |
|
65 61 |
64 |
65 |
62 54 57 |
Гликопротеин |
Мажорный, гликозилированный |
|
н. о. |
н. о. |
Гликопротеин |
Гликозилированный |
||
|
59 |
59 |
– |
GP59, 57 |
Гликозилированный |
|
|
51 |
50 |
51 |
52 |
ДНК-связывающий белок |
Фосфорилированный, мажорный, ядерный |
|
40 |
41 |
39 |
42 |
Белок вириоиа |
|
|
38 |
37 |
39 |
39 |
||
|
37 |
37 |
38 |
35 |
Белок сборки |
Мажорный, фосфорилированный, локализуется в В-капсидах |
3.2 Титрование вируса
HVS в соответствующих разведениях обычно титруют на монослое клеток Vero или ОМК, растущих в 25 см2 пластиковых флаконах с плоским дном. Вирус титруют методом бляшек. Необходимо отметить, что некоторые партии телячьей сыворотки ингибируют формирование бляшек в культурах ОМК. Во избежание этого сыворотку выдерживают 30 мин при 56°С.
1. Адсорбируют аликвоты соответствующих разведений вируса объемом 1 мл 1–2 ч при 37°С.
2. Аликвоты заменяют на культуральную среду, содержащую 2% ТС и 0,5% КМЦ.
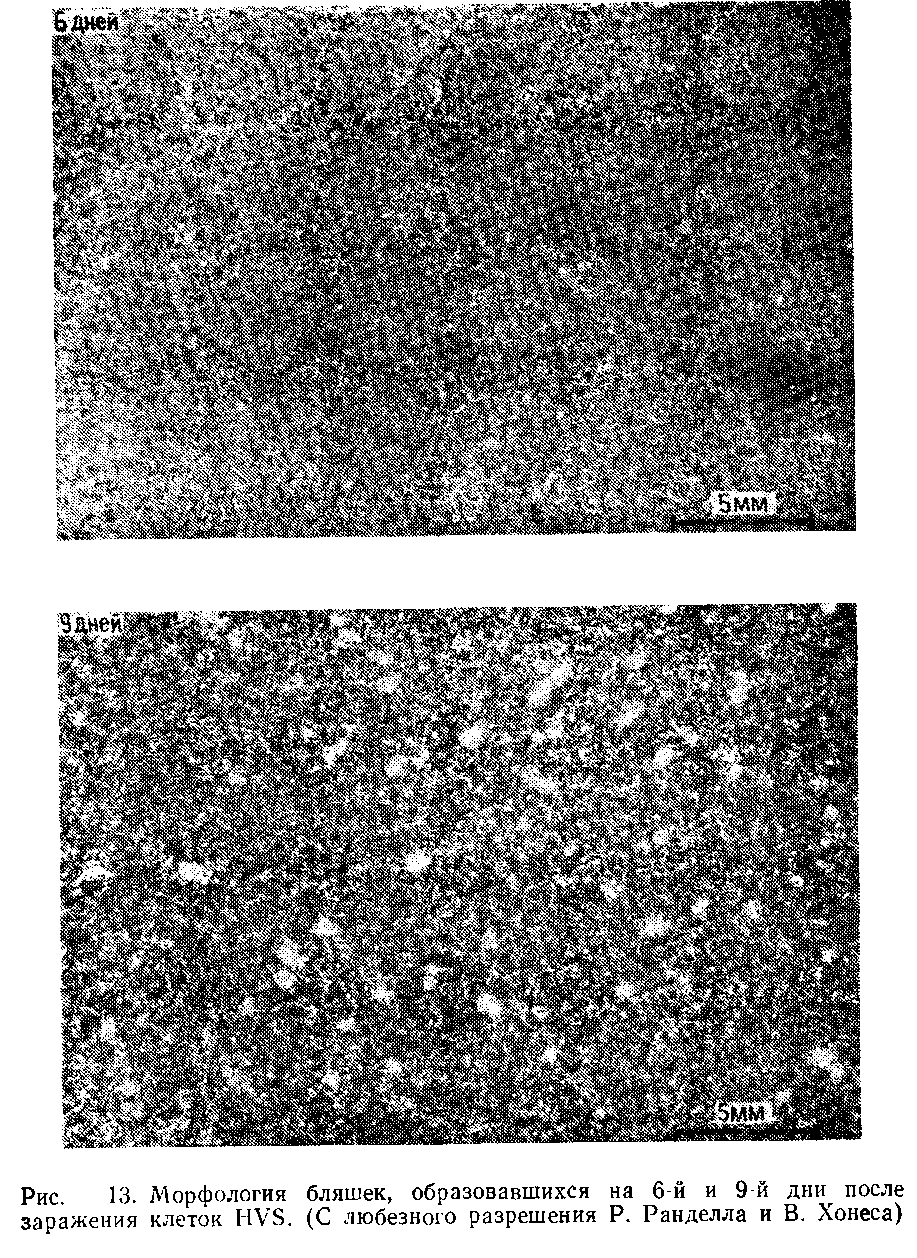
3. Через 7–10 дней инкубации при 37°С начинают формироваться мелкие бляшки. Через 14 дней диаметр бляшек достигает 2–3 мм, хотя, конечно же, данный признак специфичен для каждого штамма.
Немного раньше бляшки формируются в монослойных первичных культурах мармозеток. На рис. 13 показана морфология бляшек HVS через 6 и 9 дней после начала инфекции.
3.3 Цикл размножения
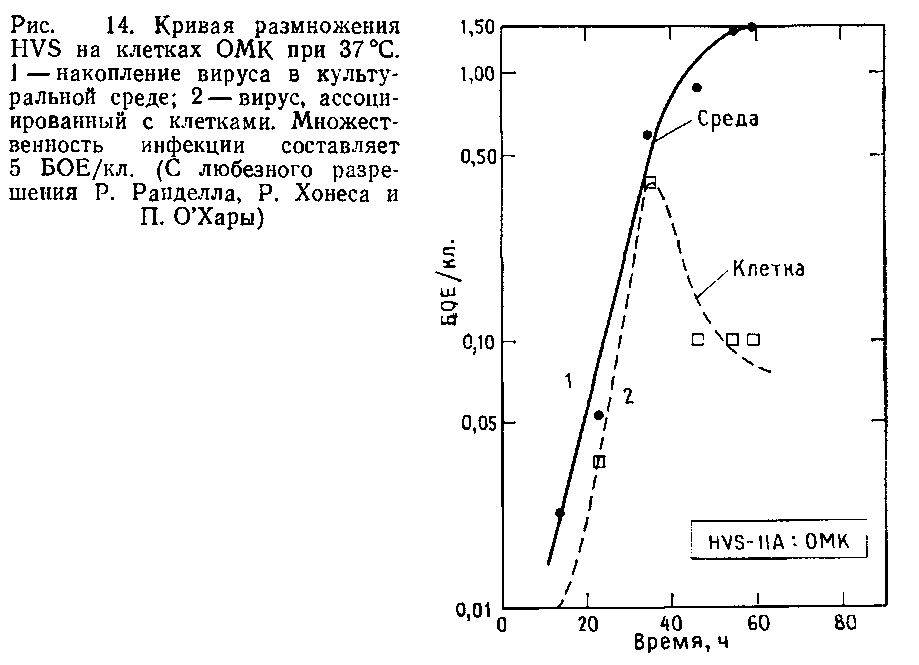
Обычно для получения кривых роста в культуры вносят вирус с высокой множественностью инфекции, а затем через короткие промежутки времени собирают вирус. Таким образом, получают кривую роста HVS. Однако интерпретировать полученные результаты следует с осторожностью. Рэн-делл и Хонес показали, что в этих условиях во многих клетках задерживается инициация вирусной репликации. Если это действительно так, то цикл размножения HVS в одной инфицированной клетке может завершиться за 18 ч.
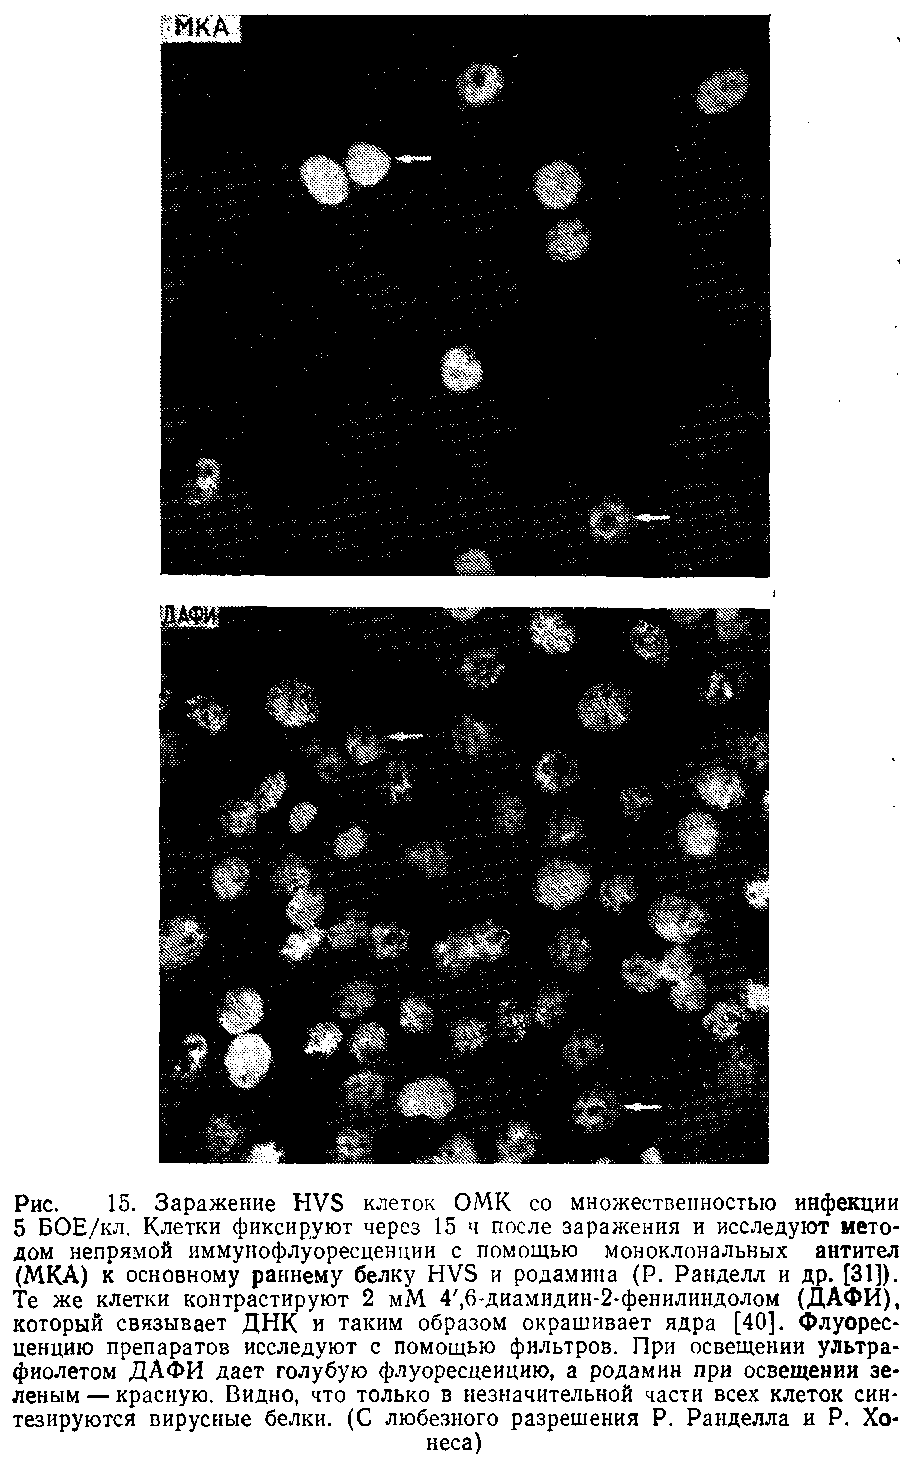
Возможно, что репликация вируса зависит и от клеточного цикла. Эти сложные исследования велись с помощью иммунофлуоресценции на основе моноклинальных антител к антигенам зараженных клеток.
3.4 Получение очищенного вируса
1. Монослойные культуры, выращиваемые в роллерных флаконах, инфицируют с низкой множественностью инфекции, как описано выше. Через 4–5 дней вирус осаждают из культуральной среды центрифугированием при 25000 об/мин 30 мин в роторе SW27. При необходимости через 2 дня после заражения вносят радиоактивную метку.
2. Осадок ресуспендируют в соответствующем буфере. Полученную суспензию по возможности следует оставить на ночь при 4°С.
3. Суспендированный осадок наслаивают на градиент глицерина или сахарозы и центрифугируют при 19000 об/мин 20–30 мин в роторе SW27. После центрифугирования при просмотре пробирок в рассеянном свете обнаруживается одна полоса в центре градиента.
4. Фракцию, состоящую более чем на 90% из вирусных частиц, имеющих оболочку, отбирают, центрифугируют 1 ч при 25000 об/мин и ресуспендируют в соответствующем буфере.
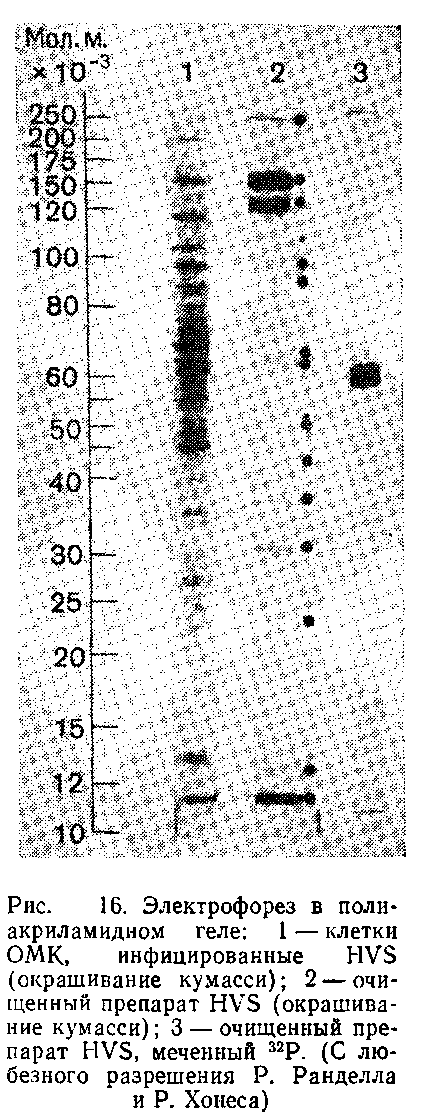
В результате первого градиентного центрифугирования получают осадок, содержащий большое количество вируса. Осадок можно ресуспендировать и дополнительно очистить вторым градиентным центрифугированием. Фракции очищенного вируса могут быть использованы для определения концентрации белка, количества физических частиц и инфекционного титра. Для исследования вирусных частиц электрофорезом в полиакриламидном геле вирус разрушают, как описано выше для ВПГ. Спектр структурных полипептидов HVS штамма 11 показан на рис. 16.