Цитология, эмбриология, общая гистология
Утратив в процессе развития ядро, зрелые эритроциты у млекопитающих являются безъядерными клетками и имеют форму двояковогнутого диска со средним диаметром круга 5-7 мкм. Эритроциты крови верблюда и ламы овальные. Дисковидная форма увеличивает общую поверхность эритроцита в 1,64 раза.
Между количеством эритроцитов и их величиной существует обратная зависимость.
Эритроциты покрыты оболочкой - плазмолеммой(толщиной 6 нм), содержащей 44% липидов, 47% белков и 7% углеводов. Мембрана эритроцитов легко проницаема для газов, анионов, ионов Na.
Внутреннее коллоидное содержимое эритроцитов на 34% состоит из гемоглобина - уникального сложного окрашенного соединения - хромопротеида, в небелковой части которого (геме) имеется двухвалентное железо, способное образовывать особые непрочные связи с молекулой кислорода. Именно благодаря гемоглобину осуществляется дыхательная функция эритроцитов. Оксигемоглобин = гемоглобин+О2.
Наличие гемоглобина в эритроцитах обуславливает выраженную оксифилию их при окраске мазка крови по Романовскому- Гимзе (эозин + азур II). Эритроциты при этом окрашиваются в красный цвет эозином. При некоторых формах анемий центральная бледно окрашенная часть эритроцитов увеличена - гипохромные эритроциты. При суправитальном окрашивании крови бриллиантовым крезиловым синим можно обнаружить молодые формы эритроцитов, содержащие зернисто-сетчатые структуры. Такие клетки называют ретикулоцитами, они являются непосредственными предшественниками зрелых эритроцитов. Подсчет ретикулоцитов используется для получения информации о скорости образования эритроцитов.
Период жизни эритроцита 100-130 дней ( у кроликов 45-60 дней). Эритроциты обладают свойством противостоять различным разрушительным воздействиям - осмотическим, механическим и др. При изменениях концентрации солей в окружающей среде мембрана эритроцита перестаёт удерживать гемоглобин, и он выходит в окружающую жидкость - явление гемолиза. Выход гемоглобина может происходить в организме при действии змеиного яда, токсинов. Гемолиз развивается также при переливании несовместимой по группе крови. Практически важно при введении в кровь животным жидкостей осуществлять контроль за тем, чтобы вводимый раствор был изотоническим.
У эритроцитов по сравнению с плазмой и лейкоцитами крови относительно большая плотность. Если кровь обработать противосвертывающими веществами и поместить в сосуд, то отмечают оседание эритроцитов. Скорость оседания эритроцитов (СОЭ) у животных разного возраста, пола и вида неодинакова. Высокая СОЭ у лошадей и, наоборот, низкая у крупного рогатого скота. СОЭ имеет диагностическое и прогностическое значение.
Лейкоциты - разнообразные по морфологическим признакам и функциям клетки сосудистой крови. В организме животных они выполняют многообразные функции, направленные прежде всего на защиту организма от чужеродного влияния путем фагоцитарной активности, участия в формировании гуморального и клеточного иммунитета, а также в восстановительных процессах при тканевых повреждениях. В 1 мм3 крови у крупного рогатого скота их насчитывается 4,5-12 тыс., у лошадей - 7-12 тыс., овец - 6-14 тыс., свиней - 8-16 тыс., кур - 20-40 тыс. Увеличение количества лейкоцитов - лейкоцитоз - характерный признак для многих патологических процессов.
Образовавшись в кроветворных органах и поступив в кровь, лейкоциты лишь непродолжительное время пребывают в сосудистом русле, затем мигрируют в вокруг сосудистую соединительную ткань и органы, где осуществляют свою основную функцию.
Особенность у лейкоцитов та, что они обладают подвижностью за счет образующихся псевдоподий. В лейкоцитах различают ядро и цитоплазму, содержащую различные органеллы и включения. Классификация лейкоцитов основана на способности окрашиваться красителями и зернистости.
Лейкоциты зернистые (гранулоциты): нейтрофилы (25-70%), эозинофилы (2-12%), базофилы (0,5-2%).
Лейкоциты незернистые (агранулоциты): лимфоциты (40-65) и моноциты (1-8%).
Определенное процентное соотношение между отдельными видами лейкоцитов называется лейкоцитарной формулой - лейкограммой.
Увеличение в лейкограмме процента нейтрофилов типично для гнойно-воспалительных процессов. У зрелых нейтрофилов ядро состоит из нескольких сегментов, соединенных тонкими перемычками.
По сравнению с нейтрофилами эозинофилы менее подвижны и обладают меньшей фагоцитарной активностью. Они участвуют в ограничении воспалительного процесса. Эозинофилы являются важнейшими эффекторными клетками в противопаразитарном иммунитете.
На поверхности базофилов расположены специальные рецепторы, с помощью которых связываются иммуноглобулины Е. Они участвуют в иммунологических реакциях аллергического типа.
Циркулирующие в крови моноциты являются предшественниками тканевых и органных макрофагов. После пребывания в сосудистой крови (12-36 ч) моноциты мигрируют через эндотелий капилляров и венул в ткани и превращаются в подвижные макрофаги.
Лимфоциты - важнейшие клетки, участвующие в разнообразных иммунологических реакциях организма. Большое количество лимфоцитов находится в лимфе.
Различают два основных класса лимфоцитов: Т- и В-лимфоциты. Первые развиваются из костномозговых клеток в корковой части долек тимуса. В плазмолемме имеют антигенные маркеры и многочисленные рецепторы, с помощью которых происходит распознавание чужеродных антигенов и иммунных комплексов.
В-лимфоциты образуются из стволовых предшественников в фабрициевой сумке (Bursa). Местом развития их считают миелоидную ткань костного мозга.
Эффекторными клетками в системе Т-лимфоцитов являются три основные субпопуляции: Т-киллеры (цитотоксические лимфоциты), Т-хелперы (помощники) и Т-супрессоры (угнетающие). Эффекторными клетками В-лимфоцитов являются плазмобласты и зрелые плазмоциты, способные в повышенном количестве продуцировать иммуноглобулины.
Кровяные пластинки - безъядерные элементы сосудистой крови млекопитающих. Это небольшие цитоплазматические фрагменты мегакариоцитов красного костного мозга. В 1 мм3 крови их насчитывается 250-350 тыс. кровяных пластинок. У птиц сходные по функции клетки называются тромбоцитами.
Кровяные пластинки имеют важнейшее знание в обеспечении основных этапов остановки кровотечения - гемостаза.
2. Лимфа - почти прозрачная желтоватая жидкость, находящаяся в полости лимфатических капилляров и сосудов. Образование её обусловлено переходом составных частей плазмы крови из кровеносных капилляров в тканевую жидкость. В образовании лимфы существенное значение имеют взаимоотношение гидростатического и осмотического давления крови и тканевой жидкости, проницаемость стенки кровеносных капилляров и т. д.
Лимфа состоит из жидкой части - лимфоплазмы и форменных элементов. Лимфоплазма отличается от плазмы крови меньшим содержанием белков. В лимфе содержится фибриноген, поэтому она также способна к свертыванию. Главные форменные элементы лимфы - лимфоциты. Состав лимфы в различных сосудах лимфатической системы неодинаков. Различают периферическую лимфу (до лимфоузлов) , промежуточную (после лимфоузлов) и центральную (лимфа грудного и правого лимфатического протоков), наиболее богатая клеточными элементами.
3. Кроветворение (гемоцитопоэз) - многостадийный процесс последовательных клеточных превращений, приводящих к образованию зрелых клеток периферической сосудистой крови.
В постэмбриональный период у животных развитие клеток крови осуществляется в двух специализированных интенсивно обновляющихся тканях - миелоидной и лимфоидной.
В настоящее время наиболее признанной является схема кроветворения, предложенная И.Л. Чертковым и А.И. Воробьевым (1981), в соответствии с которой весь гемоцитопоэз разделен на 6 этапов (рис. 8).
Родоначальником всех клеток крови (по А.А. Максимову) является полипотентная стволовая клетка (колониеобразующая единица в селезенке и КОЕс). Во взрослом организме наибольшее количество стволовых клеток находится в красном костном мозге (на 100000 клеток костного мозга приходится около 50 стволовых), из которого они мигрируют в тимус, селезенку.
Развитие эритроцитов (эритроцитопоэз) в красном костном мозге протекает по схеме: стволовая клетка (СК) - полустволовые клетки (КОЕ - ГЭММ, КОЕ- ГЭ, КОЕ - МГЦЭ) - унипотентные предшественники эритропоэза (БОЕ - Э,КОЕ - Э) - эритробласт - пронормоцит - нормоцит базофильный - нормоцит полихроматофильный - нормоцит оксифильный - ретикулоцит - эритроцит.
Развитие гранулоцитов: стволовая клетка красного костного мозга, полустволовые (КОЕ - ГЭММ, КОЕ - ГМ, КОЕ - ГЭ), унипотентные предшественники (КОЕ - Б, КОЕ - Эо, КОЕ - Гн), которые через стадии распознаваемых клеточных форм превращаются в зрелые сегментоядерные гранулоциты трех разновидностей - нейтрофилы, эозинофилы и базофилы.
Развитие лимфоцитов - один из наиболее сложных процессов дифференцировки стволовых кроветворных клеток.
С участием различных органов поэтапно осуществляется формирование двух тесно связанных при функционировании линий клеток - Т- и В-лимфоцитов.
Развитие кровяных пластинок происходит в красном костном мозге и связано с развитием в нем особых гигантских клеток - мегакариоцитов. Мегакариоцитопоэз состоит из следующих стадий: СК - полустволовые клетки (КОЕ -ГЭММ и КОЕ - МГЦЭ) - унипотентные предшественники, (КОЕ - МГЦ) - мегакариобласт - промегакариоцит - мегакариоцит.
4. На самых ранних этапах онтогенеза клетки крови образуются за пределами зародыша, в мезенхиме желточного мешка, где формируются скопления - кровяные островки. Центральные клетки островков округляются и преобразуются в стволовые кроветворные клетки. Периферические клетки островков растягиваются в полоски, связанные между собой клетки и образуют эндотелиальную выстилку первичных кровеносных сосудов (сосудистая сеть желточного мешка). Часть стволовых клеток превращается в крупные базофильные бластные клетки - первичные кровяные клетки. Большая часть этих клеток, интенсивно размножаясь все сильнее окрашивается кислыми красителями. Это происходит в связи с синтезом и накоплением в цитоплазме гемоглобина, а в ядре конденсированного хроматина. Такие клетки называют первичными эритробластами. В некоторых первичных эритробластах распадается и исчезает ядро. Образующаяся генерация ядерных и безъядерных первичных эритроцитов разнообразна по размерам, однако чаще всего встречаются крупные клетки - мегалобласты и мегалоциты. Мегалобластический тип кроветворения характерен для эмбрионального периода.
Часть первичных кровяных клеток преобразуется в популяцию вторичных эритроцитов, а вне сосудов развивается небольшое количество гранулоцитов - нейтрофилов и эозинофилов, т. е. происходит миелопоэз.
Возникшие в желточном мешке стволовые клетки с кровью переносятся в органы организма. После закладки печени она становится универсальным органом кроветворения (развиваются вторичные эритроциты, зернистые лейкоциты и мегакариоциты). К концу внутриутробного периода кроветворение в печени прекращается.
На 7-8 неделе эмбрионального развития (у крупного рогатого скота) из стволовых клеток в развивающемся тимусе дифференцируются лимфоциты тимуса и мигрирующие из него Т-лимфоциты. Последние заселяют Т-зоны селезенки и лимфатических узлов. В начале своего развития селезенка также является органом, в котором образуются все виды форменных элементов крови.
На последних стадиях эмбрионального развития у животных основные кроветворные функции начинает выполнять красный костный мозг; в нем образуются эритроциты, гранулоциты, кровяные пластинки, часть лимфоцитов (В-л). В постэмбриональный период красный костный мозг становится органом универсального гемопоэза.
Во время эмбрионального эритроцитопоэза идет характерный процесс смены генераций эритроцитов, отличающихся морфологией и типом образующегося гемоглобина. Популяция первичных эритроцитов образует эмбриональный тип гемоглобина (Нв - F). на последующих стадиях эритроциты в печени и селезенке содержат плодный ( фетальный) тип гемоглобина (Нв-Г). В красном костном мозге образуются дефинитивный тип эритроцитов с третьим типом гемоглобина (Нв-А и Нв-А 2). Разные типы гемоглобинов отличаются составом аминокислот в белковой части.
клетка эмбриогенез ткань гистология цитология
Собственно соединительная ткань
1. Рыхлая и плотная соединительная ткань.
2. Соединительная ткань со специальными свойствами: ретикулярная, жировая, пигментная.
1. Широко распространенные в организме животных ткани с сильно развитой в межклеточном веществе системой волокон, благодаря которым эти ткани выполняют разносторонние механические и формообразующие функции - формируют комплекс перегородок, трабекул или прослоек внутри органов, входят в состав многочисленных оболочек, образуют капсулы, связки, фасции, сухожилия.
В зависимости от количественного соотношения между компонентами межклеточного вещества - волокнами и основным веществом и в соответствии с типом волокон различают три вида соединительных тканей: рыхлую соединительную ткань, плотную соединительную ткань и ретикулярную ткань.
Основными клетками, создающими вещества, необходимые для построения волокон в рыхлой и плотной соединительной ткани, являются фибробласты, в ретикулярной ткани - ретикулярные клетки. Рыхлая соединительная ткань отличается особенно большим разнообразием клеточного состава.
Рыхлая соединительная ткань является наиболее распространенной. Она сопровождает все кровеносные и лимфатические сосуды, формирует многочисленные прослойки внутри органов и т. д. Состоит она из разнообразных клеток, основного вещества и системы коллагеновых и эластических волокон. В составе данной ткани различают более оседлые клетки (фибробласты - фиброциты, липоциты), подвижные (гистиоциты - макрофаги, тканевые базофилы, плазмоциты)- рис.9.
Главные функции этой соединительной ткани: трофическая, защитная и пластическая.
Разновидности клеток: Адвентициальные клетки - малодифференцированы, способны к митотическому делению и превращению в фибробласты, миофибробласты и липоциты. Фибробласты - основные клетки, принимающие непосредственное участие в формировании межклеточных структур. В ходе зародышевого развития фибробласты возникают непосредственно из мезенхимных клеток. Различают три разновидности фибробластов: малодифференцированные (функция: синтез и секреция гликозаминогликанов); зрелые (функция: синтез проколлагена, проэластина, ферментных белков и гликозаминогликанов, особенно - синтез белка коллагеновых волокон); миофибробласты, способствующие закрытию раны. Фиброциты утрачивают способность к делению, снижают синтетическую активность. Гистиоциты (макрофаги) относятся к системе мононуклеарных фагоцитов (СМФ). Об этой системе речь будет идти в следующей лекции. Тканевые базофилы (лаброциты, тучные клетки), располагаясь вблизи мелких кровеносных сосудов, они одни из первых клеток реагируют на проникновение антигенов из крови.
Плазмоциды - в функциональном отношении - эффекторные клетки иммунологических реакций гуморального типа. Это высокоспециализированные клетки организма, синтезирующие и выделяющие основную массу разнообразных антител (иммуноглобулинов).
Межклеточное вещество рыхлой соединительной ткани составляет значительную её часть. Представлено оно коллагеновыми и эластическими волокнами и основным (аморфным) веществом.
Аморфное вещество - продукт синтеза клеток соединительной ткани (преимущественно фибробластов) и поступлением веществ из крови, прозрачная, слегка желтоватая, способная менять свою консистенцию, что существенно отражается на его свойствах.
В его состав входят гликозаминогликаны (полисахариды), протеогликаны, гликопротеиды, вода и неорганические соли. Важнейшим химическим высокополимерным веществом в этом комплексе является несульфатированная разновидность гликозаминогликанов - гиалуроновая кислота.
Коллагеновые волокна состоят из фибрилл, образованных молекулами белка тропоколлагена. Последние являются своеобразными мономерами. Образование фибрилл - результат характерной группировки мономеров в продольном и поперечном направлении.
В зависимости от аминокислотного состава и формы объединения цепей в тройную спираль различают четыре основных типа коллагена, имеющих различную локализацию в организме. Коллаген I типа содержится в соединительной ткани кожи, сухожилий и в костях. Коллаген II типа - в гиалиновом и волокнистом хрящах. Коллаген II? типа - в коже зародышей, стенке кровеносных сосудов, связках. Коллаген IV типа - в базальных мембранах.
Выделяют два способа образования коллагеновых волокон: внутриклеточный и внеклеточный синтез.
Эластические волокна - это гомогенные нити, формирующие сеть. Не объединяются в пучки, обладают малой прочностью. Различают более прозрачную аморфную центральную часть, состоящую из белка эластина, и периферическую, состоящую из микрофибрилл гликопротеидной природы, имеющих форму трубочек. Эластические волокна образуются, благодаря синтетической и секреторной функции фибробластов. Считается, что вначале в непосредственной близости от фибробластов образуется каркас из микрофибрилл, а затем усиливается образование аморфной части из предшественника эластина - проэластина. Молекулы проэластина под влиянием ферментов укорачиваются и превращаются в молекулы тропоэластина. Последние при образовании эластина соединяются между собой с помощью десмозина, отсутствующего в других белках. Преобладают эластические волокна в затылочно-шейной связке, брюшной желтой фасции.
Плотная соединительная ткань. Эта ткань характеризуется количественным преобладанием волокон над основным веществом и клетками. В зависимости от взаимного расположения волокон и образованных из низ пучков сетей различают две основные разновидности плотной соединительной ткани: неоформленную (дерма) и оформленную (связки, сухожилия).
2. Ретикулярная ткань состоит из отростчатых ретикулярных клеток и ретикулярных волокон (рис.10). Ретикулярная ткань образует строму кроветворных органов, где в комплексе с макрофагами создает микроокружение, обеспечивающее размножение, дифференциацию и миграцию разных форменных элементов крови.
Ретикулярные клетки развиваются из мезенхимоцитов и имеют сходство с фибробластами, хондробластами и др. Ретикулярные волокна - производные ретикулярных клеток и представляют тонкие ветвящиеся волокна, образующие сеть. В их составе различные по диаметру фибриллы, заключенные в межфибриллярное вещество. Фибриллы состоят из коллагена III типа.
Жировая ткань образуется жировыми клетками (липоцитами). Последние специализированы на синтезе и накоплении в цитоплазме запасных липидов, главным образом, триглицеридов. Липоциты широко распространены в рыхлой соединительной ткани. В эмбриогенезе жировые клетки возникают из клеток мезенхимы.
Предшественниками для образования новых жировых клеток в постэмбриональный период являются адвентициальные клетки, сопровождающие кровеносные капилляры.
Различают две разновидности липоцитов и собственно два типа жировой ткани: белую и бурую. Белая жировая ткань содержится в организме животных неодинаково в зависимости от вида и породы. Её много в жировых депо. Общее количество ее в организме животных различных видов, пород , пола, возраста, упитанности колеблется от 1 до 30% к жировой массе. Жир как источник энергии (1 г жира =39 кДж), депо воды, амортизатор.
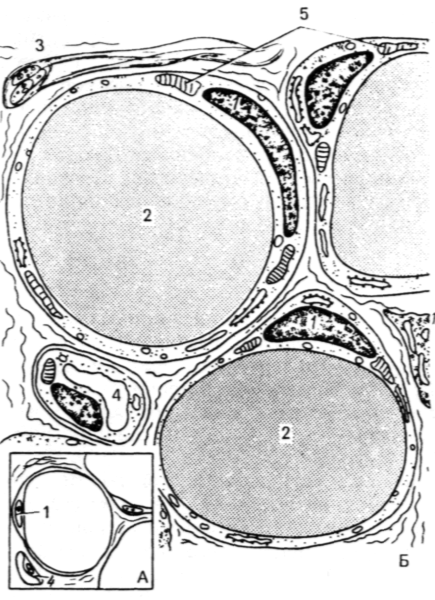
Рис. 11. Строение белой жировой ткани (схема по Ю.И.Афанасьеву)
А — адипоциты с удаленным жиром в световом оптическом микроскопе; Б — ультрамикроскопическое строение адипоцитов. 1 — ядро жировой клетки; 2 — крупные капли липидов; 3 — нервные волокна; 4 — гемокапилляры; 5 — митохондрии.
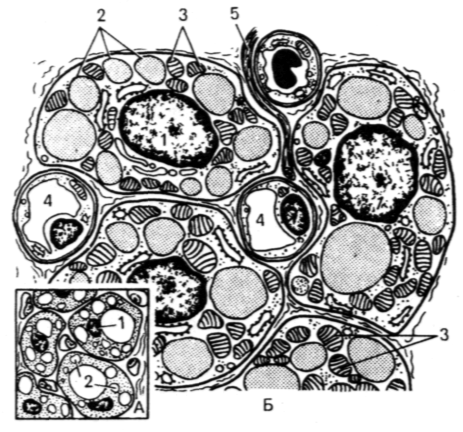
Рис. 12. Строение бурой жировой ткани (схема по Ю.И.Афанасьеву)
А — адипоциты с удаленным жиром в световом оптическом микроскопе; Б — ультрамикроскопическое строение адипоцитов. 1 — ядро адипоцита; 2 — мелко раздробленные липиды; 3 — многочисленные митохондрии; 4 — гемокапилляры; 5 — нервное волокно.
Бурая жировая ткань в значительном количестве имеется у грызунов и животных, впадающих в зимнюю спячку; а также у новорожденных других видов. Клетки, окисляясь, образуют тепло, идущее на терморегуляцию.
Пигментные клетки (пигментоциты) имеют в цитоплазме много темно-коричневых или черных зерен пигмента из группы меланинов.
Иммунная система и клеточные взаимодействия в иммунных реакциях
1. Понятие об антигенах и антителах, их разновидности.
2 Понятие о клеточном и гуморальном иммунитете.
3 Генез и взаимодействие Т- и В-лимфоцитов.
4 Мононуклеарная система макрофагов.
1. В промышленном животноводстве в условиях концентрации и интенсивной эксплуатации поголовья, стрессовых воздействий техногенных и других факторов окружающей среды значительно возрастает роль профилактики заболеваний животных, особенно молодняка, обусловленных воздействием разнообразных агентов заразной и незаразной природы на фоне понижения естественных защитных способностей организма.
В связи с этим большое значение приобретает проблема контроля физиологического и иммунологического состояния животных с целью своевременного повышения их общей и специфической устойчивости (Цымбал А.М., Конаржевский К.Е. и др., 1984).
Иммунитет (immunitatis - освобождение от чего-либо) - это защита организма от всего генетически чужеродного - микробов, вирусов, от чужеродных клеток. или генетически измененных собственных клеток.
Иммунная система объединяет органы и ткани, в которых происходит образование и взаимодействие клеток - иммуноцитов, выполняющих функцию распознавания генетически чужеродных субстанций (антигенов) и осуществляющих специфическую реакцию.
Антигены - это сложные органические вещества, способные при поступлении в организм человека и животных вызывать специфический иммунный ответ. Свойствами антигенов обладают бактерии, вирусы, паразиты, чужеродные клетки, а также продукты жизнедеятельности чужеродных клеток - белки, полисахариды, полипептиды.
Антитела - это сложные белки, находящиеся в иммуноглобулиновой фракции плазмы крови животных, синтезируемые плазматическими клетками под воздействием различных антигенов. Изучено несколько классов иммуноглобулинов (Y, M, A, E, D).
При первой встрече с антигеном (первичный ответ) лимфоциты стимулируются и подвергаются трансформации в бластные формы, которые способны к пролиферации и дифференцировке в иммуноциты. Дифференцировка приводит к появлению двух типов клеток - эффекторных и клеток памяти. Первые непосредственно участвуют в ликвидации чужеродного материала. К эффекторным клеткам относят активированные лимфоциты и плазматические клетки. Клетки памяти - это лимфоциты, возвращающиеся в неактивное состояние, но несущие информацию (память) о встрече с конкретным антигеном. При повторном введении данного антигена они способны обеспечивать быстрый иммунный ответ (вторичный ответ) вследствие усиленной пролиферации лимфоцитов и образования иммуноцитов.
2. В зависимости от механизма уничтожения антигена различают клеточный иммунитет и гуморальный иммунитет.
При клеточном иммунитете эффекторными (двигательными) клетками являются цитотоксические Т-лимфоциты, или лимфоциты-киллеры (убийцы), которые непосредственно учавствуют в уничтожении чужеродных клеток других органов или патологических собственных клеток (например, опухолевых) и выделяют литические вещества.
При гуморальном иммунитете эффекторными клетками являются плазматические клетки, которые синтезируют и выделяют в кровь антитела.
В становлении клеточного и гуморального иммунитета в организме человека и животных большую роль играют клеточные элементы лимфоидной ткани, в частности Т- и В-лимфоциты. Сведения о популяциях этих клеток в крови крупного рогатого скота немногочисленны. По данным Корчана Н.И. (1984), телята рождаются с относительно зрелой системой В-лимфоцитов и недостаточно развитой системой В-лимфоцитов и регуляторными взаимоотношениями между этими клетками. Лишь к 10-15 дню жизни показатели систем этих клеток приближаются к показателям у взрослых животных.
Иммунная система в организме взрослого животного представлена: красным костным мозгом - источником стволовых клеток для иммуноцитов, центральными органами лимфоцитопоэза (тимус), периферическими органами лимфоцитопоэза (селезенка, лимфатические узлы, скопление лимфоидной ткани в органах), лимфоцитами крови и лимфы, а также популяциями лимфоцитов и плазмоцитов, проникающими во все соединительные и эпителиальные ткани. Все органы иммунной системы функционируют как единое целое благодаря нейрогуморальным механизмам регуляции, а также постоянно совершающимся процессам миграции и рециркуляции клеток по кровеносной и лимфатической системам. Главными клетками, осуществляющими контроль и иммунологическую защиту в организме, являются лимфоциты, а также плазматические клетки и макрофаги.
3. Различают две основные разновидности лимфоцитов: В-лимфоциты и Т-лимфоциты. Стволовые клетки и клетки-предшественники В-лимфоцитов образуются в костном мозге. У млекопитающих здесь же происходит дифференцировка В-лимфоцитов, характеризующаяся появлением у клеток иммуноглобулиновых рецепторов. Далее такие дифференцированные В-лимфоциты поступают в периферические лимфоидные органы: селезенку, лимфатические узлы, лимфатические узелки пищеварительного тракта. В этих органах при действии антигенов происходит пролиферация и дальнейшая специализация В-лимфоцитов с образованием эффекторных клеток и В-клеток памяти.
Т-лимфоциты также развиваются из стволовых клеток костно-мозгового происхождения. Последние переносятся с током крови в тимус, превращаются в бласты, которые делятся и дифференцируются в двух направлениях. Одни бласты образуют популяцию лимфоцитов, обладающих специальными рецепторами, воспринимающими чужеродные антигены. Дифференцировка этих клеток происходит под влиянием индуктора дифференцировки, вырабатываемого и выделяемого эпителиальными элементами тимуса. Образующиеся в результате Т-лимфоциты (антигенреактивные лимфоциты) заселяют специальные Т-зоны (тимус-зависимые) в периферических лимфоидных органах. Там под влиянием антигенов они могут подвергаться трансформации в Т-бласты, пролиферировать и дифференцироваться в эффекторные клетки, участвующие в трансплантационном (Т-киллеры) и гуморальном иммунитете (Т-хелперы и Т-супрессоры), а также в Т-клетки памяти. Другая часть потомков Т-бластов дифференцируются с образованием клеток, несущих рецепторы к антигенам собственного организма. Эти клетки подвергаются разрушению.
Таким образом, необходимо различать антигеннезависимую и антигензависимую пролиферацию, дифференцировку и специализацию В- и Т-лимфоцитов.
В случае формирования клеточного иммунитета при действии тканевых антигенов дифференцировка Т-лимфобластов приводит к появлению цитотоксических лимфоцитов (Т-киллеры) и Т-клеток памяти. Цитотоксические лимфоциты способны разрушать чужеродные клетки (клетки-мишени) или посредством выделяемых ими особых веществ-медиаторов (лимфокинов).
При формировании гуморального иммунитета большинство растворимых и других антигенов также оказывают стимулирующее влияние на Т-лимфоциты; при этом формируются Т-хелперы, которые выделяют медиаторы (лимфокины), взаимодействующие с В-лимфоцитами и вызывающие их трансформацию в В-бласты, специализирующиеся в секретирующие антитела плазматической клетки. Пролиферация стимулированных антигеном Т-лимфоцитов приводит также к увеличению числа клеток, которые превращаются в неактивные малые лимфоциты, сохраняющие в течение нескольких лет информацию о данном антигене и поэтому называющиеся Т-клетками памяти.
Т-хелпер обусловливает специализацию В-лимфоцитов в направлении формирования антителобразующих плазмоцитов, которые обеспечивают “гуморальный иммунитет”, вырабатывая и выделяя в кровь иммуноглобулины. Одновременно В-лимфоцит получает антигенную информацию от макрофага, который захватывает антиген, перерабатывает его и передает В-лимфоциту. На поверхности В-лимфоцита расположено большее количество иммуноглобулиновых рецепторов (50-150 тыс).
Таким образом, для обеспечения иммунологических реакций необходима кооперация деятельности трех основных типов клеток: В-лимфоцитов, макрофагов и Т-лимфоцитов (рис.13).
4. Макрофаги играют важную роль как в естественном, так и в приобретенном иммунитете организма. Участие макрофагов в естественном иммунитете проявляется в их способности к фагоцитозу. Их роль в приобретенном иммунитете заключается в пассивной передаче антигена иммунокомпетентным клеткам (Т- и В-лимфоцитам), в индукции специфического ответа на антигены.
Выделяемая макрофагами большая часть переработанного материала антигенов оказывает стимулирующее влияние на пролиферацию и дифференцировку клонов Т- и В-лимфоцитов.
В В-зонах лимфатических узлов и селезенки имеются специализированные макрофаги (дендритные клетки), на поверхности многочисленных отростков которых сохраняются многие антигены, попадающие в организм и передающиеся соответствующим клонам В-лимфоцитов. В Т-зонах лимфатических фолликулов расположены интердигитирующие клетки, влияющие на дифференцировку клонов Т-лимфоцитов.
Таким образом, макрофаги принимают непосредственное участие в кооперативном взаимодействии клеток (Т- и В-лимфоцитов) в иммунных реакциях организма.
Различают два типа миграции клеток иммунной системы: медленный и быстрый. Первый более типичен для В-лимфоцитов, второй - для Т-лимфоцитов. Процессы миграции и рециркуляции клеток иммунной системы обеспечивают поддержание иммунного гомеостаза.
Смотрите также учебное пособие «Методы оценки защитных систем организма млекопитающих» (Кацы Г.Д., Коюда Л.И. - Луганск.-2003.- с.42-68).
Скелетные ткани: хрящевая и костная
1. Развитие, строение и разновидности хрящевой ткани.
2. Развитие, строение и разновидности костной ткани.
1. Хрящевая ткань - специализированный вид соединительной ткани, выполняющий опорную функцию. В эмбриогенезе она развивается из мезенхимы и формирует скелет зародыша, который в последующем в большей части замещается костью. Хрящевая ткань, за исключением суставных поверхностей, покрыта плотной соединительной тканью - надхрящницей, содержащей сосуды, питающие хрящ и его камбиальные ( хондрогенные) клетки.
Хрящ состоит из клеток хондроцитов и межклеточного вещества. В соответствии с характеристикой межклеточного вещества различают три вида хрящей: гиалиновый, эластический и волокнистый.
В процессе эмбрионального развития зародыша мезенхима, интенсивно развиваясь, образует островки плотно прилегающих друг к другу клеток протохондральной ткани. Ее клетки характеризуются высокими значениями ядерно-цитоплазматических отношений, мелкими плотными митохондриями, обилием свободных рибосом, слабым развитием гранулярной ЭПС и т. д. В процессе развития из этих клеток формируется первичная хрящевая (прехондральная) ткань.
По мере накопления межклеточного вещества клетки развивающегося хряща изолируются в отдельных полостях (лакунах) и дифференцируются в зрелые хрящевые клетки - хондроциты.
Дальнейший рост хрящевой ткани обеспечивается продолжающимся делением хондроцитов и формированием между дочерними клетками межклеточного вещества. Образование последнего со временем замедляется. Дочерние клетки, оставаясь в одной лакуне, образуют изогенные группы клеток (Isos -равный, genesis - происхождение).
По мере дифференцировки хрящевой ткани интенсивность размножения клеток падает, ядра пиктонизируются, ядрышковый аппарат редуцируется.
Гиалиновый хрящ. Во взрослом организме гиалиновый хрящ входит в состав ребер, грудины, покрывает суставные поверхности и т. д. (рис.14).
Клетки хряща - хондроциты - различных его зон имеют свои особенности. Так, непосредственно под надхрящницей локализованы незрелые хрящевые клетки - хондробласты. Они овальной формы, цитоплазма богата РНК. В более глубоких зонах хряща хондроциты округляются, образуют характерные “изогенные группы”.
Межклеточное вещество гиалинового хряща содержит до 70% сухого веса фибриллярного белка коллагена и до 30% аморфного вещества, в состав которого входят гликозаминогликаны, протеогликаны, липиды и неколлагеновые белки.
Ориентация волокон межклеточного вещества определяется характерными для каждого хряща закономерностями механической напряженности.
Коллагеновые фибриллы хряща в отличие от коллагеновых волокон других видов соединительной ткани тонкие и не превышают 10 нм в диаметре.
Обмен веществ хряща обеспечивается циркуляцией тканевой жидкости межклеточного вещества, которая составляет до 75% общей массы ткани.
Эластичекий хрящ образует скелет наружного уха, хрящей гортани. В его состав, кроме аморфного вещества и коллагеновых фибрилл, входит плотная сеть эластических волокон. Клетки его идентичны клеткам гиалинового хряща. Они также образуют группы и лишь под надхрящницей лежат одиночно (рис.15).
Волокнистый хрящ локализуется в составе межпозвоночных дисков, в области прикрепления сухожилия к костям. Межклеточное вещество содержит грубые пучки коллагеновых волокон. Клетки хряща образуют изогенные группы, вытянутые в цепочки между пучками коллагеновых волокон (рис.16).
Регенерация хряща обеспечивается надхрящницей, клетки которой сохраняют камбиальность- хондрогенные клетки.
2. Костная ткань, как и другие виды соединительной ткани, развивается из мезенхимы и состоит из клеток и межклеточного вещества. Выполняет функцию опоры, защиты и активно участвует в обмене веществ. В губчатом веществе костей скелета локализован красный костный мозг, где осуществляются процессы кроветворения и дифференцировки клеток иммунной защиты организма. Кость депонирует соли кальция, фосфора и др. В совокупности минеральные вещества составляют 65-70% сухой массы ткани.
Костная ткань содержит четыре различных вида клеток: остеогенные клетки, остеобласты, остеоциты и остеокласты.
Остеогенные клетки - клетки ранней стадии специфической дифференцировки мезенхимы в процессе остеогенеза. Они сохраняют потенцию к митотическому делению. Локализуются эти клетки на поверхности костной ткани: в надкостнице, эндоосте, в гаверсовых каналах и других зонах формирования костной ткани. Размножаясь, они пополняют запас остеобластов.
Остеобласты - клетки, продуцирующие органические элементы межклеточного вещества костной ткани: коллаген, гликозаминогликаны, белки и др.
Остеоциты лежат в особых полостях межклеточного вещества - лакунах, соединенных между собой многочисленными костными канальцами.
Остеокласты - крупные, многоядерные клетки. Они находятся на поверхности костной ткани в местах ее резорбции. Клетки поляризованные. Поверхность, обращенная к резорбируемой ткани, имеет гофрированную каемку за счет тонких ветвящихся отростков.
Межклеточное вещество состоит из коллагеновых волокон и аморфного вещества: гликопротеидов, гликозаминогликанов, белков и неорганических соединений. 97% всего кальция организма сосредоточено в костной ткани.
В соответствии со структурной организацией межклеточного вещества различают грубоволокнистую кость и пластинчатую (рис.17). Грубоволокнистая кость характеризуется значительным диаметром пучков коллагеновых фибрилл и разнообразием их ориентации. Она типична для костей ранней стадии онтогенеза животных. В пластинчатой кости коллагеновые фибриллы не образуют пучков. Располагаясь параллельно, они формируют слои - костные пластинки толщиной 3-7 мкм. В пластинках расположены клеточные полости - лакуны и соединяющие их костные канальца, в которых лежат остеоциты и их отростки. По системе лакун и канальцев циркулирует тканевая жидкость, обеспечивающая обмен веществ в ткани.
В зависимости от положения костных пластинок различают губчатую и компактную костную ткань. В губчатом веществе, в частности в эпифизах трубчатых костей, группы костных пластинок располагаются под разными углами друг к другу. Ячеи губчатого вещества кости содержат красный костный мозг.
В компактном веществе группы костных пластинок 4-15 мкм толщиной плотно прилегают друг к другу. В диафизах формируется три слоя: наружная общая система пластинок, остеогенный слой и внутренняя общая система.
Через наружную общую систему из надкостницы проходят прободающие канальца, несущие в кость кровеносные сосуды и грубые пучки коллагеновых волокон.
В остеогенном слое трубчатой кости каналы остеона, содержащие кровеносные сосуды, нервы, в основном, ориентированы продольно. Система трубкообразных костных пластинок, окружающие эти каналы, - остеоны содержат от4 до 20 пластинок. Остеоны отграничены друг от друга цементной линией основного вещества они являются структурной единицей костной ткани (рис.18).
Внутренняя общая система костных пластинок граничит с эндоостом костной полоси и представлена пластинками, ориентированными параллельно поверхности канала.
Различают два вида остеогенеза: непосредственно из мезенхимы («прямой») и путем замещения костью эмбрионального хряща («непрямой») остеогенез – рис. 19,20.
Первый характерен для развития грубоволокнистой кости черепа и нижней челюсти. Процесс начинается с интенсивного развития соединительной ткани и кровеносных сосудов. Мезенхимные клетки, анастомозируя между собой отростками, образуют сеть. Клетки, оттесненные межклеточным веществом на поверхность, дифференцируются в остеобласты, активно участвующие в остеогенезе. В последующем первичная грубоволокнистая костная ткань замещается пластинчатой костью. Кости туловища, конечностей и др. формируются на месте хрящевой ткани. В трубчатых костях этот процесс начинается в области диафиза формированием под надхрящницей сети