Зрительная система
Рецептивные поля и плотность иннервации механорецепторов
Область, в которой стимул данной интенсивности способен возбудить механочувствительное афферентное волокно, называется его рецептивным полем. Оно приблизительно соответствует анатомической протяженности всех окончаний этого волокна. Например, один афферент связан с двумя-тремя тактильными тельцами оволосненной кожи, а все 30-50 дисков Меркеля такого тельца иннервируются одной коллатералью. Концевые разветвления гораздо протяженнее у рецепторов волосяных фолликулов: каждый афферент может отходить от многих фолликулов, и каждый фолликул иннервируется несколькими афферентными волокнами.
Какие свойства рецепторов определяют пространственное разрешение, измеряемое двухточечным порогом? Согласно результатам различных исследований, величина рецептивного поля здесь не главное; решающую роль играет плотность иннервации (т. е. число афферентных волокон на 1 см2 поверхности кожи). Валлбо с сотрудниками, проведя микронейрографические измерения у людей, пришли к выводу, что пространственному разрешению на разных участках кисти соответствует только плотность афферентов БА и MA. Поскольку человек, как известно, лучше всего распознает предметы на ощупь подвижными пальцами, можно предположить главную роль в этом рецепторов БА.
2.3 Психофизика терморецепции
Терморецепция (температурная чувствительность) кожи включает два качественных типа – чувство холода и чувство тепла. Известно, что в коже человека есть специфические холодовые и тепловые точки, в каждой из которых можно вызвать ощущение только холода или только тепла. Холодовых точек больше, чем тепловых.
Например, на 1 см2 ладони 1-5 холодовых и только 0,4 тепловых. Наибольшая плотность этих точек обнаружена в самой чувствительной к температуре области – на лице; здесь на 1 см2 кожи 16-19 холодовых точек, а одиночных сенсорных точек, реагирующих на тепло, не обнаруживается. Восприятие температурных стимулов, включая сопровождающие их регуляторные реакции, обладает аффективным действием. Иными словами, они могут казаться приятными или неприятными: человек может мерзнуть или чувствовать освежающую прохладу, согреваться или мучиться от жары.
Психофизическое исследование терморецепции
Существует температурный диапазон, в котором при постоянстве температурного стимула мы не ощущаем ни тепла, ни холода; иначе говоря, в этой игральной зоне температурная чувствительность полностью адаптирована. За пределами нейтральной зоны устойчивые температурные ощущения возникают даже при постоянной температуре (ноги могут мерзнуть часами). Верхний и нижний пределы нейтральной зоны для участка кожи площадью 15 см2 равны соответственно 36 и 30 °С.
Устойчивые ощущения тепла и холода
Продолжительное ощущение тепла при температуре кожи выше 36 °С тем сильнее, чем выше эта температура. При температуре около 45 °С чувство тепла сменяется болью от горячего. Когда обширные области охлаждаются до температуры ниже 30 °С, возникает устойчивое ощущение холода; боль от холода возникает при температуре кожи 17 °С и ниже.
Динамические температурные ощущения
Температурные ощущения, испытываемые при изменении температуры кожи, в основном определяются тремя параметрами: ее исходной температурой, скоростью изменения последней и размерами участка, на который действует стимул.
Прохладную кожу (скажем, при 28 °С) нужно только слегка охладить (меньше чем на 0,2 °С), чтобы превратить устойчивое чувство холода в ощущение «стало холоднее». Но тот же участок кожи надо нагреть почти на 1 °С для появления чувства тепла. Аналогичным образом, при исходной температуре кожи 38 °С уже незначительное нагревание (менее чем на 0,2 С) вызывает ощущение «стало теплее», между тем как для появления чувства холода надо охладить кожу приблизительно на 0,8 °С.
Если скорость изменения температуры превышает примерно 5 °С/мин, это мало влияет на тепловой или холодовой пороги; при более медленных ее изменениях оба будут постепенно повышаться. Например, если кожа охлаждается на 0,4°С/мин, начиная от температуры 33,5 °С, для появления чувства холода понадобится 11 мин; за это время температура упадет на 4,4 °С. Когда охлаждение идет очень медленно, человек может не заметить, как обширные участки кожи стали совсем холодными (при одновременной потере тепла телом), особенно если его внимание отвлечено чем-то другим. Предположительно этот фактор действует, когда человек простужается.
2.4 Терморецепторы
Реакции при постоянной температуре кожи
При переходе примерно от 30 до 43 °С частота импульсации у тепловых рецепторов возрастает, а затем резко падает; в пороговой области ощущения боли от горячего (приблизительно 45 °С) тепловые рецепторы обычно невозбудимы. Частота импульсации холодовых рецепторов повышается по мере падения температуры от 33-40°С и достигает максимума при 17-26 °С (у разных рецепторов). Из-за этого максимума каждая частота разрядов связана с двумя температурами, но тем не менее ЦНС может правильно распознавать холод и на отрезке ниже 17°С.
Реакции при изменении температуры кожи
Сравнение показывает, что частота импульсации зависит не только от температуры (пропорциональный рецептор), но и от скорости ее изменения (дифференциальный рецептор). Поведение тепловых рецепторов при изменениях температуры как в зеркале отражает поведение холодовых: при нагревании их импульсация растет выше стационарного уровня, а при охлаждении падает ниже него, после чего возвращается к этому уровню. Температурные пределы динамической чувственности терморецепторов отличаются от установленных для статической. Например, при охлаждении кожи ниже максимума статической импульсации холодового рецептора динамическая частота его импульсации повышается, несмотря на решение ее статического уровня.
Следовательно, в целом выгоднее иметь и тепловые, и холодовые терморецепторы, а не дородную их популяцию, поскольку это дает ДНС значительно более детальную информацию о термических процессах в коже.
2.5 Висцеральная чувствительность
Спинномозговые и некоторые черепномозговые нервы содержат афференты, идущие от внутренних органов. Главные периферические рвы, в которых они проходят, - блуждающий, внутренностньй и тазовый. Эфферентные волокна их нервов относятся к парасимпатической и симпатической системам, а афферентные – к другой.
Информация, проводимая висцеральными афферентами, используется главным образом для вегетативных регуляторних процессов, управляющих кровообращением, дыханием, пищеварением, электролитическим и водным балансами.
Активность висцеральных афферентов до которой степени воспринимается сознательно. Это могут быть ощущения, обусловленные непосредственно данными волокнами или же вызванные опосредованно рефлексами с их участием. По логике вещей висцеральные афференты действуют на наше сознание тем сильнее, чем больше мы способны противодействовать регуляторным нарушениям сознательными поведенческими реакциями. Сильная, потенциально вредная стимуляция внутренних органов воспринимается как боль; при недостаточном потреблении пищи или воды активность висцеральных афферентов (например, глюкозных рецепторов или осморецепторов) вызывает «общие» ощущения голода или жажды; заполнение мочевого пузыря в конце концов побуждает нас его опорожнить. В диапазоне между этими конкретными восприятиями и полностью бессознательными регуляторными реакциями висцеральные афференты вызывают также неспецнфичные приятные или неприятные ощущения, в общем определяемые как самочувствие и обычно сильно влияющие на эмоциональное состояние.
Сердечно-сосудистая система
В регуляции давления и объема крови участвуют механорецепторы в аорте, сонной артерии и предсердиях. Их непрерывную активность мы не осознаем. Однако в некоторых особых ситуациях нами ощущается собственная сердечная деятельность, например при сильном физическом или психическом напряжении. В этом восприятии сердцебиений, вероятно, также участвуют механорецепторы в коже и мышцах, возбуждаемые значительными изменениями формы и положения сердца, а также пульсацией артерий. Речь идет о непрямом восприятии активности висцеральных афферентов через запускаемые ими рефлексы.
Легочная система
Афференты, регулирующие дыхание, - это прежде всего хеморецепторы в артериальной системе и, возможно, также в мозге, возбуждающиеся понижением парциального давления О2 и повышением его у СО2. Активность этих рецепторов тоже, как правило, не ощущается. Только когда парциальное давление СО2 резко возрастает и/или воздухоносные пути перекрываются (например, при астме), человек чувствует, как задыхается. Снижение парциального давления О2 из-за недостатка кислорода во вдыхаемом воздухе (например, при восхождения на высокую гору или при падении давления в кабине самолета) не ощущается, даже если оно настолько сильно, что вызывает полубессознательное состояние. Следовательно, непосредственное участие хеморецепторов, анализирующих кровоток, в появлении одышки маловероятно; воспринимается скорее недостаток двигательного выполнения дыхательной программы. Ритмичные дыхательные движения осознаются, вероятно, благодаря возбуждению многих механорецепторов в грудном скелетно-мышечном аппарате и коже.
Желудочно-кишечная система
По своему эмбриологическому происхождению желудочно-кишечный тракт-часть поверхности тела. Их функциональное соответствие заключается в том, что при переработке проглоченной пищи на желудок и кишки действует множество стимулов, возникающих во внешней среде. Как и следовало ожидать, механические, тепловые и химические стимулы воспринимаются желудочно-кишечной системой сильнее, чем другими внутренними органами. Особенно отчетливо она реагирует на растяжение; это можно доказать экспериментальным раздуванием баллона, введенного в пищеварительный тракт при помощи катетера. Растяжение желудка вызывает чувство наполнения, или сытости, растяжение кишечника – чувство закупорки (как при кишечных газах). В таких опытах с надуваемым баллоном стимулы иногда ошибочно локализуются испытуемым в зонах Геда на поверхности кожи. Сильная стимуляция желудочно-кишечной системы растяжением ощущается как боль, особенно когда вызывает контрактуру гладкой мускулатуры.
Тепловые и химические стимулы воспринимаются главным образом в пищеводе и прямой кишке. Судя по наблюдениям, сделанным в то время, когда операции на органах брюшной полости производились без наркоза, прикосновение к желудочно-кишечным структурам и их пальпация не осознаются.
Почечная система
В области почек и мочеточников человек способен ощущать только боль. Однако, если мочевой пузырь настолько наполнен, что растягивается, возникает потребность его опорожнить, обусловливающая произвольное мочеиспускание.
2.6 Проприоцепция
Восприятие позы и движения нашего собственного тела называется проприоцепцией (а также глубокой, или кинестетической, чувствительностью). Поза определяется углом расположения костей в каждом суставе, устанавливаемым либо пассивно (внешними силами), либо активно (мышечным сокращением). Рецепторы проприоцепции находятся не только в суставах, но также в мышцах сухожилиях и коже. С их работой сочетаются сигналы от вестибулярного органа, что позволяет определять положение тела в поле земного притяжения. Все эти проприоцепторы участвуют также и в нашей сознательной и бессознательной двигательной активности.
Типы проприоцепции
Чувство позы. Даже с закрытыми глазами мы осознаем углы между костями в наших суставе а значит, и относительное положение частей тела. Эту способность легко продемонстрировать на простых опытах, выполняемых испытуемыми с закрытыми глазами. Если конечности на одной стороне тела пассивно или активно придано какое-нибудь положение (например, рука согнута в локте), испытуемый может точно воспроизвести его конечностью на другой стороне. Если попросить его показать на себе определенный участок тела, он сможет это сделать с очень небольшой ошибкой.
Чувство движения. При изменении положения сустава мы воспринимаем и направление, и скорость этого движения. Амплитудный порог такого восприятия зависит от угловой скорости.
Чувство силы. Благодаря ему мы воспринимаем степень мышечного усилия, нужного для выполнения движения или поддержания позы (например, для разных гравитационных нагрузках), и достаточно хорошо оцениваем вес предметов, поднимая их рукой. Сравнивая вес двух предметов, одновременно поднимаемых обеими руками, мы воспринимаем разницу уже на уровне 3-10%. Если сравниваемые предметы положить на руки, а те на подставку, оценки веса, основанные теперь на афферентной информации от кожных рецепторов, будут значительно менее точны.
Проприоцепторы
Сознательное восприятие движения и положения суставов, по-видимому, обусловлено одновременным действием различных механорецепторов: суставных и кожных рецепторов, мышечных веретен, сухожильных органов. С этим согласуется и то, что соматосенсорное ядро таламуса (вентробазальный юмплекс) и соматосенсорная кора получают информацию от всех перечислении выше их типов. В последние годы возникли некоторые разногласия по поводу относительного участия в восприятии каждого из них.
Долго считалось, что проприоцепция обусловлена главным образом суставными рецепторами. Эти механорецепторы в суставных капсулах кодируют различные положения или движения суставов. Однако их предполагаемая особая роль в проприоцепции стала оспариваться, когда было установлено, что больные с искусственными суставами различает их положение почти так же, как обычные люди. Более поздние психофизические опыты по восприятию положения и движения суставов подтвердили гипотезу, согласно которой важнейшую роль в нем играют мышечные веретена. Воздействуя на мышцы и сухожилия вибрацией, активирующей главным образом мышечные веретена и сухожильные органы, можно вызывать иллюзии движения в суставах, сбивающие испытуемых с толку.
Вывод, вытекающий из многочисленных психофизических исследований и клинических наблюдений, состоит в том, что для проприоцепции ЦНС использует всю доступную ей нервную информацию. По всей вероятности, афферентные сигналы от мышечных веретен, сухожильных органов, суставных и кожных рецепторов интегрируются, а это приводит к сложному восприятию положения и движения тела. Эфферентная двигательная информация, например команды от двигательной коры, скорее всего, также используется в этом процессе в виде копии эфферентации.
2.7 Функциональный и анатомический обзор центральной соматосенсорной системы
Центральную переработку сигналов от периферических рецепторов можно рассматривать на трех функциональных уровнях - афферентной, интегративной и эфферентной подсистем. Афферентный, или сенсорный, уровень соматовисцеральной системы связан со спинным мозгом, стволом мозга, таламусом и корой больших полушарий. Действуют различные проводящие пути, позволяющие перерабатывать информацию параллельно, используя ее для выполнения разных функций. Периферическая сенсорная поверхность (совокупность всех рецепторов вне ЦНС) проецируется на таламус и кору таким образом, что упорядочение (соматотопически) картируется в ЦНС. Следующие этапы центральной нервной переработки информации соответствуют интегративному и эфферентному уровням. Ассоциативная и лимбическая системы выполняют главным образом интегративные функции. Одна из важнейших задач этих систем—сопряжение сигналов от различных сенсорных систем с информацией, хранящейся в памяти. Двигательная и вегетативная системы выполняют эфферентные функции. Сложные взаимодействия трех функциональных подсистем, по-видимому, лежат в основе поведения. Оно в присутствии сенсорных стимулов делится на восприятия и реакции с пятью компонентами: когнитивным (включающим осознанное различение), аффективным (связанным с эмоциями), мотивационным (связанным с побуждениями, или драйвами), двигательным и вегетативным.
Дихотомия в восходящей центральной соматовисцеральной системе Афферентные нервные волокна от туловища и конечностей идут в спинной мозг по спинномозговым нервам, а от лица – в ствол мозга по тройничному нерву. Сигналы от рецепторов различным образом используются в обоих этих центральных отделах для двигательных и вегетативных рефлексов, а также передаются в высшие отделы головного мозга по системам восходящих волокон. На рисунке 2.3 для общей ориентации в таких связях дана сильно упрощенная их схема.
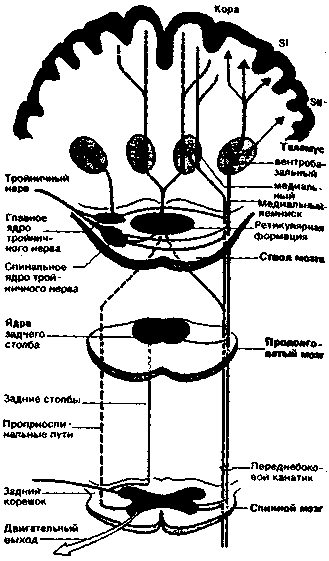
Рис. 2.3. Анатомическая организация главных функциональных элементов соматосенсорной системы (схема).
Соматосенсорная информация передается по двум главным системам восходящих трактов, различающихся как анатомически, так и функционально. Это системы:
- заднего столба, или лемнисковая;
- переднебокового канатика.
Главные связи в обеих системах служат для соединения каждой стороны тела с противоположной (контралатеральной) половиной головного мозга. Функционально система заднего столба связана с кожной механорецепцией и проприоцепцией, а система переднебокового канатика – главным образом с терморецепцией и ноцицепцией. Хотя в спинном мозгу обнаружены дополнительные восходящие пути соматосенсорной информации, полезно сохранять именно такое деление, основанное на двух главных системах трактов.
Последствия повреждения спинного мозга
Когда спинной мозг только «надорван» с одной стороны (например, при несчастном случае), прерывание трактов в его белом веществе вызывает характерный неврологический дефицит, синдром Броун-Секара. Он заключается в сенсорных нарушениях с обеих сторон тела ниже уровня повреждения с параличом произвольных движений на ипсилатеральной стороне. Сенсорная недостаточность с двух сторон тела неодинакова: испилатерально нарушено осязание (повышен, например, двухточечный порог, а контралатерально-восприятие боли и тепловых стимулов. В то же время ипсилатеральные ноцицепция и терморецепция, как и контралатеральное осязание, нормальные. Поэтому такой эффект называется диссоциированным сенсорным дефицитом.
Он обусловлен разрывом трактов в белом веществе. Блокада нисходящих двигательных путей (например, пирамидного тракта) вызывает ипсилатеральный паралич произвольных движений, повреждение заднего столба нарушает ипсилатеральное осязание, а переднебокового канатика – контралатеральные ноцицепцию и терморецепцию. Сенсорная информация от определенной области кожи идет по заднему столбу и переднему канатику с обоих сторон, но на уровне головного мозга в случае обоих этих сенсорных путей она воспринимается преимущественно контралатерально той стороне тела, на которой действует стимул.
Система заднего столба
Название этой системы отражает тот факт, что сенсорные сигналы передаются по заднему столбу (или канату), т.е. массивному пучку волокон в дорсальном белом веществе спинного мозга. Он состоит из прямых коллатералей толстых миелинизированных афферентов спинномозговых нервов. Другое название – лемнисковая система – обусловлено тем, что выше спинного мозга ее сигналы проводятся по медиальному лемниску (медиальной петле). Эта восходящая соматосенсорная подсистема соединяет спинномозговые и тройничные механорецептивные афференты с двумя анатомически и нейрофизиологически разделенными участками теменной коры – первой и второй соматосенсорными областями.
Афференты в системе заднего столба идут от низкопороговых кожных механорецепторов (МА, БА и ТП), мышечных веретен, сухожильных органов и суставных рецепторов. Проведение в этом восходящем пути быстрое, поскольку здесь только три синаптических переключения. Он состоит из следующих основных частей (рис. 2.3): задних столбов спинного мозга, ядер заднего столба в продолговатом мозгу (первый синапс), медиального лемниска, перекреста (переход путей на другую сторону), вентробазалъного ядра таламуса (второй синапс), корковых областей SI и SII (третий синапс). Тройничные коллатерали образуют синапсы в главном тройничном ядре ствола мозга, соответствующем ядрам заднего столба. После перекреста проводящий путь продолжается по медиальному лемниску к таламусу.
Особое свойство системы заднего столба – упомянутая выше соматотопическая организация, т.е. примерное сохранение топографических связей разных областей кожи (периферической сенсорной поверхности) во всех центральных зонах переключения. Это приводит к геометрически искаженному картированию, или проецированию, первых на вторые, подобные тому, которое свойственно зрительной и слуховой системам.
Система заднего столба особенно хорошо развита у приматов, т.е. у обезьян и человека. Она представляет собой анатомический субстрат тактильных ощущений (осязания) и проприоцепции, всех сознательных и бессознательных способностей, требующих различения пространственных и временных деталей механической стимуляции тела.
Сигналы от кожи, мышц и суставов, передаваемые по заднему столбу (особенно тактильные), дают важную информацию о выполнении движений. Поэтому у больных с повреждением заднего столба сильно понижена способность распознавать предметы, например, активно ощупывая их, или идентифицировать цифры, вычерчиваемые на коже. Двухточечный порог у них повышен.
Система переднебокового канатика
Эта система показана на рис. 2.3. Переднебоковой канатик включает в себя ряд трактов в вентральном белом веществе спинного мозга, содержащих восходящие волокна спинальных нейронов, тела которых находятся в сером веществе, главным образом в заднем роге. Тройничные аксоны, соответствующие переднебоковому канатику, идут от нейронов в спинальном тройничном ядре (рис. 2.3). Афферентные сигналы в переднебоковой канатик проводятся спинномозговыми и тройничными нервами от терморецепторов и ноцицепторов, а также от низкопороговых механорецепторов, в основном от расположенных в коже. Восходящие аксоны присоединяются к переднебоковому тракту, контралатеральному телам их клеток и входам их афферентных волокон в спинной мозг. Поскольку главных мест назначения два - ретикулярная формация с другими стволовыми областями мозга и таламус, различают спиноретикулярный и спиноталамический тракты. Передаваемая ими информация, по-видимому, в конце концов достигает многих отделов головного мозга, главным образом по полисинаптическим, медленно проводящим путям. Здесь нет ни четкой соматотопической организации, ни ясно очерченной проекции на кору, сравнимой с известной для системы заднего столба. Система переднебокового канатика рассматривается как анатомический субстрат терморецепции и ноцицепции и, кроме того, как часть неспецифичной системы.
Неспецифичная система
Приблизительно с 1950 г. в нейрофизиологии распространилось понятие неспецифичной системы как альтернативы четко определимым анатомически и физиологически специфичным системам различных сенсорных модальностей. В соматосенсорной модальности система заднего столба – специфичная. Неспецифичную систему рассматривали как субстрат ряда наблюдаемых в опытах на животных генерализованных peaкций типа:
- реакций возбуждения;
- изменения ЭЭГ;
- ритма сон/бодрствование;
- аффективных поведенческих реакций;
- изменений кровяного давления.
Они могут быть вызваны как сенсорными стимулами (особенно болевыми), так и электрической стимуляцией ретикулярной формации ствола мозга и медиальных таламических областей. Эти центральные области считались «сердцевиной» неспецифичной системы, получающей сенсорную информацию главным образом по переднебоковым трактам.
Исследования названного выше филогенетически древнего отдела головного мозга показывают, что здесь протекают многие жизненно важные интегративные и регуляторные процессы, отражающиеся на функциях спинного (например, симпатические реакции) и большого мозга (например, состояние тревоги). Однако достаточных свидетельств существования однородной неспецифичной системы нет. Напротив, с накоплением данных по физиологической, анатомической и биохимической дифферецировке этих отделов головного мозга сам такой термин становится все менее и менее приемлемым.
2.8 Передача соматовисцеральной информации в спинном мозгу
Дерматомы
Афференты от кожи, мышц, cycтавов и внутренних органов входят в спинной мозг задним корешкам в определенном пространственном порядке, т. е. согласно топологической организации. Кожные афференты каждого заднего корешка иннервируют ограниченную область кожи, называемую дерматомом. Смежные дерматомы сильно перекрываются из-за перераспределения пучков волокон при их распространении к периферии, особенно в плечевом и пояснично-крестцовом сплетениях. Один периферический нерв содержит волокна нескольких соседних задних корешков, а каждый задний корешок – волокна разных нервавов. В то время как перерезка периферического нерва вызывает сенсорный дефицит ограниченного участка тела, перерезка одного заднего корешка, хотя и обедняет иннервацию какой-то области, все же не вызывает в ней заметного сенсорного дефицита.
В скелетной мускулатуре эквивалентами дерматомов являются миотомы. Зона Геда внутреннего органа состоит из дерматомов, связанных со спинномозговыми сегментами, иннервирующими этот орган. Нейронная организация обеих совокупностей афферентов такова, что может вызывать отраженную боль.
Функциональные свойства спинальной соматовисцеральной системы
Соматовисцеральные афференты образуют синаптические связи с нейронами в заднем (дорсальном) роге спинного мозга. Некоторые толстые миелинизированные афференты (группы I ІI) также отделяют ветви (коллатерали), восходящие в составе спинного мозга. У заднего рога, где идет нейронная переработка информации, четыре выхода: длинные тракты, восходящие до головного мозга главным образом в переднебоковом канатике; восходящие и нисходящие проприоспинальные связи с соседними сегментами; сегментарные связи с мотонейронами и симпатическими нейронами (участие в спинальных двигательных и вегетативных рефлексах). Однако, по всей вероятности, один нейрон не образует все четыре вида связей сразу.
В восходящих трактах аксоны, идущие от одного сегмента, расположены бок о бок. Это создает соматотопическую слоистость; аксоны, присоединяющиеся к прочим во все более высоких сегментах, всегда оказываются со стороны серого вещества. Один из результатов такого расположения состоит в том, что при поверхностном повреждении переднебокового канатика (раной или опухолью) в шейной области первые сенсорные дефициты следует ожидать в нижней половине тела.
Нейроны переднебокового канатика
Хотя клинические данные указывают на участие переднебокового канатика в болевых и температурных ощущениях, он содержит всего лишь несколько аксонов специфичных ноцицептивных и терморецептивных нейронов. Большинство аксонов принадлежит здесь клеткам, возбуждаемым также слабыми механическими стимулами, т.е. мультирецептивным нейронам. Остается спорным вопрос, достаточно ли немногих специфичных ноцицептивных и терморецептивных нейронов для передачи соответствующих сигналов или дополнительная информация, требуемая головному мозгу для болевых и температурных ощущений, обеспечивается активностью мультирецептивных нейронов. Важное свойство заднего корешка как станции переключения – конвергенция афферентов от кожи и внутренних органов на одни и те же нейроны. Из-за нее афферентные сигналы от внутренностей (например, запускаемые желчными коликами) «ложно» локализуются больным на поверхности тела. Каждый внутренний орган связан с определенной областью кожи – своей зоной Геда. Другой элемент цепи заднего корешка – тормозные синапсы, которые служат для модификации афферентной информации. Это может принимать форму латерального торможения или регуляции сенсорного входа трактами, нисходящими от головного мозга. Активация таких тормозных механизмов применима для обезболивания.
Нейроны ядер заднего столба
Аксоны заднего столба оканчиваются ипсилатерально в его ядрах (клиновидном и тонком), находящихся в продолговатом мозгу. Здесь они образуют синапсы с крупными нейронами, посылающими аксоны в контралатеральный таламус по медиальному лемнисовому тракту и называемыми релейными в отличии от вставочных (интернейронов) с аксонами выходящими из ядер заднего столба. Переработка афферентной информации при синаптической передаче к релейным нейронам имеет следующие характеристики:
- сохранение сенсорной специфики; на одном нейроне конвергируют афференты одинакового сенсорного типа;
- большой запас надежности синаптической передачи; даже одиночные импульсы aфферентного волокна вызывают постсинаптическую импульсацию;
- мелкие рецептивные поля;
- соматотопическая организация; пространственно упорядоченное представители кожи;
- афферентное торможение;
- нисходящие регулирующие входы, в частности, от коры головного мозга.
Эти свойства характерны и для последующих мест переключения в лемнисковой системе; они определяют качество и разрешающую способность ощущений, связанных с передаваемой здесь информацией.
2.9 Соматосенсорные функции ствола мозга
Ствол мозга, состоящий из продолговат мозга, моста и среднего мозга представляет собой место отхождения (или вхождения) большинства черепно-мозговых нервов. В нем содержится множество дискретных ядер, выполняющих преимущественно сенсорные, двигательные или регуляторные функции; между ними, по-видимому, проходят все восходящие и нисходящие пути связывающие головной мозг со спинным, а также большой мозг с мозжечком.
Тройничный нерв и его центральные связи
Голова иннервируется 12 парами черепно-мозговых нервов, большинство которых присоединяется к центральной нервной системе в стволе мозга и промежуточном мозгу. Пятый из этих нервов называемый тройничным из-за своих трех ветвей, включает афференты от лица и ротовой области (рис. 2.4).
Он иннервирует кожу, зубы, слизистую рта, язык и роговицу. Седьмой черепномозговой нерв (лицевой) тоже, но в меньшей степени, содержит головные соматосенсорные афференты. В языкоглоточном и блуждающем нервах есть висцеральные афференты от органов кровообращения, дыхания и пищеварения.
Сенсорные тройничные ядра и восходящие пути
Афференты тройничного нерва образуют синапсы в ядре спинального тракта и главном сенсорном ядре (рис. 2.4). Ядро спинального тракта функционально соответствует заднему рогу спинного мозга. Здесь механорецептивная, терморецептивная и ноцицептивная информация передается на аксоны, несущие ее к ретикулярной формации и таламусу, как и волокна переднебокового канатика, передающие туда информацию от спинного мозга. Все афференты, которые оканчиваются в главном сенсорном ядре, соответствующем ядрам заднего столба, идут от низкопороговых механорецепторов. Постсинаптические аксоны переходят на другую сторону и направляются к таламусу в составе медиального лемнискового тракта.
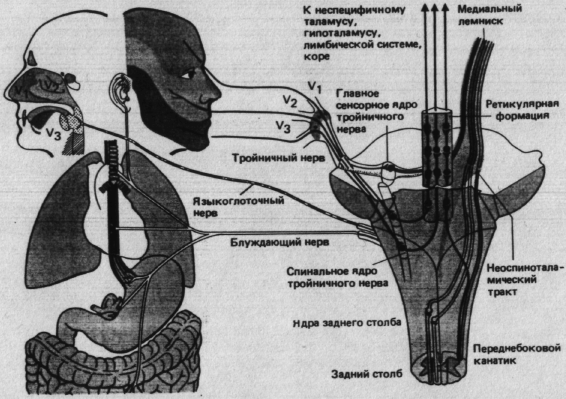
Рис. 2.4. Афференты
и структуры
соматовисцеральной
системы в стволе
головного мозга
(справа - его
схематичный
вид сзади). К
ним относятся
афференты
тройничного
нерва (трех его
ветвей V ,
V
 и V
 ),
блуждающего
и языкоглоточного
нервов, центральная
афферентная
система тройничного
нерва и ее восходящие
пути, ретикулярная
формация и
тракты, приходящие
из спинного
мозга, т.е. дорсальных
столбов и
переднебокового
канатик. Центральное
прохождение
афферентов
языкоглоточного
и блуждающего
нервов не показано.
В стволе мозга информация, приносимая тройничными афферентами, интегрируется в двигательные рефлексы мускулатуры головы и во множество вегетативных рефлексов. Тройничная система осуществляет жизненно важные функции (особенно у млекопитающих) тактильного исследования окружающей среды, питания, издавания звуков и т.д. Она хорошо развита уже при рождении и проводит сенсорные сигналы, запускающие пищевое поведение, т.е. обеспечивает первое сенсорное знакомство ребенка с окружающей средой.
Ретикулярная формация
Ретикулярная формация – протяженная структура в стволе мозга (рис. 2.4)-важная интегративная область неспецифичной системы. Соматовисцеральные афференты попадают по спиноретикулярному тракту переднебокового канатика, а возможно, также по проприоспинальным (полисинаптическим) путям и соответствующим путям от ядра спинномозгового тройничного тракта. У ретикулярной формации есть афферентный вход и от других черепно-мозговых нервов. Кроме того, здесь много различных эфферентных связей: нисходящих к спинному мозгу и восходящих через неспецифичные таламические ядра к коре больших полушарий, гипоталамусу и лимбической системе.
Функции ретикулярной формации еще не вполне понятны. Ретикулярная формация участвует в:
- регуляции возбудимости коры: уровня осознания стимулов и реакций, ритма сон/ бодрствование (восходящая активирующая ретикулярная система);
- придании аффективно-эмоциональных аспектов сенсорным стимулам, особенно болевым, за счет передачи афферентной информации в лимбическую систему;
- двигательной регуляции, особенно связанной с так называемыми жизненно важными рефлексами (кровообращения, дыхания, глотания, кашля и чихания), требующими координации нескольких афферентных и эфферентных систем;
- регуляции позы и целенаправленных движений.
Этот перечень свидетельствует о невозможности четкого различения в ретикулярной формации цента сенсорной и интегративной систем. С другой стороны, недавно стало ясно, что некоторые ее области можно различать по анатомическим, функциональным и химическим свойствам (например, серотонинергических ядра шва и норадренергическое голубое пятно). Скорее всего, по мере расширения наших знаний о ретикулярной формации, представление о неспецифичной системе будет пересмотрено.
2.10 Таламус
Таламус считается входными воротами и распределительным пунктом, через которые все афферентные системы получают доступ к филогенетически более молодым церебральным структурам, обеспечивающим осознание сенсорных стимулов и сознательное целенаправленное поведение.
Анатомический и функциональный обзор
Правый таламус можно разделить на несколько функционально и/или анатомически различимых ядер, каждое из которых связано со своей корковой областью. Для обобщей ориентации сгруппируем эти ядра в следующие четыре функциональных класса:
- специфичные переключающие и перерабатывающие ядра кожных сенсорных органов, глаза и уха;
-ядра с преимущественно двигательными функциями;
-ядра с ассоциативными функциями;
- неспецифичные ядра без определенных корковых мишеней.
Таламические переключающие ядра сенсорных органов
Эти переключающие и перерабатывающие структуры связаны с корковой областью, отвечающей за их сенсорную модальность, и в свою очередь регулируются (возбуждаются и тормозятся) этой областью.
Неспецифичные ядра
Эта категория включает медиальные области, примыкающие к третьему желудочку мозга, а также интраламинарные ядра. Это высшие перерабатывающие и распределительные пункты для афферентной информации, конвертирующей на ретикулярной формации мозгового ствола. Сигналы от спинного мозга приходят сюда непосредственно по палеоспиноталамическому тракту и непрямо – по спиноретикулярному.
Двигательные ядра
Самое главное из них вентролатеральное (ВЛ), связывающее мозжечок и базальные ганглии с двигательной корой. Хирургические воздействия на соответствующие участки ВЛ могут ослабить двигательные расстройства (например, паркинсонизм).
Ассоциативные ядра
Эти части таламуса соединены с корой, но не могут быть отнесены к какой-либо определенной сенсорной системе; они принимают участие в интегратнвных функциях головного мозга.
Специфичное таламическое ядро соматосенсорной системы
Из-за своего анатомического положения этот участок лемнисковой системы называется вентробазальным ядром (ВБ) или вентробазалъным комплексом. В нем выделяют вентральное постеролатеральное (ВПЛ) и вентральное постеромедиальное (ВПМ) ядра. В ВПЛ находится нейронное представительство туловища и конечностей, а в ВПМ — лица. Главный проводящий путь, который ведет к ВПЛ, - это медиальный лемнисковый тракт, а к ВПМ тройнично-таламический тракт, начинающийся от главного сенсорного ядра тройничного нерва.
В опытах на наркотизированных животных установлены следующие функциональные особенности ВБ-нейронов:
-каждый из них обладает определенным рецептивным полем для механических стимулов кожи;
- рецептивные поля тем меньше, чем дистальнее они находятся на конечностях;
- соседние участки тела проецируются на соседние участки ВБ (пример