Инфекционные заболевания: взгляд через призму времени
Позднее, хотя и стали признавать значение состояния макроорганизма в развитии инфекционных заболеваний (Smith T., 1913), тем не менее, ведущая роль все же оставалась за микробным фактором. Так, по мнению T. Smith патогенные микробы обладают «наступательными» и «оборонительными» функциями, что отличает их от непатогенных и, благодаря которым, в конечном итоге, определяется исход взаимодействия в системе «паразит-хозяин».
H. Zinsser одним из первых в 1914 г. классифицировал все микроорганизмы на три группы:
1) чистые сапрофиты, которые не способны развиваться в ткани организма и, соответственно, не способные вызывать развитие инфекционных болезней;
2) чистые паразиты, которые легко развиваются в организме человека, вызывая развитие заболевания;
3) паразиты, которые имеют низкие инвазивные свойства и способные вызывать развитие заболевания только в некоторых случаях.
По мнению H. Zinsser эти группы микроорганизмов «абсолютно не перекрещиваются между собой». Таким образом, основная масса исследований, проводимых в начале ХХ столетия, была ориентирована на доказательство причастности к развитию инфекционных заболеваний ограниченной группы возбудителей, обладающих высокими вирулентными свойствами, определяющих их контагиозность. Данный принцип и был положен в основу выделения инфекционных заболеваний как самостоятельной и даже в определенной степени «изолированной» области клинической медицины и концептуально определить характер развивающегося инфекционного процесса.
Многие авторитетные исследователи давали свои формулировки инфекционному процессу. Однако они принципиально мало отличались друг от друга и сводились к тому, что инфекционное заболевание есть «борьба между двумя организмами» (И.И. Мечников) или «…паразитизм при котором никакой взаимной адаптации не происходит, а инвазия микроба в организм хозяина обусловливает борьбу, локальные и системные проявления которой составляют болезнь» (Н. Zinsser).
В литературе можно даже найти формулировки, в которых указывается на оборонительный характер этой борьбы для макроорганизма: «…сумма общих специфических реакций организма на жизнедеятельность патогенного микроба» (Г.А. Иващенцов). В соответствии с классическими представлениями, инфекционные заболевания, как правило, рассматривались как остро протекающий процесс, заканчивающийся санацией организма от возбудителя и полным выздоровлением больного. Лишь только в отношении некоторых заболеваний (шигеллез, бруцеллез) допускалась возможность хронического течения заболевания.
Вплоть до 80-х годов ХХ столетия основной акцент в изучении патогенеза инфекционных болезней делался именно на острые формы заболевания, тогда как состояния, сопровождаемые длительной персистенцией возбудителя (носительство, хронические формы) оставались «белым пятном», а практиковавшиеся методы их лечения практически ничем не отличались от терапии острых форм заболевания. Признание многообразия клинических форм и вариантов течения инфекционных болезней наступило позднее и, на сегодняшний момент, представляет наиболее актуальное научно-практическое направление в инфектологии.
Огромное значение в осмыслении и понимании характера инфекционного заболевания имели общепатологические теории, гениальное значение которых состояло в попытках объяснения патологических состояний с точки зрения регуляторных процессов макроорганизма.
Claude Bernard (1813-1878), проводя свои исследования в области физиологии, одним из первых высказал идею и предпринял попытку её обоснования относительно того, что все жизненные процессы в организме имеют только одну цель - поддержание постоянства внутренней среды.
В последующие годы эта идея получила дальнейшее развитие и, в частности, американский физиолог W. Cannon развил её до теории «саморегуляции физиологических функций», которую он обозначил как теория гомеостаза. H. Selye (1907-1982) в 30-40-х годах ХХ столетия была разработана теория «общего адаптационного синдрома», согласно которой организм стереотипно реагирует на действие различных стресс-факторы внешней среды. Универсальность проявлений ответных реакций организма объяснялась стереотипностью реагирования симпатико-адреналовой системы, которая, по его мнению, является основным механизмом поддержания гомеостаза. Данная теория очень удачно объясняла определенную схожесть клинических проявлений начального периода у большинства инфекционных заболеваний, в силу чего, оказалась востребованной, в частности, инфекционистами в качестве базовой теории при изучении и теоретическом обосновании патогенеза инфекционных заболеваний.
Большое влияние на понимание механизмов развития инфекционных болезней оказали также исследования И.П. Павлова о регуляторных приспособительных реакциях макроорганизма. Благодаря этим теоретическим исследованиям, патологические процессы макроорганизма и, в частности, инфекционные заболевания стали рассматривать как «… динамический, развивающийся [процесс] со сменой причин и следствий» (А.Ф. Билибин), «….физиологические защитные и патологические реакции, возникающие в определенных условиях внешней среды в ответ на воздействие патогенных микробов» (А.Ф. Билибин, Г.П. Руднев).
Планируя проведение научных исследований на нашей кафедре, мы исходили из системного взгляда на изучение проблемы синдрома интоксикации, рассматривая изменение активности различных гуморальных регуляторных систем не только непосредственно с функциональным состоянием органов и систем, но и в неразрывной взаимосвязи между собой.
Наибольшее внимание нами было уделено системам гемостаза и гемодинамики, функциональное состояние которых обеспечивает адаптивное функционирование жизнеобеспечивающих систем макроорганизма (Д.В. Беликов, 1990). В частности, нами в клинико-экспериментальных исследованиях была установлена стадийность в изменении плазменного и клеточного звеньев гемостаза и микроциркуляции в зависимости от выраженности интоксикационного синдрома (Б.М. Ибрагимов, 1982; И.П. Убеева, 1982; М.Х. Турьянов, 1983).
Наибольшая выраженность периваскулярных, сосудистых и внутрисосудистых нарушений в микроциркуляторном русле совпадала с повышением обмена серотонина и гистамина (М.Н. Алленов, 1987; Г.С. Хандохина, 1989), активацией симпатико-адреналовой системы (Б.Г. Тютюньщиков, 1983), состоянием ренин-ангиотензин-альдостероновой системой (Е.Ю. Мишин, 1983; М.В. Нелюбов, 1984) и глюкокортикоидной функцией коры надпочечников (Н.Ю. Прошин, 1986). Характер и выраженность изучаемых параметров практически не зависели от этиологического фактора и носили универсальный характер.
На ранних стадиях развития синдрома интоксикации под действием эндотоксинов происходит активация фактора Хагемана (XII фактора свёртывания), который является ключевым ферментом, связывающим в единую функциональную полисистему свёртывающую, противосвёртывающую и калликреин-кининовую системы, функциональное состояние которых определяет параметры кардиогемодинамики (Л.В. Мамаева, 1984; В.А. Малов, 1984).
В работе Д.Б. Цукерман (1988) было установлено, что при сальмонеллезе эндотоксин является пусковым фактором в цепи морфофункциональных реакций тромбоцитов (агрегатообразования и секреции биологически активных веществ), которые играют важную роль в развитии тромбогеморрагического синдрома. Кроме этого, активация клеточного звена гемостаза совпадала по времени и выраженности с увеличением уровня тромбоксана А2 (Л.Н. Студенникова, 1991) и циклических нуклеотидов (М.Т. Абидов, 1986) в сыворотке крови.
В качестве серологического маркёра эндотоксинемии, нами были изучены особенности циркуляции в биологических средах больных острыми кишечными инфекциями О-антигены, которые показали, что в остром периоде заболевания, обнаруживаемые в сыворотке крови уровни О-антигенов достаточно высоко коррелируют с клиническими проявлениями интоксикационного синдрома (М.Ю. Серебряков, 1988).
В последние годы, в результате проводимых экспериментальных исследований, получены принципиально новые данные. Мы существенно расширили наши представления о взаимодействии гуморальных регуляторных систем в развитии воспалительной реакции макроорганизма на бактериальные эндотоксины
Новизной современного взгляда является то, что они базируются на единстве механизмов инициации каскада патологических изменений и тесном взаимодействии механизмов воспаления, коагуляции и эндотелиально-клеточной дисфункции, представляющих собой единый блок патофизиологических реакций. Расстройство же в регуляции взаимодействия систем свёртывания и воспаления приводит к системному микротромбообразоваанию, которое лежит в основе развития органной недостаточности, являющимся ведущим фактором неблагоприятного исхода заболевания.
На современном этапе важное значение в сбалансированности взаимодействия коагуляции и воспаления отводится протеину С (ПС) который в активированном состоянии обладает многонаправленным действием, затрагивающим как воспаление, так и коагуляцию. В проведенных Е.А. Городновой (2003) исследованиях было установлено, что у больных генерализованной формой менингококковой инфекции (ГФМИ) и сепсисом наиболее точным и чувствительным маркёром развития ДВС-синдрома, отражающим дисбаланс в системе про- и антикоагулянтов, является ПС. Кроме этого, было установлено, что исход заболевания у наблюдаемых больных находился в прямой зависимости от динамики изменения концентрации ПС в плазме крови: у больных с благоприятным исходом заболевания нормализация уровня ПС происходила уже к 7 дню от начала лечения, тогда как при неблагоприятном течении - стойко оставалась низкой.
Важным выводом проведенного исследования было и то, что независимо от этиологии сепсиса ключевые показатели гемостаза (ПС, протеин S и антитромбин III) имеют однонаправленный характер изменений, отражая течение ДВС-синдрома, и развитие и прогрессирование полиорганной недостаточности.
Большое внимание в своих исследованиях нами было уделено изучению реактивности полиморфно-ядерных лейкоцитов (ПМЯЛ), значение которых в развитии инфекционного процесса традиционно всегда оценивалось и продолжает оцениваться достаточно высоко. Уже с первых дней заболевания у больных регистрируется активация функциональной активности ПМЯЛ, выраженность и длительность которой зависит от характера инфекционного процесса: более кратковременной она бывает при пищевых токсикоинфекциях и продолжительной при шигеллёзах (П.Ю. Попов, 1991; А.Н. Горобченко, 1999).
Одним из ранних и наиболее чувствительных тестов, свидетельствующих об активации ПМЯЛ, является повышение их окислительного потенциала, что, в свою очередь, служит инициирующим фактором активации свободно-радикального окисления липидов, выраженность которого также коррелирует с тяжестью заболевания и выраженностью синдрома интоксикации (П.Ю. Попов, 1991; В.А. Малов, 1992). Длительность процесса пероксидации липидов в значительной степени зависит от степени угнетения антиоксидантного потенциала крови.
Исследование метаболической активности ПМЯЛ у больных острыми вирусными гепатитами показали несколько отличную динамику процесса. В частности, на всем протяжении заболевания выявлялось угнетение как спонтанной, так и стимулированной хемилюминесценции (за исключением больных с легким течением острого вирусного гепатита А) (К.Т. Умбетова, 1995; Е.В. Волчкова, 1999).
Еще одной важной общепатологической теорией, способствующей современному пониманию инфекционного процесса, явилась теория «остро-фазной реакции». Хотя сам термин «острая фаза» впервые был использован O.T. Avery в 1941 г., для обозначения сыворотки крови больных с инфекционными заболеваниями, в последующем он приобрел более универсальное значение для обозначения протеинового спектра крови (белков острой фазы, БОФ) после воздействия на макроорганизм различных стресс-факторов, включая возбудителей инфекционных болезней. Важность этой теории для клиники инфекционных болезней состояла в том, что она изучала не только сами белки острой фазы, но регуляторные механизмы, определяющие эти изменения.
Многочисленные клинико-экспериментальные исследования показали важную роль белков острой фазы в адаптации организма. Обладая широким спектром биологической активности, белки острой фазы участвуют в адаптационных реакциях макроорганизма, обеспечивая многие его гомеостатические функции (таблица 3).
ОСНОВНЫЕ БЕЛКИ ОСТРОЙ ФАЗЫ И ИХ БИОЛОГИЧЕСКИЕ ФУНКЦИИ
| Ингибирование протеолиза | Макроглобулины, α1- протеиназный ингибитор (α1-антитрипсин), α1-антихемотрипсин, ингибитор α-трипсина, α1-острофазный глобулин, гаптоглобин |
| Свертывание крови и фибринолиз | Фибриноген, α1-гликопротеиновая кислота, α2-антиплазмин, С1-инактиватор, сывороточный амилоид Р |
| Элиминация из организма чужеродных материалов | С-реактивный белок, сывороточный амилоид А, сывороточный амилоид Р, С3-комплемент, фибриноген |
| Модуляция иммунного ответа организма | Протеиназные ингибиторы, С-реактивный белок, С3-комплемент, α2-HS-гликопротеин, α1-гликопротеиновая кислота, фибриноген, гаптоглобин |
| Противовоспалительные функции | Протеиназные ингибиторы, фибринопептиды, гаптоглобин, церулоплазмин |
| Связывание и транспорт биологически активных компонентов | Гаптоглобин, гемопексин, франсферрин, церулоплазмин, преальбумин, альбумин, α1-гликопротеиновая кислота, макроглобулины |
Проведенные на нашей кафедре исследования белков острой фазы (С.Г. Нехаев, 1996) показали, что при циклических формах инфекционных заболеваний уже с первых дней развития интоксикации происходит усиление синтеза и функционального потенциала белков острой фазы, что свидетельствует о возрастании адаптационных возможностей организма. Увеличение синтеза белков острой фазы сохраняется даже в периоде ранней реконвалесценции заболевания, т.е., даже тогда, когда у больного купируются клинические признаки заболевания. Сходные изменения в уровнях БОФ нами были выявлены у больных с острыми формами вирусных гепатитов (Е.В. Волчкова, 1999).
Весьма интересные данные нами были получены при изучении функционального состояния естественных природных антиэндотоксиновых систем (Ч. Карлыев, 1992; В.А. Малов, 1992) организма, значение которых, по нашему мнению, до сих пор остается недооцененным. Вероятно, бактериальные эндотоксины кишечного происхождения, универсальное значение в развитии инфекционных заболеваний как бактериальной, так и вирусной этиологии, поскольку существенные сдвиги в функциональном состоянии природных антиэндотоксиновых систем нами были выявлены и у больных острыми вирусными гепатитами (Е.В. Волчкова, 1999).
Таким образом, на основании указанных общепатологических теорий и результатов собственных наблюдений, нами (С.Г. Пак, В.А. Малов 1988-1996гг.) была разработана концепция медико-биологического значения синдрома интоксикации в развитии инфекционных заболеваний. Синдром интоксикации имеет уникальное значение для клиники инфекционных болезней, поскольку, с одной стороны, представляет универсальный клинический синдромокомплекс, развитие, которого типично для большинства инфекционных заболеваний, независимо от этиологического фактора, а с другой, степень его выраженности определяет тяжесть и исход заболевания.
В общепатологическом же плане синдром интоксикации является клиническим эквивалентом срочной адаптации организма в условиях микробной инвазии. Исключительно важно то, что для клиники инфекционных болезней имеет установление характера "сбоя" в регуляции адаптационного потенциала организма, что клинически проявляется более тяжелыми формами заболевания, развитием осложнений и, в крайнем случае, летальным исходом.
Изменения, возникающие на локальном, системном и органном уровне в результате воздействия на организм хозяина бактериальных возбудителей, свидетельствует об их адаптационно-приспособительном характере. В начальном периоде болезни, уровень направлен на срочную мобилизацию защитных механизмов. Именно подобная последовательность формирующихся ответных реакций макроорганизма лежит в основе развития клинического синдрома интоксикации, который, по своей сути, представляет не что иное, как частный вариант общего адаптационного синдрома (стресс-реакцию) на микробную инвазию.
Организм человека, находящийся в перманентном контакте с различными микроорганизмами, обладает мощными врожденными (природными) и приобретенными системами защиты, скоординированное функционирование которых может препятствовать развитию инфекционного процесса на любой стадии развития, не зависимо от пути поступления возбудителя. Клинически же это проявляется возможностью широкого диапазона течения любого инфекционного заболевания (от носительства до тяжелых и даже молниеносных форм заболевания) у различных больных.
На ранних этапах развития инфекционного процесса исключительную защитно-приспособительную роль играют системы неспецифической защиты, действие которых не зависит от природы возбудителя (вирусы, бактерии, риккетсии, простейшие и др.). Соответственно, и эффективность функционирования этих систем в значительной степени будет зависеть от стратегии возбудителя в организме хозяина (внутри-, внеклеточный паразитизм и т.д.).
Ключевым стартовым механизмом, посредством которого реализуется развертывание адаптационно-приспособительных реакций макроорганизма, является возможность распознавания поступающего в макроорганизм микроба. Данный механизм обеспечивает возможность самокупирующего течения инфекционного заболевания. В противном случае, большинство инфекционных заболеваний стали бы фатальными для человека. Такая система детекции микроорганизма является жизненно необходимой для организма хозяина, поскольку обеспечивает инициацию «реакции тревоги» в случае поступления микробов во внутренние среды организма. Поступление в макроорганизм возбудителя, не обладающего инвазивными свойствами и не способного вызывать развитие воспалительной реакции в месте входных ворот, не сопровождается развитием синдрома интоксикации, как это происходит, например, при холере.
Поскольку на ранних этапах развития инфекционного процесса защита организма хозяина преимущественно обеспечивается неспецифическими механизмами, их действие должно быть направлено на широкий круг возбудителей с инициацией «реакции тревоги» по универсальному механизму. Одним из первых структурных компонентов микроорганизмов, способных «запускать» комплексный механизм защитно-приспособительных реакций макроорганизма, был описан у грамотрицательных бактерий и, которым оказался липополисахарид. Кстати, именно на этом механизме был основан терапевтический эффект пирогенала и продигиозана, длительное время используемых в клинической практике для лечения больных с затяжным и хроническим течением инфекционных заболеваний.
Дальнейшие исследования позволили установить, что ЛПС является не единственным бактериальным молекулярным комплексом, способным активизировать врожденные и приобретенные системы защиты организма. Провоспалительная активность некоторых компонентов бактериальных клеток представлена в таблице 4. В современной литературе они получили название «патоген-ассоциированные молекулярные структуры» (PAMP - pathogen-associated molecular patterns). Основными требованиями к ним являются: а) уникальность строения, исключающая обнаружение сходных структур в организме хозяина;
б) минимальная вариабельность среди микроорганизмов;
в) они должны иметь существенное значение для выживания микробной клетки, обеспечивая ей жизненно важные функции, поскольку, в противном случае, в процессе селекции они могут быть утеряны;
г) они должны быть доступны для взаимодействия с рецепторными комплексами макроорганизма.
Кроме этого, есть весьма веские основания предполагать, что патоген-ассоциированные молекулярные структуры (PAMP) представляют собой своеобразный «молекулярный идентификационный образец» для определенного класса микроорганизмов. Благодаря этим критериям, распознавание патоген-ассоциированных молекулярных структур может сигнализировать не только о самом факте инвазии и присутствии микроорганизма во внутренней среде организма хозяина, но и также обеспечить ценную информацию относительно вида самого патогенного микроба.
Таблица 4
ПРОВОСПАЛИТЕЛЬНАЯ АКТИВНОСТЬ НЕКОТОРЫХ КОМПОНЕНТОВ БАКТЕРИАЛЬНЫХ КЛЕТОК
| Название | Краткая характеристика провоспалительной активности |
| Липополисахариды (эндотоксины) | Является структурным компонентом внешней мембраны грамотрицательных бактерий. Воспалительная активность обусловлена липидным комплексом (липидом А). Индуцирует выработку ИЛ-1, ИЛ-6, ИЛ-8, и TNF-α |
|
Тейхоевые и липотейхоевые кислоты (ТК и ЛТК) |
Содержит большинство грамположительных бактерий (до 50% сухого веса). В индукции воспаления ТК и ЛТК считаются аналогом ЛПС. Выработка TNF-α, ИЛ-1, ИЛ-6, ИЛ-8, ИЛ-12 и других активаторов воспаления. Могут действовать как синергисты или антагонисты ЛПС. |
| Пептидогликаны (ПГ) | Содержат грамотрицательные и грамположительные бактерии, но у последних их слой значительно толще (на 50-100 молекул). Индуцирует высвобождение TNF-α, ИЛ-1β, ИЛ-6, ИЛ-10. Обладает синергизмом действия с ЛТК. |
| Бактериальные ДНК | Бактериальные ДНК могут вызывать пролиферацию В-клеток, стимулировать выработку ИЛ-6 и ИЛ-10, секрецию IFγ, активацию NK-клеток и моноцитов с увеличением уровней TNF-α и ИЛ-12. |
Всем требованиям к патоген-ассоциированным молекулярным структурам максимально отвечают поверхностные структуры микроорганизмов, каким, например, является липополисахарид. Именно бактериальные ЛПС (эндотоксины) являются наиболее изученными бактериальными структурными компонентами, ответственными за развитие общих проявлений инфекционного заболевания.
С одной стороны, ЛПС присущ всем без исключения грамотрицательным бактериям и имеет исключительное жизнеобеспечивающее значение для микробной клетки, с другой стороны, его локализация идеальна для распознавания клетками организма хозяина и, кроме того, он является мощнейшим естественным природным индукторами воспалительной реакции.
Кстати, как показывают многочисленные исследования, поступление во внутренние среды организма фрагментов клеточной стенки грамположительных бактерий, очищенных от белков и липидов, и состоящих из тейхоевых кислот и пептидогликана, способно стимулировать выработку полного спектра цитокинов. Воспалительная реакция на ЛПС инициируется его первичным взаимодействием, прежде всего, с клетками ретикулоэндотелиальной системы, из которых наибольшее значение имеют гранулоциты и макрофаги. Непосредственное взаимодействие ЛПС с клетками-мишенями опосредуется несколькими растворимыми и/или мембраносвязанными протеинами, некоторые из которых при связывании с ЛПС, снижают его токсические свойства, ввиду чего их также относят к естественным антиэндотоксиновым системам организма. ЛПС-связывающая активность этих протеинов, среди прочих факторов, определяет и чувствительность организма к ЛПС.
В 80-х годах ХХ столетия одним из ключевых направлений в исследовании бактериальных липополисахаридов было открытие специфических структур, опосредующих взаимодействие ЛПС с плазматическими мембранами клеток. Одним из первых рецепторов для ЛПС был открыт CD11b/CD18 или CR3 рецептор, однако, как показали дальнейшие исследования, активации клеток через эти рецепторы не происходит. В 1990 году был описан рецептор CD14 (прежде известный как моноцит-специфический антиген), взаимодействие с которым приводило к активации клетки, однако оставался неясным механизм этой активации, поскольку данный рецептор не обладал трансмембранными сигнальными путями. Практически с этого времени CD14 стал рассматриваться как ключевой ЛПС-распознающий комплекс плазматической мембраны моноцитов, макрофагов и гранулоцитов, являющийся составной частью рецепторного комплекса, играющего важную роль в инициировании клеточных биологических эффектов ЛПС.
Кроме этого, как оказалось в последующем, CD14 может взаимодействовать и с некоторыми другими структурными компонентами как грамотрицательных, так и грамположительных бактерий, в связи с чем, данный комплекс стал рассматриваться как эволюционно выработанный клеточный рецепторный аппарат, определяющий механизм распознавания бактериальной инвазии.
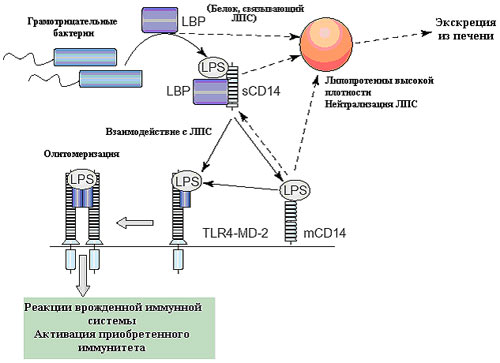
Принципиальная схема процесса связывания, распознавания и клиренса ЛПС in vivo (по K. Miyake, 2004). Связывание ЛПС с белком, связывающим ЛПС (LBP) и растворимым CD14 (sCD14). Образующийся комплекс доставляется к мембранносвязанному CD14 (mCD14) для активации сигнального пути. ЛПС в сыворотке крови может связываться и нейтрализоваться липопротеинами высокой плотности. ЛПС, связанный с мембранным CD14 транспортируется к Toll-like рецептору (TLR 4–MD-2) с последующей олигомеризацией и запуском сигнального пути, посредством которого происходит активация врожденного и приобретенного иммунитета.
На сегодняшний день основное внимание в иммунном распознавании микробных объектов исследователи уделяют семейству Toll-like рецепторам (TLR), которые были идентифицированы относительно недавно (Poltorak A. et al., 1998). У людей их идентифицировано 10 типов и только специфичность двух из них (TLR8 и TLR10) пока остается не установленной.
Лигандная спецификация Toll-like рецепторов (TLR) (по S. Janssens и R. Beyaert, 2003). TLR1 и TLR6 не функционируют как самостоятельные сигнальные пути, а действуют в кооперации с TLR2. TLR4 действует в комплексе с другими молекулами, такими как CD14 и MD-2. TLR3, TLR5 и TLR9 проявляют ограниченную специфичность. Природных лигандов для TLR7 не определено.
Семейство рецепторов TLR непосредственно вовлечено в распознавание различных микробных компонентов, осуществляют регуляцию генов, продукты которых, играют важную роль в синтезе провоспалительных цитокинов (в частности, TNF-α, IL-1, IL-6 и IL-12) и регуляции воспаления. Практически все основные и вспомогательные клетки, участвующие в развитии воспалительной реакции экспрессируют различные типы TL-рецепторов. Особенностью функционирования семейства TLR состоит в том, что независимо от природы инфекционного возбудителя и типа реагируемого рецептора, сигнальный путь, в конечном итоге, сходится в единой точке гена, осуществляющего инициирование некоторых общих и наиболее важных механизмов защиты макроорганизма на различные микробные индукторы.
Принципиальная схема TLR сигнального каскада (по S. Janssens и R. Beyaert, 2003). (сокращения: IKK - IкB киназный комплекс; IRAK - IL-1 рецептор-ассоциированная киназа; JNK - c-Jun N-терминальная киназа; MKK - митоген-активированная киназа; P - фосфат;)
Хотя лиганды для большинства TLR млекопитающих к настоящему времени остаются недостаточно изученными, преимущественно два члена семейства Toll-рецепторов - TLR2 и TLR4 вовлечены в распознавание микробных продуктов. Кроме этого, исследование функции TLR на стимулированных зимозаном макрофагах было установлено, что TLR2 первоначально локализуется в фагоцитирующей ямке, а в последующем и на поверхности фагосом. Это поразительное наблюдение позволяет предположить, что макрофаги при фагоцитозе используют TLR для определения природы фагоцитируемого материала.
Исследование особенностей функционирования TL-рецепторов дает и множество других, не менее интересных научных фактов. В частности, рядом экспериментальных исследований было показано, что антимикробные препараты (антибиотики) способны разными путями усиливать TLR-опосредованную провоспалительную активность клеток. Эти данные позволяют по-новому взглянуть на «стратегическое» направление лечения инфекционных больных.
Исследования последних лет показывают, что помимо бактериальных клеток, TLR вовлечены в распознавание некоторых вирусов, в частности, цитомегаловируса, вируса респираторно-синцитиальной инфекции, кори и некоторых других вирусов вакцинных штаммов, хотя эти механизмы остаются недостаточно ясными.
Как установлено, процесс распознавания вирусов TL рецепторами также сопровождается активацией иммунокомпетентных клеток и выработкой цитокинов, однако, учитывая облигатное внутриклеточное паразитирование вирусов, такой цитокиновый ответ может способствовать усилению репликации вируса даже на фоне формирующегося приобретенного иммунитета.
Изучение молекулярных механизмов функционирования TLR рецепторов на сегодняшний день является приоритетным направлением, объединяющим интересы многих специалистов, как в фундаментальных, так и прикладных областях науки.
ЗАКЛЮЧЕНИЕ
ХХ столетие ознаменовалось крупными достижениями практически во всех областях науки, включая медицину, что не могло не отразиться практически на всех без исключения сторонах жизни людей. В то же самое время, несмотря на поступательное развитие науки, крупные открытия, сделанные в области фундаментальных наук, значимость которых нельзя оценить иначе, как революционные, сегодня мы продолжаем сталкиваться с «новыми» и «возвращающимися» возбудителями инфекционных заболеваний, распространение которых грозит перейти эпидемический рубеж.
Невольно возникает вопрос: так добились - ли мы успехов в области контроля над инфекционными заболеваниями или нет, коль скоро находимся под постоянной угрозой распространения инфекционных заболеваний? Конечно, такая формулировка вопроса некорректна, и я умышленно обостряю ситуацию, поскольку мы еще недостаточно хорошо представляем себе все хитросплетения молекулярных механизмов развития инфекционных заболеваний.
Разрабатывая в начале ХХ столетия стратегию борьбы с инфекционными заболеваниями, мы недооценили пластичность микроорганизмов и их колоссальную способность к адаптации. Любая биологическая система находится в динамически развивающемся состоянии, чутко реагирующем на любые изменения внешней среды.
В этой связи совершенно очевидно, что инфекционные болезни эволюционируют вместе с обществом. Анализ причин повышения заболеваемости инфекционными болезнями, проведенный международными экспертами, свидетельствует о значении антропогенного фактора, т.е. активной деятельности человека, внедрение в повседневную жизнь новых достижений и технологий, которые являются мощным стимулом к адаптации микроорганизмов к постоянно меняющимся условиям существования. В определенном смысле можно говорить о том, что это цена прогресса. Поскольку микроорганизмы являются естественными и постоянными спутниками человечества, "компромиссное" сосуществование этих двух, биологических систем требует более взвешенного подхода.
Задачи, которые стоят, сегодня перед клиникой инфекционных болезней принципиально отличаются от тех, которые ставили наши не столь уж далекие предшественники, заложившие научный фундамент инфектологии. Инфекционные болезни уже давно выросли из тех «одёжек», которые ей скроили по образцу начала ХХ столетия. За своё легкомысленное отношение к инфекционным болезням наша страна совсем недавно заплатила по максимальному счёту – когда по всей стране прошла эпидемия дифтерии. До сих пор некоторые врачи сохраняют исключительную веру в этиотропные препараты, нередко подменяя понятия «антибиотики» и «инфекционист».
Таким образом, современные достижения биологической науки требуют иного, более широкого концептуального подхода к проблеме инфекционных болезней. Воздействие микроба на микроорганизм необходимо рассматривать не только и не столько с позиций его эпидемической опасности, а, прежде всего, с формирующейся ответной реакцией на его инвазию, что даже при отсутствии «классических» клинических проявлений заболевания, не будет исключать его инфекционный генез. Наглядным примером служит присуждение Нобелевской премии 2005 года в области медицины за открытие возбудителя язвенной болезни. Помимо этого, многие другие «неинфекционные» болезни уже сейчас имеют своих кандидатов в качестве этиологического фактора.
ЛИТЕРАТУРА
1. Барановский А.Ю., Трухин Ю.А., Руднев Д.А. Новый лечебник: Руководство по домашеней медицине. - СПб.: Наука, Комета, 1993. 624 с.
2. Беляков В.Д., Яфаев Р.Х. Эпидемиология: Учебник. - М.: Медицина, 1989. - 416 с.
3. Бочоришвили В.Г. (ред.) Сепсисология с основами инфекционной патологии. - Тбилиси: Мецниереба, 1988. - 808 с.
4. Виноградов В.М., Беляев А.А., Мартынов В.К. Домашний травник. - СПб: Интмед, 1993. - 448 с.
5. Внутренние болезни. Книга 3. Пер. с англ./Под ред. Е. Браунвальда и др. - М.: Медицина, 1993. - 480 с.
6. Внутренние болезни. Книга 4. Пер. с англ./Под ред. Е. Браунвальда и др. - М.: Медицина, 1994. - 496 с.
7. Зубик Т.М. Острые инфекционные заболевания и их профилактика. - Изд. ВММ МО СССР, - Л., 1979, 23 с.
8. Иванов А.И. Уход за инфекционными больными. - Л.: Медицина, 1997. - 200 с.
9. Лобзин Ю.В., Казанцев А.П. (Ред.) Руководство по инфекционным болезням. - СПб.: Комета, 1996. - 720 с.
10. Попов П.А. Советы доктора Попова. - М.: Ника-пресс, 1988. - 190 с.
11. Рахманова А.Г., Пригожина В.К. Справочник по инфекционным болезням для медицинских сестер. - СПб.: "ССЗ", 1998. - 345 с.
12. Соринсон С.Н. Вирусные гепатиты. - СПб.: Теза, 1997. - 306 с.
13. Соринсон С.Н. Инфекционные болезни в поликлинической практике: Руководство для врачей. - СПб: Гиппократ, 1993. - 320 с.
14. Цыркунов В.М., Комар В.И., Васильев В.С. Немедикаментозное лечение инфекционных больных: Справочное пособие. Минск: Высшая школа, 1996. - 388 с.
15. Черкасский Б.Л. Справочник по особо опасным инфекциям. - М.: Медицина, 1996. - 160 с.
16. Шабалов Н.П., Иванов Н.А., Староверов Ю.И. Профилактические прививки у детей в условиях гарнизона. СПб.: ВМА, 1997. – 24