Эволюция энергетических процессов у эубактерий
Спиртовое брожение, осуществляемое дрожжами, интересно тем, что на нем впервые были сделаны открытия, имеющие принципиальное значение. Именно при изучении спиртового брожения Л. Пастер доказал, что оно является процессом, связанным с жизнедеятельностью определенных микроорганизмов — дрожжей. Л. Пастер открыл, что в условиях свободного доступа кислорода воздуха процесс спиртового брожения ингибируется и активируется дыхание. Это явление получило название "эффекта Пастера". "Эффект Пастера" есть результат определенного взаимодействия между различными энергетическими путями, существующими у дрожжей. Одним из проявлений такого взаимодействия является конкуренция за АДФ и неорганический фосфат между процессами субстратного фосфорилирования гликолитического пути и окислительного фосфорилирования в дыхательной цепи.
В 1897 г. братья Г. и Э. Бухнеры (Н. Buchner, E. Buchner) опубликовали первое сообщение о возможности осуществления спиртового брожения вне клетки. Оказалось, что бесклеточные экстракты дрожжей превращают углеводы в этанол. Это послужило отправным пунктом для детального изучения химизма процесса. Впервые было показано включение неорганического фосфора в этот процесс и роль фосфорилированных соединений (Л. А. Иванов, 1905; A. Harden, W. Young, 1905). Установлена природа отдельных реакций, катализирующих их ферментов, промежуточных продуктов метаболизма, коферментов, энергетических взаимопревращений. В 1933г. Г. Эмбден и О.Мейергоф предложили полную схему спиртового брожения. Наконец, работы К. Нойберга (К. Neuberg) по изучению механизма спиртового брожения привели к установлению еще одной важной особенности метаболизма низших форм жизни — его чрезвычайной гибкости.
К. Нойберг обнаружил, что в зависимости от условий процесс спиртового брожения может идти с образованием продуктов, которые в норме не образуются. Если к дрожжам, сбраживающим глюкозу, добавить бисульфит, то основным продуктом брожения будет глицерин. Оказалось, что бисульфит образует комплекс с ацетальдегидом, и последний не может больше функционировать как акцептор электронов:
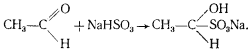
Следствием этого является передача электронов от НАД-H2 на фосфодиоксиацетон, восстановление его до 3-фосфоглицерина и дефосфорилирование последнего, приводящее к образованию глицерина. Кроме глицерина в среде происходит накопление ацетальдегида (в комплексе с бисульфитом), этанола и CO2, но образование последних двух продуктов заметно подавлено. Когда брожение идет в присутствии бисульфита, энергетический выход процесса в два раза меньше по сравнению с нормальным спиртовым брожением, поскольку одна триоза не подвергается окислению, а восстанавливается до молекулы глицерина.
Спиртовое брожение протекает обычно при pH 3–6. Если его проводить в щелочной среде, например в присутствии NaHCO3, также происходит накопление в сбраживаемом растворе глицерина. Оказалось, что в щелочных условиях ацетальдегид не может акцептировать электроны, поскольку в этих условиях он участвует в реакции дисмутации с образованием уксусной кислоты и этилового спирта. Акцептором электронов, как и в предыдущем случае, служит фосфодиоксиацетон. Процесс брожения в щелочной среде можно представить в виде следующего уравнения:
| 2C6H12O6 | ® | 2C3H8O3 | + | CH3-COOH | + | CH3-CH2OH | + | 2CO2. |
| глюкоза | глицерин | уксусная кислота | этиловый спирт |
МИКРООРГАНИЗМЫ, ОСУЩЕСТВЛЯЮЩИЕ СПИРТОВОЕ БРОЖЕНИЕ
Накопление этилового спирта в среде в анаэробных условиях наблюдается у разных групп эубактерий и группы эукариотных микроорганизмов — дрожжей.
Эубактерии
Способность осуществлять в анаэробных условиях спиртовое брожение по пути, описанному в предыдущем разделе, присуща некоторым эубактериям, принадлежащим к разным таксономическим группам, например Sarcina ventriculi, Erwinia amylovora.
S. ventriculi относится к группе грамположительных анаэробных кокков. Клетки неподвижные; делятся в трех плоскостях, поэтому в культуре часто образуют пакеты, состоящие из 64 и более клеток. Веществом, связывающим клетки в пакетах, служит целлюлоза. Описана способность образовывать эндоспоры. Аэротолерантный анаэроб. Единственный способ получения энергии — сбраживание Сахаров. Потребность в питательных веществах довольно высока (многочисленные аминокислоты и ряд витаминов).
E. amylovora относится к группе энтеробактерий. Это грамотрицательные подвижные палочки. Особенностью вида является его патогенность для растений. Факультативный анаэроб. В аэробных условиях получает энергию в процессе дыхания.
Помимо этилового спирта и CO2 в качестве продуктов брожения S. ventriculi в среде накапливается уксусная кислота и выделяется молекулярный водород, у E. amylovora накапливается молочная кислота. Разнообразие конечных продуктов у этих бактерий связано с тем, что пируват, образующийся при сбраживании глюкозы по гликолитическому пути, далее может метаболизироваться различно: восстанавливаться до молочной кислоты; подвергаться декарбоксилированию и последующему восстановлению, как описано в предыдущем разделе; подвергаться ферментативному расщеплению, приводящему к образованию ацетата и др.
У многих клостридиев и энтеробактерий среди продуктов брожения обнаруживают этиловый спирт, но путь его образования отличен от описанного в предыдущем разделе. Сбраживание сахаров до пировиноградной кислоты происходит по гликолитическому пути, дальнейшее же превращение пирувата идет не через пируватдекарбоксилазу. У названных групп бактерий пируват подвергается расщеплению, приводящему к образованию ацетил-КоА. Реакция катализируется пируватдегидрогеназой. Ацетил-КоА затем восстанавливается до ацетальдегида:
CH3-CO~S-КоА + НАД-H2 ® CH3-COH + НАД+ + КоА-SH,
а последний — до этанола.
Гетероферментативные молочнокислые бактерии накапливают в среде спирт, метаболизируя глюкозу по окислительному пентозофосфатному пути. В результате ряда ферментативных превращений образуется ацетилфосфат, восстановление которого в два этапа приводит к появлению молекулы этилового спирта.
Наконец, у бактерий Zymomonas mobilis с неясным систематическим положением, используемых в Мексике для получения национального спиртного напитка "пульке", разложение глюкозы до пировиноградной кислоты идет по пути Энтнера — Дудорова. Дальнейшее превращение пирувата происходит с участием пируватдекарбоксилазы и алкогольдегидрогеназы. Выход продуктов брожения такой же, как при спиртовом брожении по гликолитическому пути: по 2 молекулы спирта и CO2 на 1 молекулу сброженной глюкозы, но энергетический выход в два раза ниже, чем при гликолизе: всего 1 молекула АТФ на 1 молекулу сброженной глюкозы.
Z. mobilis — грамотрицательные подвижные бактерии, имеющие форму коротких палочек. Характеризуются высокими биосинтетическими способностями. Анаэробы, единственный способ получения энергии для которых — спиртовое брожение. Однако эти бактерии способны расти в присутствии молекулярного кислорода. Последний в этом случае используется для окисления части этанола до уксусной кислоты в соответствии с уравнением:
1 глюкоза + 1O2 ® 1 этиловый спирт + 1 уксусная кислота + 1,7CO2 + 0,2 молочная кислота
Таким образом, молекулярный кислород существенно не меняет характера энергетического метаболизма Z. mobilis. В клетках бактерии обнаружены фрагменты ЦТК, цитохромы b, c, a2, каталаза. Наиболее вероятным представляется, что предки Z. mobilis — аэробы. Способ получения энергии за счет спиртового брожения — более позднее приспособление к условиям обитания.
Эукариоты
Основными продуцентами этилового спирта, имеющими широкое практическое применение, являются дрожжи — одноклеточные эукариотные микроорганизмы, принадлежащие к разным классам высших грибов. Наиболее распространенный способ размножения дрожжей — почкование. Дрожжи — аэробы со сформированным аппаратом дыхания, но в анаэробных условиях осуществляют спиртовое брожение по пути, рассмотренному в предыдущем разделе, т. е. получают энергию за счет субстратного фосфорилирования. Конструктивный метаболизм дрожжей основан на их хорошо развитых биосинтетических способностях. Есть виды дрожжей, развивающиеся на простых синтетических средах; эти дрожжи способны синтезировать все необходимые им сложные органические соединения. Существуют виды,. нуждающиеся в определенных витаминах группы В. Добавление к питательной среде веществ, содержащих комплекс витаминов, аминокислот, сахаров приводит, как правило, к заметному стимулированию роста дрожжей.
Ряд отраслей промышленности основан на жизнедеятельности дрожжей (виноделие, производство спирта, пивоварение, хлебопекарное производство). Сырьем для производства спирта с использованием дрожжей служат углеводы растительного происхождения (картофель, злаки), отходы пищевой (мелассы) и целлюлозно-бумажной (щелока) промышленности, различные сельскохозяйственные отходы, а также гидролизаты древесины. Сбраживание дрожжами виноградного сока лежит в основе виноделия; сбраживание пивного сусла, приготовленного из проросших зерен ячменя, специальными пивными дрожжами — в основе пивоварения.
О путях образования этилового спирта
Изложенные данные позволяют составить определенное представление о том, насколько широко распространено образование этилового спирта среди разных групп эубактерий и насколько различны метаболические пути, ведущие к его синтезу. Из этого следует, что накопление в культуральной среде этилового спирта само по себе не может служить указанием на место процесса, приводящего к его образованию, в эволюции. Этиловый спирт у эубактерий может быть одним из конечных продуктов как эволюционно более ранних (гликолиз), так и более поздних (окислительный пентозофосфатный цикл, путь Энтнера — Дудорова) катаболических процессов. До сих пор среди эубактерий не обнаружены организмы, сохранившие черты примитивности энергетического и конструктивного метаболизма, у которых спиртовое брожение служило бы единственным способом получения энергии. Тот факт, что в самом "классическом" виде спиртовое брожение проявляется у дрожжей, форм эукариотных, не может, как нам кажется, ставить под сомнение его место в эволюции анаэробных энергетических процессов.
ПРОПИОНОВОКИСЛОЕ БРОЖЕНИЕ
Из рассмотренных двух типов брожения видно, что ключевым соединением в обоих процессах является пируват, поскольку в конечном итоге специфика брожения определяется дальнейшей судьбой пирувата. Основная задача последующих реакций — регенерирование молекулы НАД+ и возвращение ее в клеточный метаболизм. Прямое восстановление пирувата с помощью НАД-H2 до молочной кислоты реализуется в молочнокислом брожении. Другая возможность регенерирования НАД+ — "сбрасывание" водорода с НАД-H2 на фрагменты, образуемые при метаболизме пирувата, — имеет место в спиртовом брожении, осуществляемом дрожжами и некоторыми видами бактерий. Третья возможность связана с синтетическим процессом — усложнением молекулы пирувата, в результате которого создается более окисленная молекула акцептора, способная принять больше электронов с восстановленных переносчиков. Это происходит при присоединении к молекуле пирувата CO2, приводящем к формированию четырехуглеродного скелета. Процесс получил название гетеротрофной ассимиляции углекислоты.
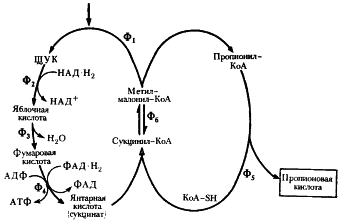
|
| Рис. 54. Превращение пировиноградной кислоты в пропионовую при пропионовокислом брожении: Ф1 — метилмалонил-КоА-карбоксилтрансфераза; Ф2 — малатдегидрогеназа; Ф3 — фумараза: Ф4 — фумаратредуктаза; Ф5 — КоА-трансфераза; Ф6 — метилмалонил-КоА-мутаза (по Daglev, Nicholson. 1973; Rose. 1971) |
Впервые гетеротрофная ассимиляция углекислоты была обнаружена в 1936 г. X. Вудом и К. Веркманом (Н. Wood, C. Werkman) при изучении сбраживания глицерина пропионовыми бактериями. Карбоксилирование пирувата, приводящее к образованию щавелевоуксусной кислоты, получило название реакции Вуда — Веркмана. У эубактерий обнаружены различные реакции карбоксилирования пирувата или его фосфорилированного производного. Показано, что реакции карбоксилирования имеют место у всех гетеротрофных прокариот, а также в клетках всех эукариотных организмов, включая высшие растения и животных. Кроме того, в больших масштабах в природе реакции связывания CO2 осуществляются автотрофными. организмами в процессе хемо- и фотосинтеза.
В пропионовокислом брожении мы имеем дело с реализацией третьей возможности превращения пирувата — его карбоксилированием, приводящим к возникновению нового акцептора водорода — ЩУК. Восстановление пировиноградной кислоты в пропионовую у пропионовокислых бактерий протекает следующим образом (рис. 54). Пировиноградная кислота карбоксилируется в реакции, катализируемой биотинзависимым ферментом, у которого биотин выполняет функцию переносчика CO2. Донором CO2-группы служит метилмалонил-КоА. В результате реакции транскарбоксилирования образуются ЩУК и пропионил-КоА:
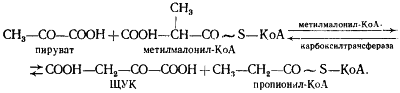
Рассмотрим теперь дальнейшую судьбу каждого из двух продуктов реакции, а также вопрос о происхождении одного из субстратов реакции — метилмалонил-КоА. (Основным источником пировиноградной кислоты служит процесс гликолитического расщепления гексоз или окислительные превращения, если в качестве субстрата брожения используют, например, диоксиацетон или глицерин.)
ЩУК в результате трех ферментативных этапов (аналогичных реакциям 6, 7, 8 цикла трикарбоновых кислот, см. рис. 92) превращается в янтарную кислоту:
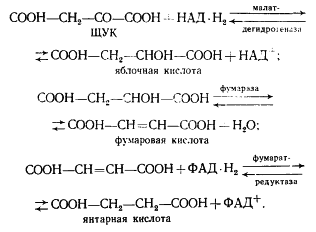
Следующая реакция заключается в переносе КоА-группы с пропионил-КоА на янтарную кислоту (сукцинат), в результате чего образуется сукцинил-КоА и пропионовая кислота:
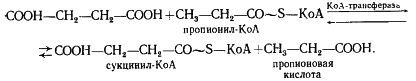
Образовавшаяся пропионовая кислота выводится из процесса и накапливается вне клетки. Сукцинил-КоА превращается в метилмалонил-КоА:
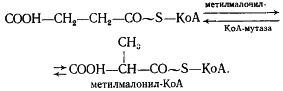
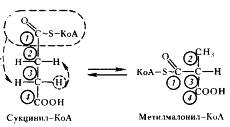
В состав кофермента метилмалонил-КоА-мутазы входит витамин B12. Перегруппировки типа, указанного в приведенном выше уравнении, характерны для реакций, катализируемых ферментами, содержащими витамин B12. В описанной выше реакции происходящие перемещения атомов в молекуле сводятся к двум типам: изменению углерод-углеродных связей и перераспределению водорода между углеродными атомами (рис. 55). Реакция, катализируемая мутазой, — ключевая в пропионовокислом брожении, так как в ней подготавливается субстрат, являющийся предшественником пропионовой кислоты.
Из схемы, представленной на рис. 54, можно видеть, что образование пропионовой кислоты из пировиноградной — результат взаимосвязанного функционирования двух циклов: цикла переноса одноуглеродного фрагмента и цикла переноса кофермента А.
|
| Рис. 55. Механизм реакции, катализируемой метилмалонил-КоА-мутазой. Цифрами в кружочках пронумерованы атомы углерода |
Кофермент А, принимающий активное участие в пропионовокислом брожении, относится к группе мононуклеотидов. Он содержит аденин, Д-рибозу, пирофосфатную группу и пептидоподобное соединение, в состав которого входит пантотеновая кислота — еще один витамин группы В. Функция кофермента А заключается в переносе ацильных групп (RCO~). Ацильная форма КоА представляет собой тиоэфир. Тиоэфирная связь, образующаяся между карбоксильной группой кислоты и тиоловой группой КоА, является высокоэнергетической.
Итак, разобранный выше поток реакций приводит к синтезу пропионовой кислоты. Однако пропионовокислое брожение — более сложный процесс, поскольку наряду с пропионовой кислотой в качестве продуктов брожения образуются уксусная, янтарная кислоты и CO2. В схеме, изображенной на рис. 54, янтарная кислота образуется как промежуточное соединение на пути, ведущем к синтезу пропионата; но она может накапливаться в среде и как конечный продукт. К образованию сукцината, количество которого зависит от содержания CO2 в среде, ведет последовательность реакций, начинающаяся с карбоксилирования ФЕП (рис. 56), в которой остаток фосфорной кислоты ФЕП переносится на неорганический фосфат,