Зрительная сенсорная система
Такое смешение меньше выражено в зрительных системах с тремя типами цветовых рецепторов или при трихроматическом зрении (рис. 4), известном у многих видов, в том числе у человека. Однако некоторое смешение происходит и здесь: можно, например, вызвать впечатление любого цвета посредством разных сочетаний трех монохроматических составляющих, специально подобранных по интенсивности и насыщенности. Без этого было бы невозможно зрительное восприятие цветной фотографии и цветного телевидения.
У многих птиц и рептилий обнаружено больше трех типов цветовых рецепторов. Кроме различных фотопигментов, колбочки этих животных часто содержат окрашенные капельки масла, которые действуют как фильтры и в сочетании с фотопигментом определяют спектральную чувствительность рецептора. Эти капельки обычно не распределены по сетчатке равномерно, а сосредоточены в определенных ее частях.
В 1825 г. чешский физиолог Ян Пуркинье заметил, что красные цвета кажутся ярче синих днем, но с наступлением сумерек их окраска блекнет раньше, чем у синих. Как показал в 1866 г. Шульц, это изменение спектральной чувствительности глаза, названное сдвигом Пуркинье, объясняется переходом от колбочкового зрения к палочковому во время темповой адаптации. Это изменение чувствительности при темновой адаптации можно измерить у человека, определяя порог обнаружения едва видимого света через разные промежутки времени пребывания в темной комнате. По мере адаптации этот порог постепенно снижается.
Долю колбочкового зрения можно определить, направляя очень слабый свет на центральную ямку на сетчатке, в которой палочки отсутствуют. Долю участия в восприятии палочек определяют у «палочковых монохроматов», т. е. у редких индивидуумов, лишенных колбочек. Палочки гораздо чувствительнее к свету, чем колбочки, но содержат только один фотопигмент-родопсин, максимальная чувствительность которого лежит в синей части спектра. Поэтому синие предметы кажутся в сумерках ярче предметов других цветов.
Диапазон интенсивности света, воспринимаемого глазами позвоночных, огромен – они чувствительны к значениям освещенности, различающимся в миллиард раз. Это достигается разными механизмами, особыми для каждого вида. У многих рыб, амфибий, рептилий и птиц пигмент сосудистой оболочки концентрируется между наружными сегментами рецепторов при сильном освещении и оттягивается назад при его ослаблении. У этих животных наружные сегменты колбочек также подвижны. У некоторых рыб и амфибий в противоположном направлении движутся и наружные сегменты палочек. Количество света, достигающего сетчатки, регулируется сокращением зрачка. Этот рефлекс хорошо развит у угрей и камбал, ночных рептилий, птиц и млекопитающих (Prosser, 1973).
ФОТОРЕЦЕПТОРЫ НАСЕКОМЫХ
 |
|
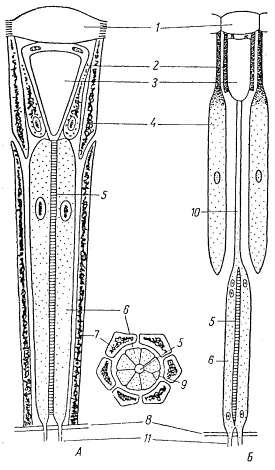
Ретинула образована небольшим числом (как правило, восемью) первичночувствующих фоторецепторных, или ретинулярных, клеток, посылающих свои аксоны в область первого оптического ганглия. Область ретинулы, лежащую на оптической оси омматидия, занимает рабдом, состоящий из рабдомеров, образованных ретинулярными клетками. Отдельный рабдомер можно рассматривать как аналог наружного сегмента фоторецепторов позвоночных. Однако в отличие от наружного сегмента, состоящего из стопки фоторецепторных мембран (дисков), рабдомер представляет собой систему плотно упакованных трубочек (микровилл). Но и в том, и в другом случае мы имеем дело с весьма разветвленной поверхностью наружной клеточной мембраны, которая образует на пути светового луча периодическую структуру, служащую для поглощения света и, по-видимому, содержащую в себе зрительный пигмент. По подсчетам Грибакина (1969), в ретинуле пчелы средняя площадь поверхности одной микровиллы равна 7.5х10 -2 мк2, а площадь поверхности всей фоторецепторной мембраны микровилл, принадлежащих одной зрительной клетке, составляет около 3800 мк2. То есть площадь поверхности фоторецепторной мембраны зрительной клетки пчелы сравнима с таковой для позвоночных. Вместе с тем следует отметить, что использование объема фоторецепторной структуры у пчелы примерно в два раза лучше, чем у позвоночных. Возможно, что такое уплотнение фоторецепторной структуры является одним из преимуществ, даваемых рабдомерной организацией глаза.
Со времен Экснера (Ехnеr, 1891) сложные глаза членистоногих принято относить к одному из двух типов — суперпозиционному или аппозиционному – в зависимости от способа образования изображения. Однако, как показали последующие исследования, между глазами обоих типов существуют и другие более глубокие различия (см., например: Goldsmith, 1964; Мазохин-Поршняков, 1965; Post a. Goldsmith, 1965). Дело в том, что суперпозиционным глазом обладают насекомые, обитающие в условиях слабой освещенности (ведущие главным образом ночной образ жизни), тогда как аппозиционный глаз присущ дневным насекомым. Суперпозиционному глазу свойственна очень высокая светочувствительность (и большая общая светосила) при малой скорости адаптации, причем важная роль в процессе адаптации принадлежит миграции гранул экранирующего пигмента (за счет миграции пигмента чувствительность суперпозиционного глаза может изменяться, например, на 2 порядка) (Post a. Goldsmith, 1965). Аппозиционный глаз характеризуется высокой скоростью адаптации, отсутствием миграции пигмента при изменении освещенности и значительно меньшей общей светочувствительностью. Учитывая это, Пост и Голдсмит (Post a. Goldsmith, 1965) предложили изменить терминологию и подразделять сложные глаза насекомых на два типа по совокупности их оптико-адаптационных характеристик, называя их соответственно скотопическим и фотопическим типом глаза. Такая классификация, конечно, лучше отражает те сдвиги, которые произошли в изучении зрения насекомых в последнее время (рис. 5).
Благодаря довольно многочисленным электронномикроскопическим работам (Femandez-Mordn, 1956, 1958; Daneel u. Zeutzschel, 1957; Goldsmith a. Philpott, 1957; Wolken, Capenos a. Turauo, 1957; Yasusumi a. Deguchi,1958; Wolken a. Gupta, 1961; Goldsmith, 1962: Грибакин, 1967) общая ультраструктурная организация ретинулярной клетки известна достаточно хорошо.
В фоторецепторах позвоночных структура, поглощающая свет (т. е. наружный сегмент), в значительной степени разобщена с телом клетки, тогда как у членистоногих рабдомеры идут параллельно телам ретинулярных клеток. Возможно, именно этим и объясняется большее быстродействие глаза насекомых по сравнению с глазом позвоночных (у пчелы критическая частота слияния мельканий достигает 300 вспышек в секунду).
В дистальной области клетки (наиболее близкой к кристаллическому конусу) обычно сосредоточено наибольшее количество митохондрий и гранул экранизирующего ретинулярного пигмента [муха Lucilia (Trujillo-Cenoz, 1965); пчела (Грибакин, 1967)]. В этой же области чаще всего встречаются мембраны шероховатой эндоплазматической сети, которая имеет непосредственное отношение к синтезу белка (Porter, 1961). Возможно, такая насыщенность дистальной области клетки важными органоидами свидетельствует о повышенной энергетической активности этой области. Последнее предположение подкрепляется тем, что в аппозиционном глазу плоскость изображения (и, следовательно, область максимальной освещенности) приходится именно на дистальную область ретинулы (Ехnеr, 1891; Vries a. Kuiper, 1958). Электронномикроскопические исследования показывают, что микровиллы рабдомеров связаны с центральной частью клетки системой радиальных тяжей – «мостиков» (табл. XXXVI) (Грибакин, 1969). Эта система по сути дела представляет собой крупную цитоплазматическую цистерну (главная эндоплазматическая цистерна, по Грибакину). которая тянется параллельно рабдомеру, сопровождая его по всей длине зрительной клетки (около 250 мк у пчелы). Удается проследить переход мембраны, окружающей главную цистерну, в мембрану каналов эндоплазматической сети. Интересно отметить, что эта цистерна продолжается вплоть до места отхождения аксона. Примерный подсчет показывает, что объем главной эндоплазматической цистерны зрительной клетки пчелы составляет для темноадаптированного глаза около 150—250 мк3, а объем рабдомера – 75-150 мк3. Далее, удается отметить феномен прилежания митохондрий к мембранам эндоплазматической сети, что свидетельствует о локальных интенсивных энергетических процессах, связанных с потреблением АТФ. Таким образом, цистерна и эндоплазматическая сеть, вероятно, отличаются по ионному составу от цитоплазматического матрикса, что может быть связано с активным переносом ионов и, по-видимому, передачей нервного возбуждения внутри зрительной клетки. Ядро ретинулярной клетки обычно вытянуто по длине клетки. У некоторых насекомых (например у восковой моли) оно способно перемещаться вдоль клетки при изменении освещенности (Post a. Goldsmith, 1965).
В проксимальной области ретинулярной клетки под электронным микроскопом видны многочисленные протонейрофибриллы, характерные для аксона; митохондрии обычно смещены в периферическую область,. что также характерно для аксона; рабдомер здесь постепенно сходит на нет. Проксимальный конец рабдома, представляющий собой оптический волновод обычно закрыт «оптической пробкой» (Грибакин, 1967), состоящей из утолщений интерретинулярных тяжей, заполненных гранулами экранирующего пигмента. Такая «пробка», очевидно, препятствует проникновению света в более высокие отделы зрительного тракта, где свет (и в особенности ультрафиолетовое излучение) может вызывать нарушение работы клеток оптических центров.
|
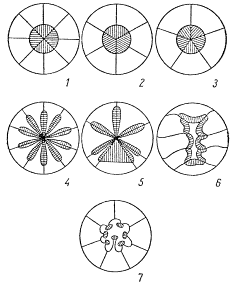 |
В настоящее время ведутся дискуссии о том, что является функциональной единицей сложного глаза – омматидий или отдельная ретинулярная клетка (см., например: Goldsmith, 1964). В пользу второго предположения говорит тот факт, что клетки сложного глаза различаются не только по спектральной чувствительности и реакции на положение плоскости поляризации падающего света (Goldsmith, 1964; Мазохин-Поршняков, 1965; Shaw, 1966, 1967), но и по своим морфологическим характеристикам (рис. 6). Так, например, из электронных микрофотографий Фернандес-Морана (Fernandez-Moran, 1958) видно, что ретинула суперпозиционного (или скотопического) глаза ночной тропической бабочки Erebus odora содержит семь рабдомеров, один из которых резко отличается от остальных значительно большей площадью поперечного сечения. Возможно, клетка, образующая этот рабдомер, имеет и наибольшую светочувствительность (по сравнению с остальными клетками, входящими в ретинулу).
В последнее время показано (Грибакин, 1967), что ретинула аппозиционного (или фотопического) глаза пчелы Apis mellifera включает в себя клетки трех типов, отличающиеся площадью поперечного сечения рабдомеров,. диаметром микровилл, а также глубиной расположения ядра. Эти типы клеток воспринимают разную длину излучения, т. е. обусловливают цветовое зрение пчелы. Однако даже электронный микроскоп не позволяет пока увидеть пути синтеза зрительного пигмента в клетке, изучить его локализацию. Более того, изучение зрительных пигментов насекомых сильно осложнено по меньшей мере двумя причинами. Во-первых, структуры, содержащие зрительный пигмент, находятся в центре (точнее, в глубине) каждой ретинулы, что затрудняет получение фракций рабдомеров с помощью методов, которые обычно применяются биохимиками для получения фракций наружных сегментов сетчатки позвоночных. Во-вторых, изучение изолированных препаратов глаза осложняется наличием в каждом омматидии плотного пигментного чехла и оптической «пробки», закрывающих проксимальный конец рабдома.
И все же в последнее время в отношении зрительных пигментов насекомых получено много интересных данных. Так, стало известно, что зрительный пигмент насекомых имеет значительно меньший молекулярный вес (3000-4000), чем молекулярный вес зрительных пигментов позвоночных (27 000-28 000) (Heller, 1969), а следовательно, и диаметр молекулы зрительного пигмента насекомых значительно меньше – около 5 А против 40 – 50 А у позвоночных. Получены доказательства того, что в основе зрения многих насекомых (по-видимому, это справедливо для всех насекомых) лежит ретиналь, который был найден у пчелы, домашней мухи, некоторых прямокрылых, стрекоз, жуков, бабочек (Goldsmith, 1958; Wolken, Bowness a. Scheer, 1960; Briggs, 1961). При этом интересно, что Голдсмиту (Goldsmith, 1958) удалось извлечь зрительный пигмент из сложного глаза пчелы не детергентамп, а простым фосфатным буфером; после освещения раствор зрительного пигмента обесцвечивался, освобождая ретиналь. В 1964 г. Голдсмит и Уорнер (Goldsmith a. Warner, 1964) четко доказали, что зрительная система рабочей пчелы строится на основе витамина А (ретинола); в темноте витамин А окисляется до ретиналя, а на свету ретиналь переходит в витамин А. Голдсмит и Уорнер обнаружили также, что у пчелы витамин А содержится только в голове, точнее в глазах. По их мнению, никаких метаболических резервов витамина А или ретиналя ни в