Нейрофизиологические механизмы аномального сексуального поведения
Было обнаружено, что у ЛБВИ, по сравнению с ГН, достоверное повышение межполушарной когерентности в задневисочных и париетальных областях неокортекса отмечалось в тета- и альфа-диапазонах ЭЭГ при активном бодрствовании с открытыми глазами. У ЛВИ, по сравнению с ГН, статистически значимое повышение МКОГ в височных и париетальных зонах коры головного мозга количественно было более выражено и наблюдалось во всех ЭЭГ-диапазонах не только при ОГ, но и при других функциональных состояниях (рис. 6.6).
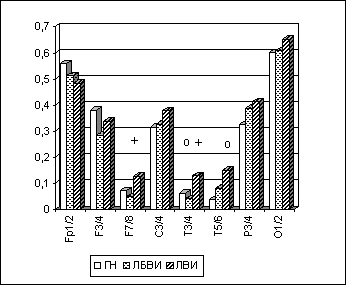
Рис. 6. Бета-МКОГ у лиц с искажениями половой идентичности.
Примечания: Межгрупповые статистически достоверные различия (p<0.05 по LSD-тесту) в отдельных ЭЭГ-отведениях для пары "группа нормы-лица с выраженными искажениями половой идентичности" (ГН-ЛВИ) на рисунке обозначены кружком (о); для пары "лица без выраженных искажений половой идентичности - лица с выраженными искажениями" (ЛБВИ-ЛВИ) - крестиком (+).
При анализе сдвигов в полушарной асимметрии (по ЛАСМ) было обнаружено, что клиническая группа ЛБВИ достоверно не отличалась от ГН, в то время как у лиц с выраженными нарушениями половой идентичности картина была совершенно другой. Отмечалось статистически значимое генерализованное (сочетание факторов "группа * полушарие") изменение полушарных отношений в группе ЛВИ во всех ЭЭГ-диапазонах при различных функциональных состояниях (прежде всего при ЗГ и ОГ). Спектральная мощность ЭЭГ у ЛВИ по сравнению с ГН была ниже в правом и/или выше в левом полушарии. Причем, в бета-1-диапазоне ЛАСМ у ЛВИ был достоверно выше в левом полушарии не только относительно ГН, но и относительно ЛБВИ (рис. 6.7).
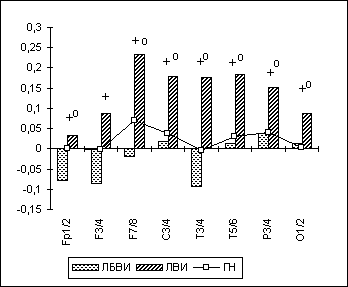
Рис. 7. Полушарная асимметрия по бета-ЛАСМ при ОГ у лиц с искажениями половой идентичности.
Примечания: На рисунке представлены значения индекса полушарной асимметрии (по ЛАСМ) в отдельных парах симметричных ЭЭГ-отведений ("ЛАСМ слева" минус "ЛАСМ справа"). Межгрупповые статистически достоверные различия обозначены так же, как на рис. 6.6.
Таким образом, исходя из полученных результатов, можно констатировать, что существенное изменение корково-подкорковых и полушарных отношений отмечается прежде всего у тех мужчин с парафилиями, у которых имеются выраженные нарушения половой идентичности. Этот факт, принимая во внимание тесную связь расстройств половой идентичности с психосексуальным дизонтогенезом, подтверждает значимость структурно-функциональных нарушений в мозге на ранних стадиях онтогенеза для формирования описанных нами паттернов патофизиологических сдвигов у лиц с сексуальными девиациями.
Раннее органическое поражение головного мозга, приводящее к формированию дизонтогенетических нарушений, может (при наличии определенной генетической предрасположенности) затрагивать не только корковые, но и подкорковые нейрональные структуры. Представляется, что в патофизиологических механизмах таких нарушений на подкорковом уровне могли бы иметь существенное значение дисфункциональные изменения нейрохимических регуляторных систем.
Как указывает А.Ф. Изнак (1997), скопления нейронов, продуцирующих нейротрансмиттеры, узко локализованы. Так, нервные клетки, синтезирующие серотонин, расположены в ядрах шва продолговатого мозга, норадренергические нейроны - в области голубого пятна, дофамин-продуцирующие клетки - в черной субстанции и мезолимбической области. Однако аксональные проекции этих нейронов широко распостранены в мозге. Это обусловливает возникающие при нарушении деятельности данных нейрональных систем изменения функционального состояния широкого круга мозговых структур. В контексте данной работы представляет особый интерес тот факт, что обильные серотонинергические проекции из дорзальных ядер шва получает, в частности, и стриатум (Molliver M.E., 1987; и др.). Одной же из основных функций стриатума, как известно, является организация сложных паттернов автоматизированных действий, нередко филогенетически древних по своему генезу (MacLean P.D., 1978; Хомская Е.Д., 1987; и др.), и могущих быть сопоставленными с поведенческими паттернами при обсессивных и компульсивных расстройствах.
Для объяснения механизмов связи аномального сексуального поведения с нарушениями в деятельности подкорковых структур и нейрохимическими дисфункциональными сдвигами необходимо рассмотреть особенности коморбидности парафилий. Так, установлена связь компульсивных вариантов девиантного сексуального поведения как с синдромом Туретта (Comings D.E., Comings D.G., 1982; Pitman R.K., 1983; Kerbeshian J. et al., 1985; Comings D.E., 1994), так и с обсессивно-компульсивными расстройствами (Coleman E., 1991; и др.), которые, в свою очередь, могут сочетаться и друг с другом (Pauls D.L., Leckman J.F., 1986; Leckman J.F. et al., 1992).
Согласно современным представлениям, синдром Туретта обусловлен прежде всего нарушением функций стриопаллидарной системы (Pauls D.L. et al., 1986; и др.) и генетически определенными изменениями метаболизма серотонина и дофамина (Comings D.E., 1990, 1994 и др.). В частности, обнаружено, что у больных с синдромом Туретта достоверно понижено содержание триптофана в крови (Leckman J.F. et al., 1984; Comings D.E., 1990), а также снижен уровень 5-HT в подкорковых регионах головного мозга (Anderson G.M. et al., 1992).
Патогенез обсессивно-компульсивных расстройств (ОКР) также во многом обусловлен нарушениями серотонинергических и норадренергических механизмов в мозге (МакГлинн Т., Меткалф Г.Л., 1989; Coleman E., 1991; Insel T.R., 1991; Hollander Е., 1993 и др.). На это указывают как данные о том, что у пациентов с ОКР в цереброспинальной жидкости выявлено повышение 5-HIAA (Insel T.R. et al., 1985), так и эффективность лечения больных с ОКР ингибиторами захвата серотонина (Insel T.R., 1991; и др.).
Как и при синдроме Туретта, патофизиологические механизмы обсессивно-компульсивных расстройств тесно связаны с нарушениями в деятельности базальных ганглиев. Существенное значение при этом, по всей видимости, имеют дисфункциональные изменения в системе "стриатум - лобные доли". Об этом говорит, в частности, уменьшение выраженности ОКР после хирургических операций, сопровождающихся пересечением проводящих путей от лобной коры к стриатуму (Bingley T., Persson A., 1978; Fodstad H. et al., 1982). Причем, как было выявлено в ПЭТ-исследованиях, при ОКР преобладают гиперактивационные изменения в хвостатом ядре и орбитальных областях лобной коры (Baxter L.R. et al., 1987, 1988; Nordahl T.E. et al., 1989; Swedo S.E. et al., 1989).
Таким образом, учитывая все эти факты, можно предположить, что общим патофизиологическим базисом для синдрома Туретта, обсессивно-компульсивных расстройств и компульсивных вариантов парафилий могли бы быть гиперактивационные дисфункциональные изменения в нейрональной системе "базальные ганглии - лобные доли", патогенез которых во многом обусловлен нарушениями серотонинергических и норадренергических регуляторных механизмов мозга.
Исходя из этого, относительное повышение активационных (десинхронизирующих ЭЭГ) влияний в лобно-центральных регионах головного мозга, обнаруженное нами у лиц с парафилиями, могло бы быть связано с наличием у них гиперактивационных изменений в системе "базальные ганглии - лобные доли", значимых для формирования компульсивных вариантов аномального сексуального поведения. Однако данное предположение нуждается в тщательной и всесторонней проверке.
2.4. Связь выявленных нейрофизиологических паттернов с особенностями конституционально обусловленных черт личности у испытуемых с парафилиями
Для изучения того, как выявленные изменения полушарных и корково-подкорковых отношений у лиц с парафилиями связаны с "базисными" (биологически обусловленными) характеристиками поведения и личности, было проведено следующее исследование. Праворуким испытуемым с аномальным сексуальным поведением (24 чел.) и лицам контрольной группы нормы (11 чел.) было предложено ответить на вопросы ряда соответствующих психологических тестов (Айзенка, Спилбергера, Цукермана, УСК, Русалова, Элерса и пр.). Только по двум из этих тестов были получены достоверные различия между клиническими группами лиц с аномальным сексуальным поведением с парафилиями (9 чел.) и без парафилий (15 чел.). Это "Опросник структуры темперамента" - ОСТ (Русалов В.М., 1989, 1990), количественно оценивающий предметно-ориентированые и коммуникативные характеристики темперамента, и опросник Элерса "Мотивация к достижению успеха - МДУ (разработан Ehlers T., 1964; адаптирован Котиком М.А., 1987), который оценивает силу мотивации к достижению цели, к успеху. Было выявлено, что у лиц с парафилиями (ЛСП) в сравнении с лицами без парафилий (ЛБП) и с нормой (ГН) достоверно снижены (LSD-test, p<0.05) как "эргичность" (ЭР), "пластичность" (П) и "темп" (Т) предметной деятельности по опроснику Русалова, так и "мотивация к достижению успеха" (МДУ) по опроснику Элерса (рис. 6.8). После этого в группе лиц с аномальным сексуальным поведение были вычислены коэффициенты корреляции (по Спирмену) между данными психометрическими показателями и параметрами МКОГ и полушарной асимметрии (по ЛАСМ). У лиц с аномальным сексуальным поведением снижение "мотивации к достижению успеха" достоверно (p<0.01) положительно коррелировало с относительно меньшими величинами тета-ЛАСМ в правом полушарии (и/или сравнительно большими величинами тета-ЛАСМ в левом) в центральных областях. В то же время снижение у них "эргичности" и "пластичности" предметной деятельности достоверно (p<0.05) коррелировало с повышением межполушарной когерентности в тета-, альфа- и бета-1-диапазонах ЭЭГ в височных и лобных областях головного мозга.
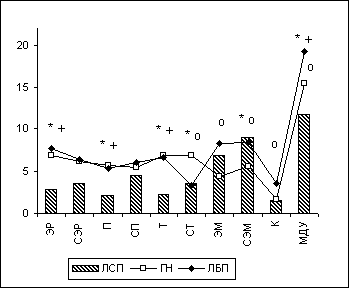
Рис. 8. Значения шкал опросников Русалова (ОСТ) и Элерса (МДУ) у лиц с парафилиями.
Примечания: По оси абсцисс представлены шкалы опросника Русалова (ОСТ): "эргичность" (ЭР), "социальная эргичность" (СЭР), "пластичность" (П), "социальная пластичность" (СП), "темп" (Т), "социальный темп" (СТ), "эмоциональность" (ЭМ), "социальная эмоциональность" (СЭМ), "контрольная шкала" (К). Кроме этого, представлена шкала опросника Элерса "мотивация к достижению успеха" (МДУ). Межгрупповые статистически достоверные различия обозначены так же, как на рис. 6.1.
Полученные результаты, по всей видимости, указывают на то, что характерное для лиц с парафилиями снижение "мотивации к достижению успеха" связано с изменением у них полушарной асимметрии в сторону большей активации правополушарных и/или меньшей активации левополушарных структур. То есть, как вытекает из этих данных и положений, рассмотренных в первой части этой главы, у лиц с расстройствами сексуального влечения, возможно, имеет место относительная функциональная недостаточность "левополушарной" лимбико-кортикальной системы, обеспечивающей мотивационные процессы организации "достижения" эмоционально-позитивного (и социально поощряемого), по сравнению с комплементарной ей "правополушарной" системой организации "избегания" эмоционально-отрицательного (в т.ч. и чувств "социальной" и сексуальной неудовлетворенности или неполноценности).
Кроме этого, можно предположить, что изменение корково-подкорковых отношений в височной области у лиц с парафилиями, приводящее к снижению степени относительной автономности деятельности височных корковых нейрональных систем разных полушарий и выражающееся в повышении МКОГ, обусловливает снижение у них "эргичности" и "пластичности" психических и поведенческих процессов. Это, в свою очередь, может лежать в основе характерной для лиц с расстройствами сексуального влечения устойчивой тенденции к появлению повторных, стереотипно воспроизводимых идеаторных образов и побуждений к совершению однотипных, автоматизированных действий. В пользу такого предположения говорят как данные В.М. Русалова, С.В. Калашникова (1988) о том, что со степенью пластичности, проявляющейся во всех сферах психики, отрицательно коррелирует лобно-затылочная когерентность ЭЭГ в правом полушарии, так и давно установленная связь ригидности психических процессов при эпилепсии преимущественно с нарушением деятельности корково-подкорковых структур височной доли (Williams D., 1969; Карлов В.А., 1990; и др.).
То есть у лиц с парафилиями, по-видимому, имеется, как указывал Г.Н Крыжановский и др. (1994), патофизиологический нейрональный базис для поэтапного формирования устойчивой "патологической системы". Однако, как вытекает из полученных результатов, нейрофизиологические механизмы функционирования такой системы могут быть связаны не столько с наличием спонтанно активирующегося "генератора патологически усиленного возбуждения" в головном мозге (Крыжановский Г.Н и др., 1994), сколько со снижением степени автономности деятельности височно-париетальных нейрональных систем разных полушарий и уменьшением относительной независимости протекания комплементарных по отношению друг к другу "лево-" и "правополушарных" нейропсихических процессов. Это, в свою очередь, может затруднять адекватное ситуационно-обусловленное "переключение" с "правополушарной" на "левополушарную" (и обратно) когнитивную, эмоциональную или мотивационную стратегию (т.е., снижать пластичность нейропсихических процессов и стереотипизировать поведение).
2.5. Сравнительный анализ нейрофизиологических паттернов полушарных, зональных и корково-подкорковых отношений у лиц с различными формами парафилий
Учитывая литературные данные о различии отдельных форм парафилий (эксгибиционизм, педофилия versus сексуальный садизм) по полушарной локализации латерализованных церебральных нарушений (Flor-Henry P., 1988, 1991; Langevin R. et al., 1988; Ether R. et al. 1996; и др.) нами на данной выборке праворуких лиц мужского пола с парафилиями был проведен сравнительный анализ особенностей ЭЭГ у испытуемых с разными формами парафилий: у лиц с садизмом - ЛСС (20 чел.) и у лиц с парафилиями без садизма - ЛБС (17 чел., в том числе 10 чел. с педофилией и 7 с эксгибиционизмом), и у праворуких мужчин из группы нормы - ГН (49 чел.).
У обеих групп ЛСС и ЛБС наблюдалось снижение МКОГ по отношению к ГН в лобных и центральных регионах. Однако только у лиц с садизмом по сравнению с ГН отмечалось выраженное достоверное (p<0.05) повышение межполушарной когерентности в височных областях неокортекса в тета-, альфа- и бета-1-диапазонах ЭЭГ при различных функциональных состояниях (рис. 6.9). У лиц же с парафилиями без садистического компонента о повышении МКОГ можно говорить в основном как о тенденции (МКОГ достоверно выше относительно ГН в височных областях только в бета-диапазоне при открытых глазах).
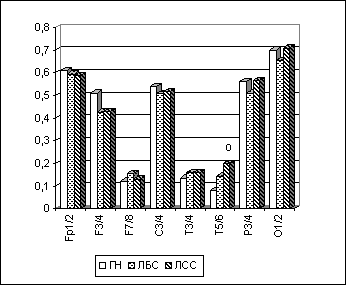
Рис. 9. Тета-МКОГ при ОГ у лиц с различными формами парафилий.
Примечания: Межгрупповые статистически достоверные различия (p<0.05 по LSD-тесту) в отдельных ЭЭГ-отведениях для пары "группа нормы-лица с садизмом"(ГН-ЛСС) обозначены кружком (о).
У ЛСС (по сравнению с ГН) отмечается и определенный зонально-зависимый паттерн распределения спектральной мощности в коре головного мозга во всех ЭЭГ-диапазонах в различных функциональных состояниях, т.е. ЛАСМ у лиц с садизмом сравнительно меньше в лобно-центральных и больше в височных регионах неокортекса. У ЛБС по отношению к ГН также наблюдается сходный зонально-зависимый паттерн распределения ЛАСМ, но только в дельта- и бета-диапазонах.
У лиц с разными формами расстройств сексуального влечения наблюдается сходный по типу, но различный по заинтересованности полушарий паттерн измененных полушарных отношений. У лиц с садизмом отмечается относительно большая временная десинхронизация ЭЭГ-ритмов в центральной и лобной областях правого полушария не только в тета-диапазоне при зрительно-пространственном задании (как и в целом у лиц с парафилиями), но и в альфа- и бета-1-диапазонах в различных функциональных состояниях (рис. 6.10). Это может говорить о существенном повышении именно у садистов активационных влияний в этих зонах правого полушария. У лиц же с педофилией и эксгибиционизмом отмечается уже относительно большая временная синхронизация ЭЭГ-ритмики в бета-1-диапазоне в лобных и височных регионах левого полушария, что может быть связано с определенным снижением активационных влияний в соответствующих областях левого полушария.
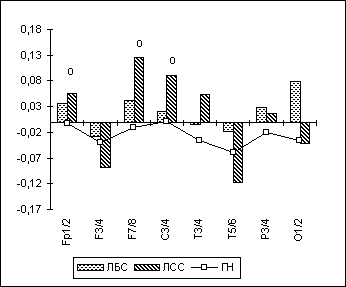
Рис. 10. Полушарная асимметрия по альфа-ЛАСМ при ЗГ у лиц с различными формами парафилий.
Примечания: На рисунке представлены значения индекса полушарной асимметрии (по ЛАСМ) в отдельных парах симметричных ЭЭГ-отведений ("ЛАСМ слева" минус "ЛАСМ справа"). Межгрупповые статистически достоверные различия обозначены так же, как на рис. 6.9.
Кроме этого, у лиц с садизмом по отношению к норме отмечаются достоверно большие величины правополушарной ЭЭГ-реакции, т.е. более выраженное гиперактивационное снижение спектральной мощности в альфа-диапазоне в правом полушарии (особенно в затылочной области) при счете в уме. (рис. 6.11). Возможно, это связано с