Характеристика общих свойств микроорганизмов
| Тип системы | Уровень сложности | Примеры |
| Живые системы |
Открытые системы с самосохраняемой структурой (первая ступень, на которой возможно разделение на живое и неживое) |
Клетки, гомеостат |
|
Живые организмы с низкой способностью воспринимать информацию |
Растения | |
|
Живые организмы с более развитой способностью воспринимать информацию, но не обладающие самосознанием |
Животные | |
|
Системы, характеризующиеся самосознанием, мышлением и нетривиальным поведением |
Люди | |
| Социальные системы | Социальные организации | |
|
Трансцендентные системы или системы, лежащие в настоящий момент вне нашего познания |
Мир живых существ, включая человека, представлен биологическими (живыми) системами различной структурной организации и разного уровня соподчинения, или согласованности. Остановимся на понятии «биологическая система», признаках биологических систем и их уровнях.
Биологические системы – это объекты различной сложности, имеющие несколько уровней структурно-функциональной организации и представляющие собой совокупность взаимосвязанных и взаимодействующих элементов.
Примерами биологических систем являются: клетка, ткани, органы, организмы, популяции, виды, биоценозы, экосистемы разных рангов и биосфера.
Элементарной биологической системой, т.е. системой самого низшего ранга, является клетка, т.к. нет систем еще более низкого ранга, которые бы обладали всей совокупностью признаков, присущих биологическим системам.
Человек занимает особое место среди систем, он не только живет в мире систем, но и сам является системой, персонифицированной составляющей природы.
Гомеостаз
Жизнедеятельность организма, как открытой биосистемы обеспечивается процессами, упорядоченными во времени и пространстве, приуроченными к определённой системе жизнеобеспечения. Эти процессы образуют три потока:
1.информационный 2.поток веществ 3.поток энергии
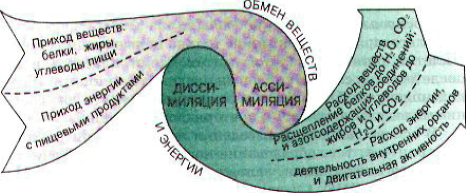
Вследствие целого ряда сложных химических превращений вещества из окружающей среды уподобляются веществам живого организма и из них строится тело. Эти процессы называют ассимиляцией или пластическим обменом.
С другой стороны сложные органические соединения распадаются на простые, при этом утрачивается их сходство с веществами организма и выделяется энергия, необходимая для реакций биосинтеза. Эти процессы называют диссимиляцией или энергетическим обменом.
Обмен веществ обеспечивает гомеостаз организма.
Эти потоки осуществляются непрерывно и составляют условия существования организма в постоянно меняющейся окружающей среде.
Под руководством нервной и эндокринной систем системы жизнеобеспечения поддерживают процессы внутри организма в оптимальном режиме.
"Гомеостаз – относительное динамическое постоянство состава и свойств внутренней среды, а также устойчивость физиологических функций организма".
К. Бернар Гомеостаз - это способность организма поддерживать основные параметры жизнедеятельности на оптимальном уровне. Важным аспектом гомеостаза организма является стабильность развития (морфогенетический гомеостаз) -способность организма к формированию генетически детерминированного фенотипа при минимальном уровне онтогенетических нарушений.
8. Отличия в строении рибосом прокариотов и эукариотов.
Процесс трансляции у про- и эукариот отличается незначительно. Идет он с помощью рибосом - самых мелких и самых многочисленных из клеточных органоидов.
Прокариотическая клетка содержит несколько тысяч рибосом, в эукариотической клетке их в десятки раз больше.
Рибосомы про- и эукариот отличаются по размерам (у прокариот они мельче, чем у эукариот), но принцип их строения одинаков. Состоят рибосомы из двух частей: большой и малой субъединиц. В их состав кроме белков входят РНК. Эти РНК получили название рибосомных, рРНК.
Величину рибосом и составляющих их частей принято указывать в специальных единицах - S (Сведберг). S - это коэффициент седиментации, который характеризует скорость перемещения молекул или частиц в центробежном поле при центрифугировании. Скорость перемещения зависит от массы частиц, их размеров и формы. Величина рибосом прокариот и эукариот - 70S и 80S соответственно.
В рибосомы прокариот входит три разных вида молекул рРНК (16S рРНК - в малую; 23S рРНК и 5S рРНК - в большую субъединицы) и 55 различных белков (21 - в малую и 34 - в большую субъединицы). В состав эукариотических рибосом входят четыре вида молекул рРНК (18S рРНК - в малую; 28S рРНК, 5.8S рРНК и 5S рРНК - в большую субъединицы) и около 80 белков.
В митохондриях и хлоропластах также обнаружены рибосомы. Они характеризуются теми же свойствами и параметрами, что и рибосомы прокариот.
Молекулы рРНК взаимодействуют друг с другом и с белками, образуя компактные структуры - субъединицы рибосом.
У эукариот соединение рРНК с рибосомными белками происходит в ядрышке. В центре ядрышка расположен участок хромосомы, в котором находятся гены рибосомных РНК. Синтезированные рРНК соединяются с рибосомными белками, которые поступили через ядерные поры из цитоплазмы, где они были синтезированы на уже существовавших рибосомах. Они соединяются с молекулами рРНК, образуя субъединицы рибосом. Готовые субъединицы через поры выходят в цитоплазму, где будут участвовать в синтезе белка.
Таким образом, ядрышко - это не только место синтеза рибосомных РНК, но и место сборки субъединиц рибосом. Рибосомы нужны в огромных количествах, поскольку в клетке постоянно идут процессы синтеза белка. Поэтому на хромосомах в тех местах, где расположены гены рРНК, находится громадное скопление молекул: синтезируемые рРНК, пришедшие из цитоплазмы рибосомные белки, собираемые и готовые суъединицы рибосом. Понятно, почему ядрышко является самой плотной частью ядра и клетки.
Размеры ядрышка зависят от функционального состояния клеток. Если в клетке активно идут процессы биосинтеза белков, ядрышко может занимать до 25% от объема ядра.
Ядрышко образуется на тех хромосомах, где есть гены рРНК. Эти участки хромосом называются ядрышковыми организаторами. Например, у человека десять хромосом способны образовывать ядрышки. Каждый ядрышковый организатор представляет собой огромную хроматиновую петлю, так как содержит несколько десятков и даже сотен одинаковых последовательностей - генов рРНК. Эти последовательности расположены друг за другом и синтез рРНК идет одновременно со всех копий. Таким образом увеличивается интенсивность синтеза рРНК, на долю которой приходится более 90 % всей РНК клетки. Ядрышки, образованные разными хромосомами, очень часто сливаются друг с другом. В ядрах клеток человека обычно наблюдают одно, два или три ядрышка.
При начале трансляции малая субъединица рибосомы связывается с определенным участком иРНК, к ним присоединяется тРНК с аминокислотой, а затем с этим комплексом связывается большая субъединица. После этого рибосома готова к выполнению своей функции - синтезу белка. Белки рибосом способны выполнять свои функции только в составе рибосомы -только в комплексе с рРНК и другими рибосомными белками они приобретают небходимую конформацию.
Транспортная РНК, напоминает в развернутой форме клеверный лист. Аминокислота прикреплена к “черешку клеверного листа”, а на вершине листа находится триплет, взаимодействующий с кодоном в иРНК - антикодон.
Роль "заглавной буквы" при трансляции аминокислотной последовательности у прокариот выполняет измененная форма аминокислоты метионина - формилметионин. Ей соответствует кодон АУГ. После завершения синтеза полипептидной цепи формилметионин отщепляется и в готовом белке отсутствует. В том случае, когда триплет АУГ стоит внутри гена, он кодирует неизмененную аминокислоту метионин.
Если кодон и антикодон комплементарны друг другу, то рибосома передвигается относительно иРНК, и следующий кодон становится доступным для взаимодействия со следующей тРНК. Происходит отсоединение первой аминокислоты от первой тРНК и присоединение ее к аминокислоте, которую принесла вторая тРНК. Во время передвижения рибосомы относительно иРНК первая тРНК, свободная от аминокислоты, покидает рибосому. Вторая тРНК остается, соединенная с пептидом из двух аминокислотных остатков, и в рибосому входит третий кодон иРНК для взаимодействия с очередной тРНК и т.д.
Когда в рибосоме оказывается один из трех триплетов (УАА, УАГ, УГА), ни одна тРНК не может занять место напротив него, так как не существует тРНК с антикодонами, комплементарными этим последовательностям. Полипептидной цепи не к чему присоединиться и она покидает рибосому. Синтез белка завершен.
Таким образом, рибосома соединяет в одном месте участников трансляции: иРНК и аминокислоты в комплексе с тРНК, при этом молекулы РНК так ориентированы относительно друг друга, что становится возможным кодон-антикодоновое взаимодействие. Образование пептидной связи контролируется правильностью кодон-антикодонового взаимодействия. Рибосома осуществляет образование пептидной связи и перемещение относительно иРНК.
Молекула информационной РНК взаимодействует не с одной рибосомой, а с несколькими. Каждая рибосома проходит весь путь от "заглавного" кодона до терминирующего, синтезируя одну молекулу белка. Чем больше рибосом пройдет по иРНК, тем больше молекул белка будет синтезировано. Молекула информационной РНК с несколькими рибосомами похожа на нитку бус и называется полирибосомой, или полисомой.
9. Основные фазы роста микроорганизмов.
При выращивании бактерий в жидкой питательной среде наблюдается несколько фаз роста культур:
1. Фаза исходная (латентная) — микробы адаптируются к питательной среде, увеличивается размер клеток. К концу этой фазы начинается размножение бактерий.
2. Фаза логарифмического инкубационного роста — идет интенсивное деление клеток. Длится эта фаза около 5 часов. При оптимальных условиях бактериальная клетка может делиться каждые 15—30 мин.
3. Стационарная фаза — число вновь появившихся бактерий равно числу отмерших. Продолжительность этой фазы выражается в часах и колеблется в зависимости от вида микроорганизмов.
4. Фаза отмирания — характеризуется гибелью клеток в условиях истощения питательной среды и накопления в ней продуктов метаболизма микроорганизмов.
Посевной материал, попав в свежую полноценную среду, сразу не начинает размножения. Этот период называют лаг-фазой I. Только после определенного времени, иногда через несколько часов, клетки приспосабливаются к среде и окружающим условиям. В этот период активируются ферменты, а также, если это необходимо, синтезируются новые ферментные системы. В период лаг-фазы стремительно возрастает количество нуклеиновых кислот, особенно РНК, что необходимо для биосинтеза белков.
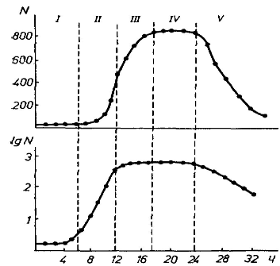
Рис. 1. Фазы роста культуры микроорганизмов: I — лаг-фаза, II — логарифмическая фаза, III — фаза замедленного роста, IV — стационарная фаза, V —фаза отмирания, N — число клеток (млн/мл)
После лаг-фазы следует логарифмическая, или экспоненциальная, фаза II, в которой клетки размножаются с максимальной для данной культуры скоростью. Вследствие этого запас необходимых питательных веществ в среде уменьшается, кроме того, происходит накопление различных продуктов обмена веществ, которые в определенной концентрации могут мешать нормальному протеканию биохимических процессов обмена веществ. Иногда в питательной среде накапливается так много клеток, что не хватает пространства, а конкретнее, поверхности для новых поколений клеток. Именно через поверхность происходят процессы обмена — попадание питательных веществ в клетку и выведение метаболитов. Если клетка находится в тесном окружении других клеток, то площадь поверхности уменьшается и вместе с тем снижается интенсивность процессов обмена. Скорость роста культуры также уменьшается, если сокращается поверхность клеток на единицу объема. Это происходит при увеличении размеров клеток и, таким образом, особенно для клеток сферической формы, значительно ухудшаются условия питания.
Как известно, поверхность сферических тел изменяется пропорционально квадрату их радиуса, а объем — пропорционально кубу радиуса. Лимитирующие поверхности находятся, очевидно, и внутри клеток. В молекулярной биологии накапливается все больше фактов, которые указывают на то, что функционирование жизненных процессов необходимо связывать с биополимерами, мембранными структурами и их поверхностью.
В ходе интенсивного роста и размножения внутри закрытой системы негативное влияние лимитирующих факторов увеличивается и в результате скорость роста уменьшается, наступает фаза замедленного роста III. Через определенное время в стационарной фазе IV масса клеток в питательной среде достигает максимального уровня. Затем наступает период, когда число отмерших и автолизированных клеток превышает прирост. В результате количество биомассы уменьшается — наступает фаза отмирания V.
10. Характеристика молочнокислого и спиртового брожения
Молочнокислое брожение — как обыкновенно принимают, идет согласно следующему уравнению С12H22О 11 (молочный сахар) + H2O = 4С3Н6О3 (молочная кислота), если же сбраживается декстроза или вещества, способные переходить в декстрозу, то гидратации не происходит (Bourquelot): С6Н12О6 = 2С3Н6О3. Возбудителями Молочнокислого брожения являются многие виды бактерий, среди которых можно указать кишечную палочку (Bacterium coli commune), Micrococcus prodigiosus и др., но чаще всего встречается в скисшем молоке Bacterium acidi lactici. Этот аэробный микроорганизм имеет вид коротенькой палочки, иногда перетянутой посередине, иногда состоящей из двух, трех члеников. Споры у него эндогенные, желатину не разжижает и дает на ней белую колонию. Впервые возбудитель М. брожения был описан Пастером (1857) под назв. «фермент или дрожжи М. брожения», чистых культур его Пастер не получил. Первую чистую культуру получил Листер (1877) и назвал выделенный им организм Bacterium lactis. Выделенный Гюппе (1884) из кислого молока микроорганизм, названный им Bacillus acidi lactici, по-видимому, тождествен с описанным Листером. В настоящее время описано много М. бактерий, отличающихся между собой иногда не только морфологически, но и в различной степени выраженной сбраживающей способностью. Продуктом брожения чаще всего является недеятельная молочная кислота (этиледенмолочная кислота, СН 3 — СНОН — СООН или так назыв. молочная кислота брожения), но одновременно с ней могут образоваться одна или обе оптически деятельные кислоты (правая или парамолочная кислота или мясомолочная кислота и левая молочная кислота). Определенные бактерии при определенных условиях образуют одинаковые кислоты; формы, образующие, наприм., правовращающую кислоту при обыкновенных условиях, дают левовращающую кислоту, если температура достигнет 50° Ц. (Лейхманн). В последнее время не осталось никаких сомнений в том, что деятельность этих микроорганизмов обусловливается специфическим энзимом. Ср. Lafar, «Handbuch d. Technischen Mykologie» (Иена) и Lafar, «Бактерии и грибки» (СПб., 1903, где можно найти относящуюся сюда литературу).
Спиртовое брожение осуществляется так называемыми дрожжеподобными организмами, а также некоторыми плесневыми грибками. Суммарную реакцию спиртового брожения можно изобразить следующим образом:
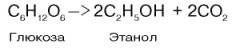
Механизм реакции спиртового брожения чрезвычайно близок к гликолизу. Расхождение начинается лишь после этапа образования пирувата. При гликолизе пируват при участии фермента ЛДГ и кофермента НАДН восстанавливается в лактат. При спиртовом брожении этот конечный этап заменен двумя другими ферментативными реакциями – пируватдекарбо-ксилазной и алкогольдегидрогеназной.
В дрожжевых клетках (спиртовое брожение) пируват вначале подвергается декарбоксилированию, в результате чего образуется ацетальдегид. Данная реакция катализируется ферментом пируватдекарбоксилазой, который требует наличия ионов Mg и кофермента (ТПФ):
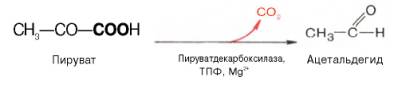
Образовавшийся ацетальдегид присоединяет к себе водород, отщепляемый от НАДН, восстанавливаясь при этом в этанол. Реакция катализируется ферментом алкогольдегидрогеназой:
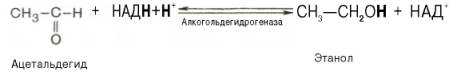
Таким образом, конечными продуктами спиртового брожения являются этанол и СО2, а не молочная кислота, как при гликолизе.
Процесс молочнокислого брожения имеет большое сходство со спиртовым брожением. Отличие заключается лишь в том, что при молочнокислом брожении пировиноградная кислота не декарбоксилируется, а, как и при гликолизе в животных тканях, восстанавливается при участии ЛДГ за счет водорода НАДН.
Известны 2 группы молочно-кислых бактерий. Бактерии одной группы в процессе брожения углеводов образуют только молочную кислоту, а бактерии другой из каждой молекулы глюкозы «производят» по одной молекуле молочной кислоты, этанола и СО2.
Существуют и другие виды брожения, конечными продуктами которых могут являться пропионовая, масляная и янтарная кислоты, а также другие соединения.
11. Характеристика основных потребностей микроорганизмов в макро- и микроэлементах. Ауксотрофы и прототрофы.
Для роста и размножения бактерий, а, следовательно, и для их питания, необходимы различные химические соединения, растворенные в воде. По количественному вкладу в построение клетки различают макро- и микроэлементы. К макроэлементам относят 10 элементов таблицы Менделеева: углерод, водород, кислород, азот, серу, калий, кальций, фосфор, магний, железо. Микроэлементы нужны бактериям в очень малых, следовых, количествах, они представлены марганцем, молибденом, цинком, медью, кобальтом, никелем, хлором, бромом и некоторыми другими металлами и неметаллами. Большинство из них содержится в виде примесей в макроэлементах или может попадать в питательные среды из стеклянной посуды, воды или воздуха. Некоторые бактерии могут обходится и без микроэлементов.
Для роста микроорганизмов так же необходим азот, который входит в состав органических соединений или солей в разной степени восстановления. Это могут быть соли аммония, нитраты или отдельные аминокислоты. Для удовлетворения потребности бактерий в азоте используют также продукты неполного расщепления белков животного происхождения - гидролизаты , пептоны и сложные белковые смеси - нативную сыворотку животных, асцитическую жидкость и др.
Кроме углерода, азота и других химических элементов, многие бактерии нуждаются в факторах роста, к которым относятся витамины, основания нуклеиновых кислот и другие биологически активные вещества. По этому признаку микроорганизмы можно разделить на две группы: ауксотрофы , для которых в среде необходимо наличие одного или нескольких факторов роста и прототрофы , они в факторах роста не нуждаются.
12. Механизм регуляции активности ферментов в микроорганизмах.
Поскольку практически все реакции в клетке катализируются ферментами, регуляция метаболизма сводится к регуляции интенсивности ферментативных реакций. Скорость последних может регулироваться двумя основными способами: путем изменения количества ферментов и/или изменения их активности, т. с. степени испольвания их каталитического потенциала.
Регуляция активности ферментов
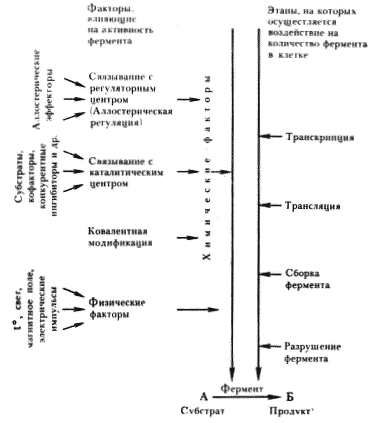
Рис. 28. Регуляторные воздействия на уровень клеточных метаболитов (продуктов)
Факторы, регулирующие активность ферментов, разнообразны по своей природе (рис. 28). Физические факторы (температура, давление, свет, магнитное поле, электрические импульсы оказывают менее специфическое действие, чем химические. В свою очередь действие последних также может быть разделено на несколько типов. Одни химические вещества связываются с активным центром фермента, например субстраты, кофакторы, конкурентные ингибиторы, что приводит к изменению ферментативной активности. Другие вещества взаимодействуют со специальными участками на поверхности молекулы определенного типа фермента, не имеющими непосредственного отношения к центрам каталитической активности, но тем не менее приводящими к ее изменению.
Наконец, активность некоторых ферментов регулируется путем химической модификации их молекулы, в основе которой лежит ковалентное обратимое связывание с ферментом определенной группировки, что приводит к изменению его активности. У прокариот известны две ферментные системы, активность которых регулируется таким путем. Глутаминсинтетаза E. coli, катализирующая синтез глутамина, существует в двух формах, различающихся присутствием в одной из них остатка адениловой кислоты. Присоединение его с помощью ковалентной связи, катализируемое соответствующим модифицирующим ферментом, приводит к образованию менее активной аденилированной глутаминсинтетазы:
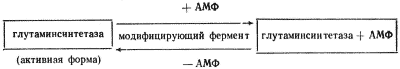
Удаление адениловой группы, ведущее к возникновению деаденилированной формы фермента, резко повышает его каталитическую активность. Аналогичный механизм регулирования активности фермента путем присоединения и удаления остатка уксусной кислоты (ацетилирование — деацетилирование) обнаружен для цитратлиазы у фотосинтезирующей бактерии Rhodopseudomonas gelatinosa. В этом случае активна ацетилированная форма фермента.
Наиболее быстрым, точным и тонким механизмом регуляции активности ферментов является регуляция, которой подвергается определенный тип ферментов, получивших название аллостерических21. Эти ферменты, как правило, занимают ключевые позиции в обмене веществ, располагаясь в "стратегических" пунктах клеточного метаболизма — начале метаболических путей или местах разветвлений, где расходятся или сходятся несколько путей.
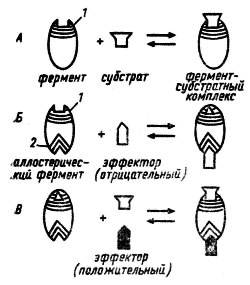
Рис. 29. Связывание субстрата с ферментом (А) и действие отрицательного (Б) и положительного (И) эффектора на каталитическую активность аллостерического фермента: 1 — каталитический центр; 2 — регуляторный центр (no Schlegel, 1972)
Аллостерические ферменты имеют каталитический и регуляторный (аллостерический) центры, пространственно разобщенные, но функционально тесно взаимосвязанные. Каталитическая активность фермента меняется в результате связывания с его регуляторным центром определенных метаболитов, называемых эффекторами. Кроме конечных продуктов данного пути, эффекторами могут быть субстраты ферментов, а также некоторые конечные продукты родственных метаболических путей. Если действие эффектора приводит к понижению каталитической активности фермента, такой эффектор называется отрицательным, или ингибитором. Положительным называют эффектор, действие которого повышает каталитическую активность фермента. Положительным эффектором, или активатором, чаще всего бывает субстрат данного фермента.
Связывание эффектора с регуляторным центром приводит к изменению сродства фермента к субстрату в результате какого-то конформационного изменения фермента (рис. 29).
Наиболее простой случай аллостерической регуляции — регуляция первого фермента неразветвленного биосинтетического пути его конечным продуктом. Если конечный продукт накапливается в избытке, он подавляет активность первого фермента в процессе, называемом ингибированием по принципу обратной связи Примером такого типа регулирования является ингибирование биосинтеза L-изолейцина (рис. 30) Первый фермент на пути синтеза L-изолейцина L-треониндезаминаза является аллостерическим и ингибируется только L-изолейцином.
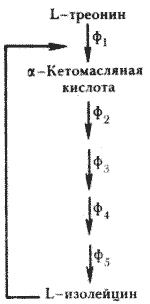
Рис. 30. Регуляция биосинтеза L-изолейцина по механизму отрицательной обратной связи; ф, — треониндезаминаза; ф — фз — ферменты, катализирующие промежуточные стадии биосинтеза L-изолейцина. Стрелкой показано ингибирование треониндезамнназы L-изолейцином
13. Механизм поглощения субстратов у микроорганизмов.
Основной источник энергии в клетке - окисление субстратов кислородом воздуха. Этот процесс осуществляется тремя путями: присоединением кислорода к атому углерода, отщеплением водорода или потерей электрона. В клетках окисление протекает в форме последовательного переноса водорода и электронов от субстрата к кислороду. Кислород играет в этом случае роль восстанавливающегося соединения (окислителя). Окислительные реакции протекают с высвобождением энергии. Для биологических реакций характерны сравнительно небольшие изменения энергии. Это достигается за счет дробления процесса окисления на ряд промежуточных стадий, что позволяет запасать ее небольшими порциями в виде макроэргических соединений (АТФ). Восстановление атома кислорода при взаимодействии с парой протонов и электронов приводит к образованию молекулы воды.
Тканевое дыхание
Это процесс потребление клетками тканей организма кислорода, который участвует в биологическом окислении. Такой вид окисления называют аэробным окислением. Если конечным акцептором в цепи переноса водорода выступает не кислород, а другие вещества (например пировиноградная кислота), то такой тип окисления называют анаэробным.
Т.о. биологическое окисление - это дегидрирование субстрата с помощью промежуточных переносчиков водорода и его конечного акцептора.
Дыхательная цепь (ферменты тканевого дыхания) - это переносчики протонов и электронов от окисляемого субстрата на кислород. Окислитель - это соединение, способное принимать электроны. Такая способность количественно характеризуется окислительно-восстановительным потенциалом по отношению к стандартному водородному электроду, рН которого равен 7,0. Чем меньше потенциал соединения, тем сильнее его восстанавливающие свойства и наоборот.
Т. о. любое соединение может отдавать электроны только соединению с более высоким окислительно-восстановительным потенциалом. В дыхательной цепи каждое последующее звено имеет более высокий потенциал, чем предыдущее.
Дыхательная цепь состоит из:
1.НАД - зависимой дегидрогеназы;
2.ФАД- зависимой дегидрогеназы;
3.Убихинона (КоQ);
4.Цитохрмов b, c, a+a3 .
НАД-зависимые дегидрогеназы. В качестве кофермента содержат НАД и НАДФ. Пиридиновое кольцо никотинамида способно присоединять электроны и протоны водорода.
ФАД и ФМН-зависимые дегидрогеназы содержат в качестве кофермента фосфорный эфир витамина В2 (ФАД).
Убихинон (КоQ) отнимает водород у флавопротеидов и превращается при этом в гидрохинон.
Цитохромы - белки хромопротеиды, способные присоединять электроны, благодаря наличию в своем составе в качестве простетических групп железопорфиринов. Они принимают электрон от вещества, являющегося немного боле сильным восстановителем, и передают его более сильному окислителю. Атом железа связан с атомом азота имидазольного кольца аминоксилоты гистидина с одной стороны от плоскости порфиринового цикла, а с другой стороны с атомом серы метионина. Поэтому потенциальная способность атома железа в цитохромах к связыванию кислорода подавлена.
В цитохроме с порфириновая плоскость ковалентно связана с белком через два остатка цистеина, а в цитохромах b и а, она ковалентно не связано с белком.
В цитохроме а+а3 (цитохромоксидазе) вместо протопорфирина содержатся порфирин А, который отличатся рядом структурных особенностей. Пятое координационное положение железа занято аминогруппой, принадлежащей остатку аминосахара, входящего в состав самого белка.
В отличии от гема гемолгобина атом железа в цитохромах может обратимо переходить из двух в трехвалентное состояние это обеспечивает транспорт электронов (См. подробнее приложение 1 "Атомная и электронная структура гемопротеинов ").
Механизм работы электронтранспортной цепи
Наружная мембрана митохондрии (рис. 4.8.1) проницаема для большинства мелких молекул и ионов, внутренняя почти для всех ионов (кроме протонов Н) и для большинства незаряженных молекул.
Все вышеперечисленные компоненты дыхательной цепи встроены во внутреннюю мембрану. Транспорт протонов и электронов по дыхательной цепи обеспечивается разностью потенциалов между ее компонентами. При этом каждое увеличение потенциала на 0,16 В освобождает энергию, достаточную для синтеза одной молекулы АТФ из АДФ и Н3РО4. При потреблении одной молекулы О2 образуется 3 АТФ.
Процессы окисления и образования АТФ из АДФ и фосфорной кислоты т.е. фосфорилирования протекают в митохондриях. Внутренняя мембрана образует множество складок - крист. Пространство органиченное внутренней мембраной - матриксом. Пространство между внутренней и наружной мембранами называется межмембранным.
14. Характеристика пентозофосфатного пути расщепления глюкозы
Открытие пути прямого окисления углеводов, или, как его называют, пентозофосфатного цикла, принадлежит О. Варбургу, Ф. Липману, Ф. Дикенсу и В.А. Энгельгарду. Расхождение путей окисления углеводов – классического (цикл трикарбоновых кислот, или цикл Кребса) и пентозофос-фатного – начинается со стадии образования гексозомонофосфата. Если глюкозо-6-фосфат изомеризуется во фруктозо-6-фосфат, который фосфо-рилируется второй раз и превращается во фруктозо-1,6-бисфосфат, то в этом случае дальнейший распад углеводов происходит по обычному гликолитическому пути с образованием пировиноградной кислоты, которая, окисляясь до ацетил-КоА, затем «сгорает» в цикле Кребса.
Если второго фосфорилирования гексозо-6-монофосфата не происходит, то фосфорилированная глюкоза может подвергаться прямому окислению до фосфопентоз. В норме доля пентозофосфатного пути в количественном превращении глюкозы обычно невелика, варьирует у разных организмов и зависит от типа ткани и ее функционального состояния.
У млекопитающих активность пентозофосфатного цикла относительно высока в печени, надпочечниках, эмбриональной ткани и молочной железе в период лактации. Значение этого пути в обмене веществ велико. Он поставляет восстановленный НАДФН, необходимый для биосинтеза жирных кислот, холестерина и т.д. За счет пентозофосфатного цикла примерно на 50% покрывается потребность организма в НАДФН.
Другая функция пентозофосфатного цикла заключается в том, что он поставляет пентозофосфаты для синтеза нуклеиновых кислот и многих коферментов. При ряде патологических состояний удельный вес пентозофосфатного пути окисления глюкозы возрастает. Механизм реакций пентозофосфатного цикла достаточно расшифрован.
Пентозофосфатный цикл начинается с окисления глюкозо-6-фосфата и последующего окислительного декарбоксилирования продукта (в результате от гексозофосфата отщепляется первый атом углерода). Это первая, так называемая окислительная, стадия пентозофосфатного цикла. Вторая стадия включает неокислительные превращения пентозофосфатов с образованием исходного глюкозо-6-фосфата (рис. 3). Реакции пен-тозофосфатного цикла протекают в цитозоле клетки.
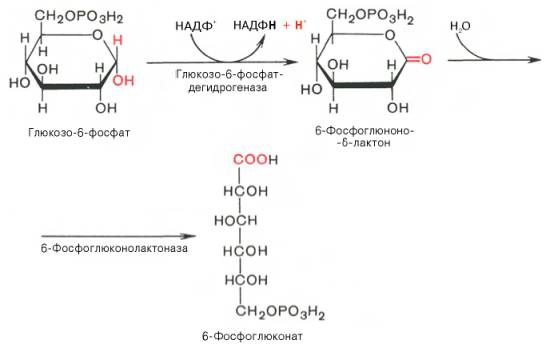
Первая реакция – дегидрирование глюкозо-6-фосфата при участии фермента глюкозо-6-фосфатдегидрогеназы и кофермента НАДФ+. Образовавшийся в ходе реакции 6-фосфоглюконо-δ-лактон – соединение нестабильное и с большой скоростью гидролизуется либо спонтанно, либо с помощью фермента 6-фосфоглюконолактоназы с образованием 6-фос-фоглюконовой кислоты (6-фосфоглюконат):
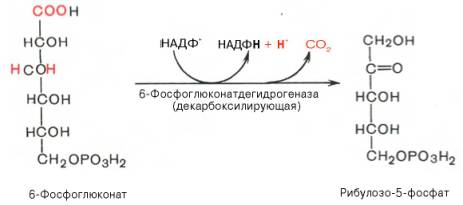
Во второй – окислительной – реакции, катализируемой 6-фосфоглюко-натдегидрогеназой (декарбоксилирующей), 6-фосфоглюконат дегидрируется и декарбоксилируется. В результате образуется фосфорилированная кетопентоза – D-рибулозо-5-фосфат и еще 1 молекула НАДФН:
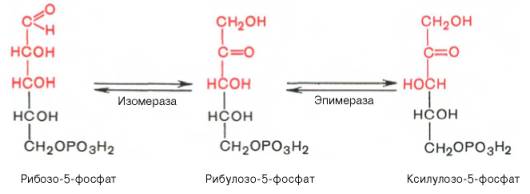
Под действием соответствующей эпимеразы из рибулозо-5-фосфата может образоваться другая фосфопентоза – ксилулозо-5-фосфат. Кроме того, рибулозо-5-фосфат под влиянием особой изомеразы легко превращается в рибозо-5-фосфат. Между этими формами пентозофосфатов устанавливается состояние подвижного равновесия:
При определенных условиях пентозофосфатный путь на этом этапе может быть завершен. Однако при других условиях наступает так называемый неокислительный этап (стадия) пентозофосфатного цикла. Реакции этого этапа не связаны с использованием кислорода и протекают в анаэробных условиях. При этом образуются вещества, характерные для первой стадии гликолиза (фруктозо-6-фосфат, фруктозо-1,6-бисфосфат, фосфотрио-зы), а другие – специфические для пентозофосфатного пути (седогептуло-зо-7-фосфат, пентозо-5-фосфаты, эритрозо-4-фосфат).
Основными реакциями неокислительной стадии пентозофосфатного цикла являются транскетолазная и трансальдолазная. Эти реакции катализируют превращение изомерных пентозо-5-фосфатов:
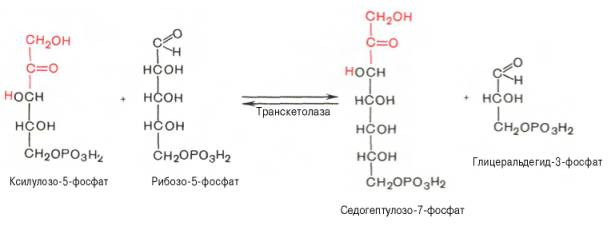
Коферментом в транскетолазной реакции служит ТПФ, играющий роль промежуточного переносчика гликольальдегидной группы от ксилулозо-5-фосфата к рибозо-5-фосфату. В результате образуется семиуглеродный моносахарид седогептулозо-7-фосфат и глицеральдегид-3-фосфат.
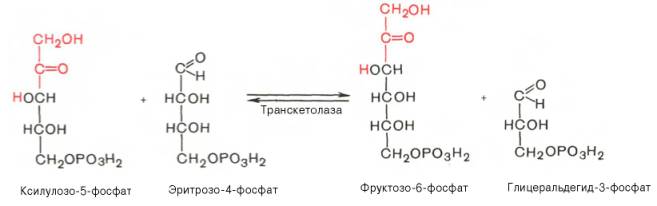
Транскетолазная реакция в пентозном цикле встречается дважды, второй раз – при образовании фруктозо-6-фосфата и триозофосфата в результате взаимодействия второй молекулы ксилулозо-5-фосфата с эритро-зо-4-фосфатом:
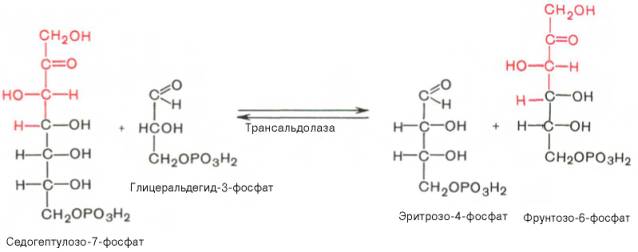
Фермент трансальдолаза катализирует перенос остатка диоксиацетона (но не свободного диоксиацетона) от седогептулозо-7-фосфата на гли-церальдегид-3-фосфат:
Шесть молекул глюкозо-6-фосфата, вступая в пентозофосфатный цикл, образуют 6 молекул рибулозо-5-фосфата и 6 молекул СО2, после чего из 6 молекул рибулозо-5-фосфата снова регенерируется 5 молекул глюко-зо-6-фосфата. Однако это не означает, что молекула глюкозо-6-фосфата, вступающая в цикл, полностью окисляется. Все 6 молекул СО2 образуются из С-1-атомов 6 молекул глюкозо-6-фосфата.
Валовое уравнение окислительной и неокислительной стадий пентозофосфатного цикла можно представить в следующем виде:

или
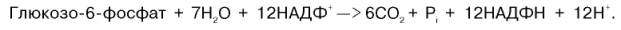
Образовавшийся НАДФН используется в цитозоле на восстановительные синтезы и, как правило, не участвует в окислительном фосфорилировании, протекающем в митохондриях.
15. Особенности пути Ембдена-Мейергофа-Парнаса (гликолиз)
Гексозодифосфатний шлях (гліколіз), або схема Ембдена – Мейєргофа-Парнаса, починається із глюкози і через ряд послідовних реакцій деградації призводить до утворення пірувату . Перша реакція відбувається з витратою енергії у вигляді макроергічного зв'язку АТФ і пов'язана з утворенням фосфорильованого похідного глюкози - глюкозо-6-фосфату. У наступній реакції