Характеристика общих свойств микроорганизмов
Як найбільш показовий приклад можна навести гомоферментативне молочнокисле бродіння, за якого з пірувату утворюється молочна кислота.
Процес спиртового бродіння відбувається за цією ж схемою, але піруват піддається декарбоксилюванню з утворенням ацетоальдегіду, який потім 'Дновлюється НАД+-залежною алкогольдегідрогеназою до етанолу.
Деякі види ентеробактерій здійснюють бродіння з утворенням цілої серії кислот, серед яких домінує мурашина, яка потім може піддаватись утилізації під дією ферменту форміатгідрогенази до С02 і Н2. Такі реакції називають mурашинокислим бродінням. Для ентеробактерій також характерний особли-ним Шлях синтезу етанолу з пірувату через утворення ацетил-КоА з наступним відновленням його до етанолу.
Бродіння з утворенням ацетату може відбуватись декількома шляхам Один з них пов'язаний з відновленням СОг до оцтової кислоти; під час інш го відбувається утворення ацетату з ацетил-КоА.
Більш складним процесом є пропіоновокисле бродіння, яке складається фрагменту циклу Кребса на ділянці від щавлевооцтової до янтарної кислоти Кінцевий продукт бродіння - пропіонова кислота.
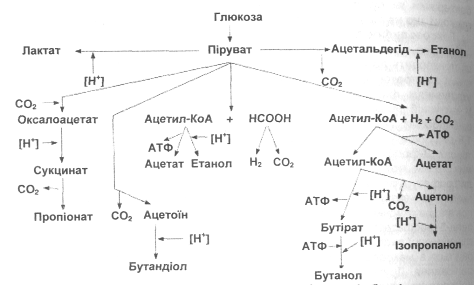
Найбільший спектр кінцевих продуктів утворюється в результаті маслянокислого бродіння: ізопропанол, масляна кислота, бутанол, ацетон, етанол, оцтова кислота.
16. ПУТЬ ЭНТНЕРА — ДУДОРОВА
Общая схема третьего пути расщепления углеводов эубактериями представлена на рис. 67.
Первые два его этапа — фосфорилирование молекулы глюкозы и ее дегидрирование до 6-фосфоглюконовой кислоты — идентичны первым двум этапам окислительного пентозофосфатного пути. Специфичны для пути Энтнера — Дудорова две следующие реакции: 1) дегидратирование 6-фосфоглюконовой кислоты, приводящее к образованию КДФГ-кислоты; 2) расщепление продукта первой реакции на два C3-фрагмента. Конечными продуктами второй реакции являются пировиноградная кислота и 3-ФГА. Последний окисляется в пировиноградную кислоту так же, как в гликолитическом пути. Следовательно, при разложении молекулы глюкозы до пирувата по пути Энтнера — Дудорова образуется 1 молекула АТФ (2 молекулы АТФ синтезируются на отрезке пути 3-ФГА ® пировиноградная кислота минус 1 молекула АТФ, затраченная на фосфорилирование глюкозы), 1 молекула НАД-H2 и 1 молекула НАДФ-H2.
Путь Энтнера — Дудорова имеет важное значение, когда сбраживаемыми субстратами служат глюконовая, маннановая, гексуроновые кислоты или их производные. Он функционирует у довольно широкого круга эубактерии, главным образом, грамотрицательных, получающих энергию в процессе дыхания (энтеробактерии50, виды Azotobacter, Pseudomonas, Alcaligenes, Rhizobium, Spirillum, Xanthomonas, Thiobacillus и др.). У анаэробов он встречается довольно редко. В качестве примера организма, сбраживающего сахара по пути Энтнера — Дудорова, можно привести облигатно анаэробную бактерию Zymomonas mobilis. Однако ее изучение позволяет предполагать, что Z. mobilis — вторичный анаэроб, произошедший от цитохромсодержащих аэробов. Путь Энтнера — Дудорова обнаружен у некоторых клостридиев, что еще раз подчеркивает неоднородность эубактерий, объединенных в эту таксономическую группу.
У энтеробактерий гликолитический и окислительный пентозофосфатный пути функционируют как центральные конститутивные пути метаболизирования углеводов, путь Энтнера — Дудорова — как индуцибельный.
Согласно существующим представлениям путь Энтнера — Дудорова сформировался позднее гликолитического и окислительного пентозофосфатного путей и возник как ответвление последнего, поскольку начала окислительного пентозофосфатного пути и пути Энтнера — Дудорова идентичны и для последнего необходимо было сформировать только два новых фермента (6-фосфоглюконатдегидратазу и КДФГ-альдолазу). Появление пути Энтнера — Дудорова, вероятно, было вызвано высокой потребностью клеток в пирувате, поэтому возникла необходимость сформировать механизм, при помощи которого пируват образовывался бы из исходного субстрата как можно более коротким и прямым путем. Действительно, к получению пирувата по пути Энтнера — Дудорова ведут всего 4 реакции, в то время как в гликолитическом пути для этого требуется 9 ферментативных преобразований.
Как можно видеть из схемы процесса (рис. 67), путь Энтнера — Дудорова имеет несколько точек пересечения с гликолитическим и окислительным пентозофосфатным путями: 6-фосфоглюконовая кислота представляет собой промежуточное соединение пути Энтнера — Дудорова и окислительного пентозофосфатного; пируват и 3-ФГА — промежуточные соединения пути Энтнера — Дудорова и гликолиза.
В природе есть много мест с полным или почти полным отсутствием молекулярного кислорода. Это глубокие слои воды, почвы, илы морей и континентальных водоемов. Особую экологическую нишу для развития анаэробов представляют рубец и кишечник животных и человека. Облигатно анаэробный способ существования широко распространен среди эубактерий. Систематическое изучение анаэробных эубактерий, предпринятое в последние десятилетия, обнаружило неоднородность входящих в эту группу организмов, способных получать энергию в процессах брожения, фотосинтеза и анаэробного дыхания.
Только небольшая часть облигатно анаэробных эубактерий может быть отнесена к первичным анаэробам, т. е. возникшим в докислородную эпоху и сохранившим до настоящего времени основные черты метаболизма того периода в результате обитания в анаэробных экологических нишах: получение энергии в процессе брожения, отсутствие электронтранспортных цепей, слабо развитые биосинтетические способности.
Большинство существующих облигатных анаэробов среди эубактерий имеют вторичное происхождение как следствие повторной адаптации к анаэробным условиям, сопровождающейся, как правило, изменениями деградационного характера: потерей способности взаимодействовать с O2, утратой некоторых компонентов переноса электронов, большей зависимостью от готовых органических соединений среды обитания и т. д. Примером могут служить строго анаэробные эубактерии, составляющие основную микрофлору рубца и пищеварительного тракта животных и человека. Это в большинстве грамотрицательные кокки или палочки, способные сбраживать сахара и/или аминокислоты. У многих из них обнаружены цитохромы b и a и показана способность синтезировать АТФ по механизму мембранзависимого фосфорилирования.
В представленном в этой главе материале проанализированы энергетические процессы, сформированные на первом этапе эволюции жизни на Земле. То, что брожение — наиболее примитивный способ получения энергии организмами, в настоящее время никем не ставится под сомнение. Гораздо сложнее оценить, какой путь в процессе эволюции пройден теми или иными организмами. Очевидно, что при имеющихся возможностях обмена генетической информацией в мире прокариот сохранение их в первоначальном виде маловероятно. Описание представленных в этой главе нескольких групп анаэробных эубактерий, в первую очередь, пропионовокислых бактерий и клостридиев, служит иллюстрацией этого.
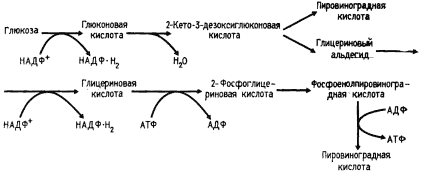
Рис. 67
17. Понятие о ферментах. Их значение и классификация.
Ферменты (от лат. fermentum - брожение, закваска), специфические белки, присутствующие во всех живых клетках и играющие роль биологических катализаторов. Через их посредство реализуется генетическая информация и осуществляются все процессы обмена веществ и энергии в живых организмах. Ферменты бывают простыми или сложными белками, в состав которых наряду с белковым компонентом (апоферментом) входит небелковая часть - кофермент. Эффективность действия ферментов определяется значительным снижением энергии активации катализируемой реакции в результате образования промежуточных фермент-субстратных комплексов. Присоединение субстратов происходит в активных центрах, которые обладают сходством только с определенными субстратами, чем достигается высокая специфичность (избирательность) действия ферментов. Одна из особенностей ферментов - способность к направленному и регулируемому действию. За счёт этого контролируется согласованность всех звеньев обмена веществ. Эта способность определяется пространственность структурной молекулы ферментов. Она реализуется через изменение скорости действия ферментов и зависит от концентрации соответствующих субстратов и кофакторов, рH среды, температуры, а также от присутствия специфических активаторов и ингибиторов (например, адениловых нуклеотидов, карбонильных, сульфгидрильных соединений и др.). Некоторые ферменты помимо активных центров имеют дополнительные, т.н. аллостерические регуляторные центры. Биосинтез ферментов находится под контролем генов. Различают конститутивные ферменты, постоянно присутствующие в клетках, и индуцируемые ферменты, биосинтез которых активируется под влиянием соответствующих субстратов. Некоторые функционально взаимосвязанные ферменты образуют в клетке структурно организованные полиферментные комплексы. Многие ферменты и ферментные комплексы прочно связаны с мембранами клетки или её органоидов (митохондрий, лизосом, микросом и т.д.) и участвуют в активном транспорте веществ через мембраны.
Известно более 20000 различных ферментов, из которых многие выделены из живых клеток и получены в индивидуальном состоянии. Первый кристаллический фермент (уреаза) выделен американским биохимиком Д.Самнером в 1926 г. Для ряда ферментов изучена последовательность аминокислот и выяснено расположение полипептидных цепей в трёхмерном пространстве. В лабораторных условиях осуществлен искусственный химический синтез фермента рибонуклеазы. Ферменты используют для количественного определения и получения различных веществ, для модификации молекул нуклеиновых кислот методами генной инженерии, диагностики и лечения ряда заболеваний, а также в ряде технологических процессов, применяемых в лёгкой, пищевой и фармацевтической промышленностях.
Будучи белками, ферменты обладают всеми их свойствами. Вместе с тем биокатализаторы характеризуются рядом специфических качеств, тоже вытекающих из их белковой природы. Эти качества отличают ферменты от катализаторов обычного типа. Сюда относятся термолабильность ферментов, зависимость их действия от значения рН среды, специфичность и, наконец, подверженность влиянию активаторов и ингибиторов.
По первой в истории изучения ферментов классификации их делили на две группы: гидролазы, ускоряющие гидролитические реакции, и десмолазы, ускоряющие реакции негидролитического распада. Затем была сделана попытка разбить ферменты на классы по числу субстратов, участвующих в реакции. В соответствии с этим ферменты классифицировали на три группы. 1. Катализирующие превращения двух субстратов одновременно в обоих направлениях: А+В)С+D. 2. Ускоряющие превращения двух субстратов в прямой реакции и одного в обратной: А+В)С. 3. Обеспечивающие каталитическое видоизменение одного субстрата как в прямой, так и в обратной реакции: А)В.
Одновременно развивалось направление, где в основу классификации ферментов был положен тип реакции, подвергающейся каталитическому воздействию. Наряду с ферментами, ускоряющими реакции гидролиза (гидролазы), были изучены ферменты, участвующие в реакциях переноса атомов и атомных групп (феразы), в изомеризации (изомеразы), расщеплении (лиазы), различных синтезах (синтетазы) и т. д. Это направление в классификации ферментов оказалось наиболее плодотворным, так как объединяло ферменты в группы не по надуманным, формальным признакам, а по типу важнейших биохимических процессов, лежащих в основе жизнедеятельности любого организма. По этому принципу все ферменты делят на 6 классов.
1. Оксидоредуктазы - ускоряют реакции окисления - восстановления. 2. Трансферазы - ускоряют реакции переноса функциональных групп и молекулярных остатков. 3. Гидролазы - ускоряют реакции гидролитического распада. 4. Лиазы - ускоряют негидролитическое отщепление от субстратов определенных групп атомов с образованием двойной связи (или присоединяют группы атомов по двойной связи). 5. Изомеразы - ускоряют пространственные или структурные перестройки в пределах одной молекулы. 6. Лигазы - ускоряют реакции синтеза, сопряженные с распадом богатых энергией связей. Эти классы и положены в основу новой научной классификации ферментов.
18. Участие микроорганизмов в круговороте веществ
В соответствии со своей ролью и функцией в балансе природы организмы разделяются на три группы. Зеленые растения синтезируют органические вещества, используя энергию солнца и углекислоту, поэтому их называют продуцентами. Животные являются потребителями (коису-ментами); они расходуют значительную часть первичной биомассы для построения своего тела. Тела животных и растений в конце концов подвергаются разложению, при котором органические вещества превращаются в минеральные, неорганические соединения. Этот процесс, называемый минерализацией, осуществляют в первую очередь грибы и бактерии; в балансе природы они служат деструкторами. Таким образом, биоэлементы участвуют в циклических процессах. Здесь уместно коротко остановиться на биогеохимических круговоротах углерода, азота, фосфора и серы.
Круговорот углерода. В круговороте углерода микроорганизмы выполняют функцию, очень важную для поддержания жизни на Земле. Они обеспечивают минерализацию углерода, переведенного зелеными растениями в органические соединения, и тем самым поддерживают весьма неустойчивое равновесие (рис. 1.1). Атмосферный воздух содержит чуть больше 0,03% двуокиси углерода (12 мкМ/л). Фотосинтетиче екая же продуктивность зеленых растений так велика, что запас С02 в атмосфере был бы исчерпан примерно за 20 лет. Это относительно короткий срок в человеческих масштабах времени; ведь считается, что запасов энергии и угля на Земле хватит на срок от 1000 до 3000 лет. Даже если учесть запасы С02 в океанах, то этого газа хватило бы лишь примерно на 2000 лет.
Зеленым растениям пришлось бы вскоре прекратить фиксацию С02, если бы низшие животные и микроорганизмы не обеспечивали возвращение этого газа в атмосферу в результате непрерывной минерализации органического материала. В общем балансе веществ на земном шаре почвенным бактериям и грибам принадлежит не меньшая роль, чем фо-тосинтезирующим зеленым растениям. Взаимозависимость всех живых существ на Земле находит наиболее яркое выражение в круговороте углерода.
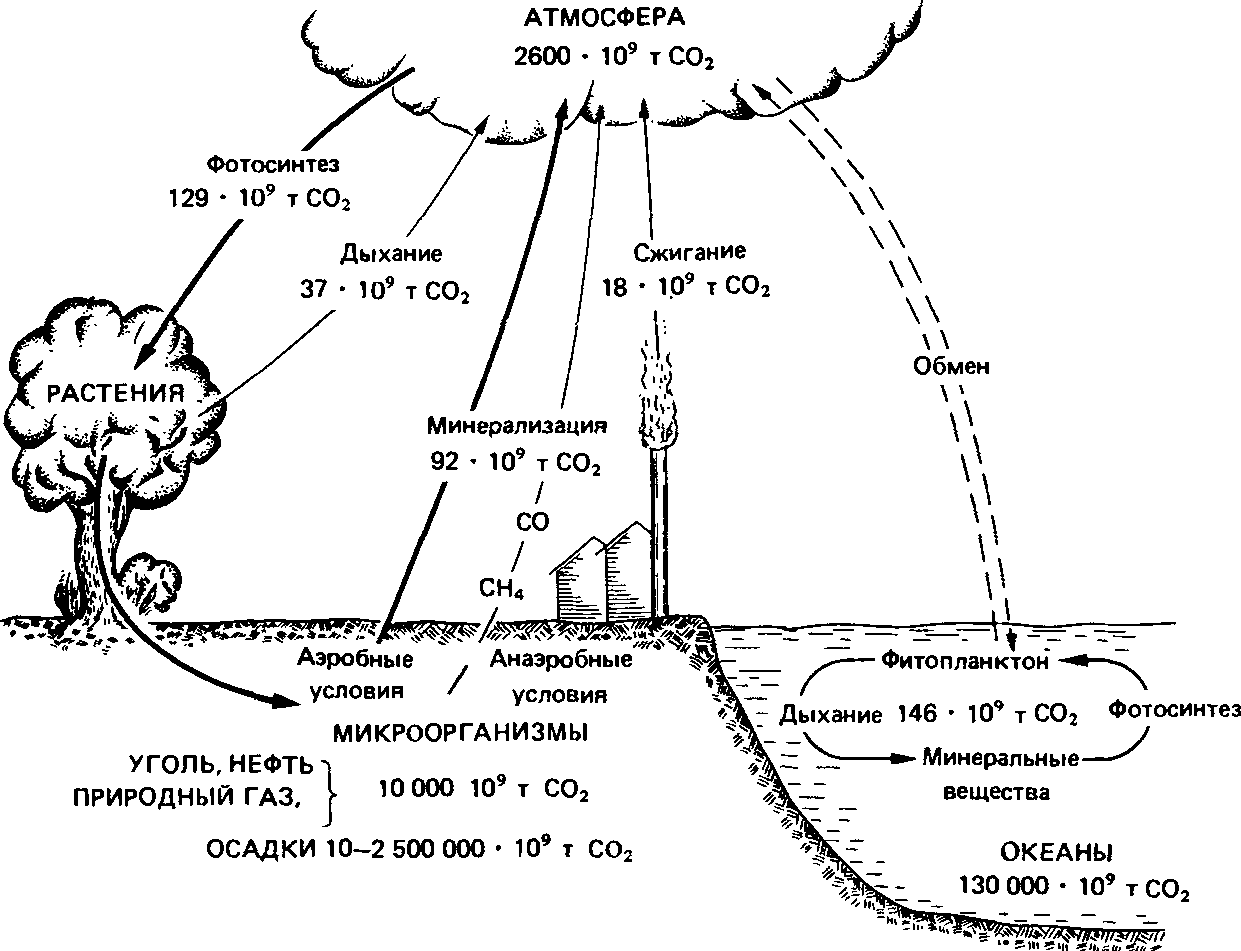
Рис. 1.1. Круговорот углерода в биосфере.
Круговорот азота (рис. 1.2). Центральное место в круговороте азота занимает аммоний. Он является продуктом разложения белков и аминокислот, попадающих вместе с остатками животного и растительного происхождения в почву. В хорошо аэрируемых почвах аммоний подвергается нитрификации; бактерии родов Nitrosomonas и Nitrobacter окис ляют его до нитрита и нитрата. В качестве источника азота растения могут использовать и ассимилировать как аммоний, так и нитрат. В отсутствие кислорода из нитрата рбразуется молекулярный азот (денитри-фикация). Бактерии, участвующие в этом процессе, используют при этом нитрат в качестве окислителя (акцептора водорода), т.е. «дышат» с помощью NO^ вместо 02; в этом случае говорят о «нитратном дыхании». Денитрификация ведет к потере азота почвой. Наряду с этим бактерии способны и к фиксации молекулярного азота. Связывающие азот бактерии живут или свободно в почве (вне симбиоза), или в симбиозе с высшими растениями (симбиотические азотфиксаторы). Основную роль в круговороте азота наряду с животными и растениями играют бактерии.
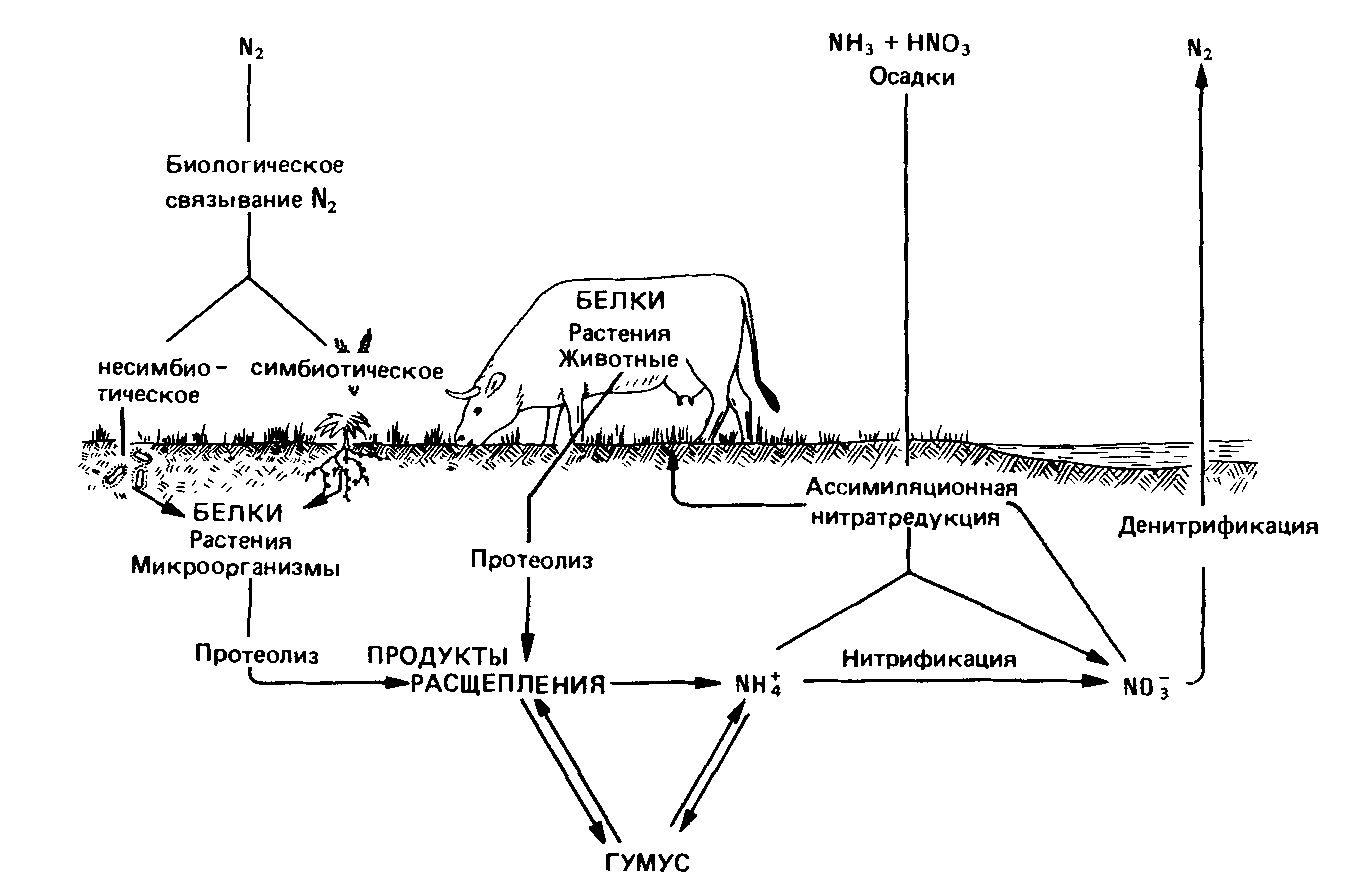
Рис. 1.2. Круговорот азота.
Круговорот фосфора. В биосфере фосфор представлен почти исключительно в виде фосфатов. В живых организмах фосфорная кислота существует в форме эфиров. После отмирания клеток эти эфиры быстро разлагаются, что ведет к освобождению ионов фосфорной кислоты. Доступной для растений формой фосфора в почве служат свободные ионы ортофосфорной кислоты (Н3Р04). Их концентрация часто очень низка; рост растений, как правило, лимитируется не общим недостатком фосфата, а образованием малорастворимых его соединений, таких как апатит и комплексы с тяжелыми металлами. Запасы фосфатов в месторождениях, пригодных для разработки, велики, и в обозримом будущем производство сельскохозяйственной продукции не будет ограничиваться недостатком фосфора; однако фосфат должен быть переведен в раство римую форму. Во многих местах фосфат из удобрений попадает в проточные водоемы и озера. Так как концентрация ионов железа, кальция и алюминия в водоемах невысока, фосфат остается в растворенной форме, что приводит к эвтрофизации водоемов, особенно благоприятной для развития азотфиксирующих цианобактерий. В почвах же из-за образования нерастворимых солей фосфаты чаще всего быстро становятся недоступными для усвоения.
Круговорот серы (рис. 1.3). В живых клетках сера представлена главным образом сульфгидрильными группами в серусодержащих аминокислотах (цистеин, метионин, гомоцистеин). В сухом веществе организмов доля серы составляет 1%. При анаэробном разложении органических веществ сульфгидрильные группы отщепляются десульфуразами; образование сероводорода при минерализации в анаэробных условиях называют также десульфурированием. Наибольшие количества встречающегося в природе сероводорода образуются, однако, при диссими-ляционном восстановлении сульфатов, осуществляемом сульфатредуци-рующими бактериями.
Этот сероводород, образующийся в отсутствие молекулярного кислорода в осадках водоемов, может быть окислен анаэробными фото-трофными бактериями (Chromatiaceae) до серы и сульфата. Когда сероводород проникает в зоны, содержащие 02, он окисляется либо абиотическим образом, либо аэробными серобактериями до сульфата . Серу, необходимую для синтеза серусодержащих аминокислот, растения и часть микроорганизмов получают путем ассимиляционной сульфатредукции; животные же получают восстановленные соединения серы с пищей.
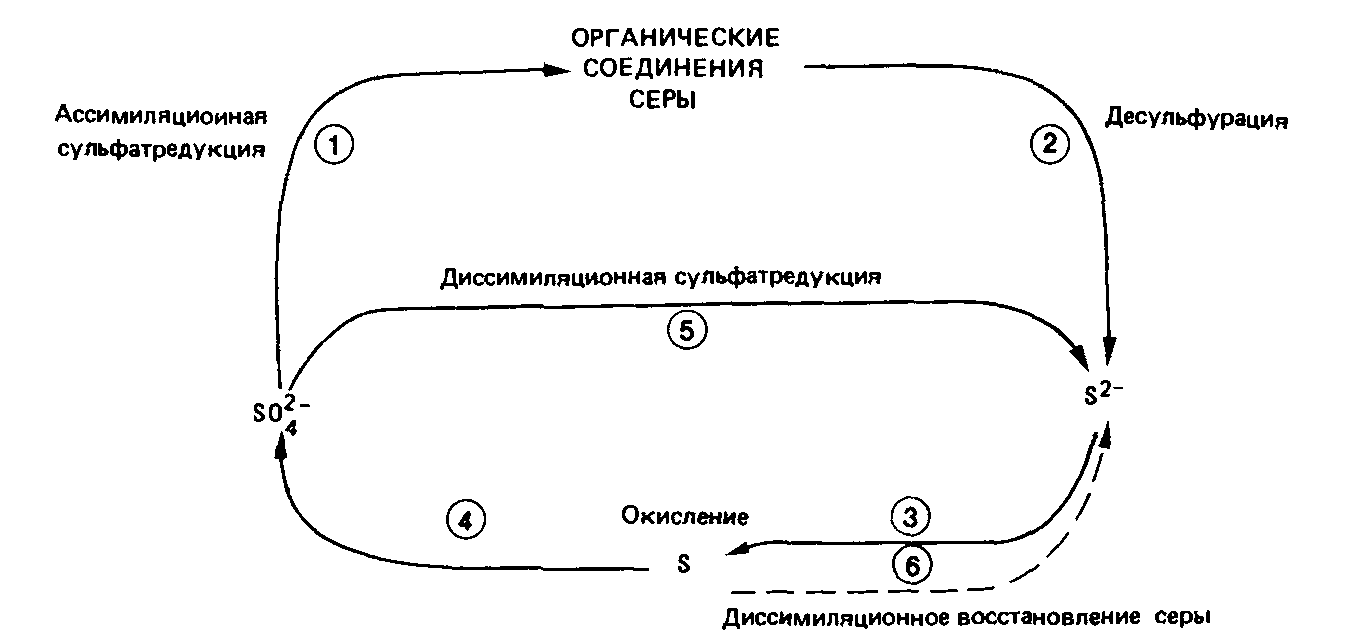
Рис. 1.3. Круговорот серы.
19. Общие принципы регуляции синтеза ферментов.
Регулирование конечным продуктом активности аллостерического фермента определенного биосинтетического пути обеспечивает мгновенную реакцию, приводящую к изменению выхода этого продукта. Если последний оказывается ненужным, отпадает надобность и в ферментах, участвующих в его синтезе. Проявлением максимальной экономичности клеточного метаболизма служат выработанные клеткой механизмы, регулирующие ее ферментный состав. Очевидна целесообразность синтеза только тех ферментов, которые необходимы в конкретных условиях. Показано, что у прокариот в одних условиях фермент может содержаться в количестве не более 1 — 2 молекул, в других — составлять несколько процентов от клеточной массы.
Количество определенного фермента в клетке может регулироваться на нескольких уровнях: на этапе транскрипции, трансляции, а также в процессе сборки и разрушения ферментного белка (см. рис. 28). В иерархии регуляторных воздействий наиболее сложный механизм, контролирующий количество ферментов в клетке, связан с процессом транскрипции. Специфические химические сигналы могут инициировать или блокировать транскрипцию определенного участка ДНК в иРНК. В случае индукции образованная иРНК участвует в определенной последовательности реакций, называемой трансляцией и заканчивающейся синтезом полипептидных цепей. Регуляция белкового синтеза на уровне трансляции может осуществляться на любом из ее этапов, например на этапе инициации, элонгации и др. Не исключена также возможность изменения времени жизни иРНК. под воздействием разных эффекторов, в том числе конечных продуктов метаболических путей. Хотя механизмы регуляции синтеза белка на уровне трансляции еще точно не установлены, ясно, что на этом этапе имеются широкие возможности для регуляции скорости синтеза различных белков.
Известно, что фермент может выполнять метаболическую функцию после приобретения соответствующей структуры. Скорость образования структур высшего порядка также находится под контролем определенных молекул. Таким образом, контроль на уровне сборки функционально активного фермента может играть существенную роль в метаболической регуляции. Наконец, скорость разрушения фермента под воздействием специфических метаболических сигналов будет также определять его концентрацию в клетке.
Регуляция синтеза ферментов на этапе транскрипции основана на том, что "считывание" бактериальных генов происходит избирательно и скорость образования копий соответствующих иРНК (а отсюда и дальнейшая их трансляция в белки) находится под сложным контрольным механизмом. Скорость синтеза ферментов, определяемая этой стадией, может меняться в разной степени. По данному признаку все ферменты делятся на два класса. Ферменты, синтез которых в растущей клетке происходит с постоянной скоростью в результате постоянного транскрибирования соответствующих генов и, следовательно, они присутствуют в клетке в более или менее постоянной концентрации, называются конститутивными. К ним относятся, например, гликолитические ферменты. Метаболические пути, функционирующие с участием конститутивных ферментов, контролируются посредством других регуляторных воздействий, например аллостерического ингибирования.
Кроме этого в бактериальных клетках имеются ферменты, количества которых могут резко меняться в зависимости от состава питательных веществ среды. Это происходит в результате того, что гены, детерминирующие эти ферменты, включаются или выключаются по мере надобности. Их называют индуцибельными. При отсутствии в среде субстратов этих ферментов последние содержатся в клетке в следовых количествах. Если в среду добавить вещество, служащее субстратом определенного фермента, происходит быстрый синтез этого фермента в клетке, т. е. имеет место индукция синтеза фермента. Если же в питательной среде в готовом виде содержится вещество, являющееся конечным продуктом какого-либо биосинтетического пути, происходит быстрое прекращение синтеза ферментов этого пути. Это явление получило название репрессии конечным продуктом. Ферменты, синтез которых подавляется конечным продуктом, могут быть дерепрессированы, т. е. скорость их синтеза превысит обычную, если концентрация конечного продукта упадет до очень низкого уровня. Дерепрессия этих ферментов аналогична явлению индукции.
Репрессия конечным продуктом. Все биосинтетические пути находятся под контролем механизма репрессии конечным продуктом. Точно так же образование большинства анаболических ферментов регулируется путем репрессии их синтеза. Репрессия осуществляется особыми присутствующими в клетке веществами — репрессорами. Факторами, модифицирующими активность репрессоров, могут быть конечные продукты биосинтетических путей, а также промежуточные продукты некоторых катаболических или амфиболических путей.
Репрессия может быть координированной, т. е. синтез каждого фермента данного пути в одинаковой степени подавляется конечным продуктом. Часто синтез ферментов одного пути репрессируется в разной степени. В разветвленных биосинтетических путях механизмы репрессии могут быть модифицированы (как и механизмы ингибирования), чтобы лучше обеспечить регуляцию нескольких конечных продуктов из общего исходного субстрата. Синтез многих ферментов в таких путях репрессируется только при совместном действии всех конечных продуктов. Если реакция на общем участке разветвленного пути катализируется изоферментами, синтез каждого из них находится под контролем "своего" конечного продукта.
Механизм репрессии конечным продуктом на уровне транскрипции стал проясняться с 50-х гг. Большой вклад в это внесли работы Ф. Жакоба и Ж. Моно. Было показано, что наряду со структурными генами, кодирующими синтез ферментов, в бактериальном геноме существуют специальные регуляторные гены. Один из них — ген-регулятор (ген R), функция которого заключается в регуляции процесса транскрипции структурного гена (или генов). Ген-регулятор кодирует синтез специфического аллостерического белка-репрессора, имеющего два центра связывания: один узнает определенную последовательность нуклеотидов на участке ДНК, называемом оператором (ген О), другой — взаимодействует с эффектором. Ген-оператор расположен рядом со структурным геном (генами) и служит местом связывания репрессора. В отличие от операторных генов гены-регуляторы расположены на некотором расстоянии от структурных генов (продукты регулярных генов — репрессоры являются свободно диффундирующими белковыми молекулами).
Часто структурные гены, относящиеся к одному биохимическому пути, объединены в группу, составляющую вместе с оператором единицу транскрипции и регуляции — оперон. Все структурные гены, объединенные в оперон, имеют один операторный участок, локализованной на краю оперона, и координирование регулируются одним репрессором. Оперон представляет собой весьма рациональную и эффективную систему регуляции метаболического пути.
Индукция синтеза ферментов. В большинстве случаев регуляция путем индукции характерна для катаболических путей, где в качестве индукторов выступают обычно субстраты этих путей. Классический пример индуцибельного фермента — (3-галактозидаза Е. coli. Оказалось, что если клетки Е. coli выращивать в среде, содержащей глюкозу, то они не могут использовать лактозу. Если такие клетки поместить в среду, где лактоза — единственный источник углерода, после некоторого периода в них происходит интенсивный синтез фермента (3-галактозидазы, катализирующего гидролиз лактозы на D-глюкозу и D-галактозу. С помощью этого фермента Е. coli может теперь использовать лактозу в качестве единственного источника углерода. Если затем клетки, растущие на среде с лактозой, перенести на среду с глюкозой, синтез (3-галактозидазы прекращается.
Изучение индукции (3-галактозидазы у Е. coli позволило установить, что рост клеток на среде с лактозой происходит не в результате отбора мутантов, у которых способность использовать лактозу есть следствие мутации. Способностью синтезировать этот фермент обладают все клетки. Было также показано, что в процессе индукции происходит не активирование уже имеющегося в клетках фермента (З-галактозидазы, а его синтез de novo из аминокислот.
20. Характеристика химического состава белков.
Изучая химический состав белков, необходимо выяснить, во-первых, из каких химических элементов они состоят, во-вторых, - строение их мономеров. Для ответа на первый вопрос определяют количественный и качественный состав химических элементов белка. Химический анализ показал наличие во всех белках углерода (50-55%), кислорода (21-23%), азота (15-17%), водорода (6-7%), серы (0,3-2,5%). В составе отдельных белков обнаружены также фосфор, йод, железо, медь и некоторые другие макро- и микроэлементы, в различных, часто очень малых количествах. Содержание основных химических элементов в белках может различаться, за исключением азота, концентрация которого характеризуется наибольшим постоянством и в среднем составляет 16%.
Кроме того, содержание азота в других органических веществах мало. В соответствии с этим было предложено определять количество белка по входящему в его состав азоту. Зная, что 1г азота содержится в 6,25 г белка, найденное количество азота умножают коэффициент 6,25 и получают количество белка.
Для определения химической природы мономеров белка необходимо решить две задачи: разделить белок на мономеры и выяснить их химический состав.
Расщепление белка на его составные части достигается с помощью гидролиза - длительного кипячения белка с сильными минеральными кислотами (кислотный гидролиз) или основаниями (щелочной гидролиз). Наиболее часто применяется кипячение при 110 градусах Цельсия с HCl в течение 24 ч. На следующем этапе разделяют вещества, входящие в состав гидролизата. Для этой цели применяют различные методы, чаще всего - хроматографию.
Главным частью разделенных гидролизатов оказываются аминокислоты. Белки являются одними из четырех основных органических веществ живой материи (белки, нуклеиновые кислоты, углеводы, жиры), но по своему значению и биологическим функциям они занимают в ней особое место. Около 30% всех белков человеческого тела находится в мышцах, около 20% - в костях и сухожилиях и около 10% - в коже.
Но наиболее важными белками всех организмов являются ферменты, которые, холя и присутствуют в их теле и в каждой клетке тела в малом количестве, тем не менее управляют рядом существенно важных для жизни химических реакций.
21. Характеристика форм покоя у бактерий.
Хорошо известно, что при попадании в неблагоприятные условия, многие бактерии способны переходить в покоящееся состояние. Это состояние характеризуется резким снижением метаболической, активности и полным» отсутствием деления. Ранее покоящееся состояние микроорганизмов связывали только со специализированными формами (спорами и цистами), образуемыми ограниченным числом бактерий. Однако сейчас становится ясно, что многие неспорулирующие; бактерии, в том числе и патогенные микроорганизмы, в определенных условиях могут переходить в покоящееся состояние, оставаясь при этом жизнеспособными. Под. покоящимся состоянием' мы понимаем такое, обратимое состояние бактериальной клетки, при котором уровень метаболической активности значительно снижен, а клетка может существовать в таком состоянии без деления длительное время.Такие покоящиеся клетки, как правило, изменяют свою форму, утолщают клеточную стенку и становятся менее чувствительными:к агрессивным внешним воздействиям. И; хотя обычные микробиологические: методы зачастую не могут выявить микроорганизмы, находящиеся в покоящемся состоянии, такие бактерии при наступлении благоприятных условий способны продолжить рост.
До недавнего времени существование покоящегося состояния для микобактерий in vitro или in vivo не было установлено, хотя для ряда других неспорулирующих бактерий переход в покоящееся состояние экспериментально установлен.
Основные признаки анабиотического или покоящегося состояния: 1) отсутствие или предельно заторможенный метаболизм, 2) сохранение структуры в течение продолжительного времени, 3) отсутствие в жидкой фазе заметных количеств свободной воды как непрерывной среды, 4) повышенная устойчивость против экстремальных факторов неделящееся, 5) способность восстанавливать процессы жизнедеятельности.
Очевидно, что переход в покоящееся состояние может происходить под влиянием различных факторов и наряду с универсальными чертами обладать какими-то особенностями и уникальными механизмами регуляции.
Кейлин объединил под названием гипобиоз любое неактивное неделящееся состояние жизнеспособного организма. В свою очередь, гипобиоз включает гипометаболизм и аметаболизи (или латентную жизнь). Гипометаболизм характеризуется крайне низкими, но все же измеряемыми, метаболическими активностями, примером его может служить зимняя спячка животных. Аметаболизм - полное отсутствие какого-либо метаболизма, например, в спорах.
Для бактерий выделяют конститутивное (эндогенное) и экзогенное покоящиеся состояния . Специализированные покоящиеся формы микроорганизмов, такие как споры и цисты, относятся к первому состоянию. Экзогенное состояние покоя наступает под действием неблагоприятных факторов, при этом вегетативные неспорулирующие бактерии могут переходить в неактивное состояние.
22. Характеристика водорастворимых витаминов
Тиамин (витамин В,)
Рибофлавин (витамин В2)
Пантотеновая кислота (витамин В3)
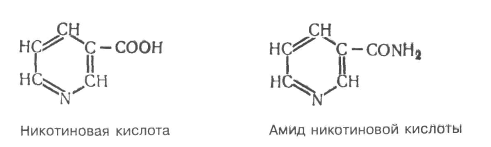
Никотиновая кислота (витамин В5, РР)
Пиридоксин (витамин В6)
Цианкобаламин (витамин В12)
Пангамовая кислота (витамин В15)
Аскорбиновая кислота (витамин С)
Цитрин (витамин Р)
Биотин (витамин Н)
Парааминобензойная кислота Фолиевая кислота
Инозит S-Метилметионин (витамин U)
Характерным для этой группы витаминов является хорошая растворимость в воде и нерастворимость в жирах и органических растворителях.
Как правило, витамины, растворимые в воде, содержатся в продуктах растительного происхождения; большинство из них в своем составе содержит азот. В отличие от жирорастворимых витаминов они не накапливаются в животном организме и проявляют свое биологическое действие, входя в состав ферментов.
Витамин В, (тиамин) является первым витамином, химический состав которого был подробно изучен. Название "тиамин" он получил благодаря наличию в его молекуле серы и азота:
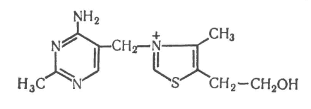
Отсутствие в пище витамина В, вызывает тяжелое заболевание полиневрит, или бери-бери, распространенное в странах, где основным продуктом питания населения служит полированный рис.
По химической природе витамин В2 представляет собой производное азотистого основания — изоаллоксазина, связанное с остатком спирта — рибитола:
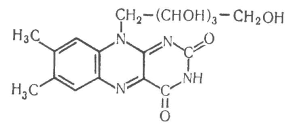
При отсутствии витамина В2 у животных наблюдается задержка роста, у человека — выпадение волос. Характерным признаком авитаминоза В2 является заболевание глаз, сопровождающееся вас-куляризаиией роговицы (прорастание кровеносными сосудами). Затем происходит воспаление роговицы и помутнение хрусталика.
Витамин В3 (пантотеновая кислота). При изучении условий, необходимых для роста дрожжей, в рисовых отрубях было открыто вещество, которое оказалось фактором роста. Оно было названо пантотеновой кислотой (от греч. pamothen — везде присутствующий). Такое название витамин В3 получил за свое широкое распространение в природе.
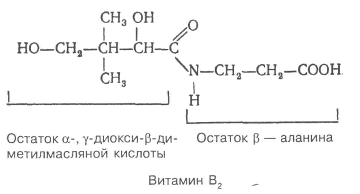
Отсутствие пантотеновой кислоты в пище вызывает ряд расстройств в организме человека: нарушается деятельность сердца, нервной системы, почек, пищевого канала, развиваются дерматиты, обесцвечиваются волосы, снижается аппетит и т. д.
Витамин В5, РР (никотиновая кислота).
Биологическое значение