Термодинамика
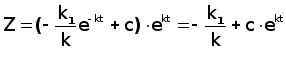
Ранее вводили функцию Z = n-1 , следовательно
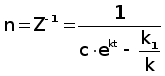 (3.15)
Начальное условие n0=1/(c-k1/k) , из этого условия мы можем определить константу с следующим образом
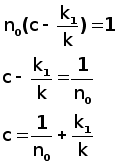
Подставляя , найденную нами константу в уравнение (3.15) , получим
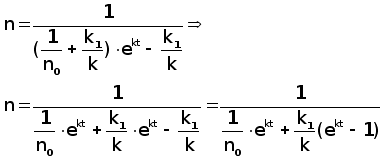 (3.16)
Исследуем функцию (3.16) при k = 0 , k < 0 , k > 0 .
При k®0
;
ekt
®
0 ; (ekt
- 1)®0
, то есть
(ekt
- 1)Чk1/k®0ЧҐ
(неопределенность)
, раскроем эту
неопределенность
по правилу
Лопиталя . Эту
неопределенность
вида 0ЧҐ
следует привести
к виду
 . При этом , как
и всегда при
применении
правила Лопиталя
, по ходу вычислений
рекомендуется
упрощать получившиеся
выражения ,
следующим
образом :
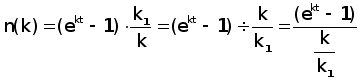
n(k)при
k®0
®
0 , следовательно
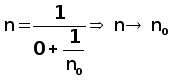
Перепишем (3.16) в следующем виде
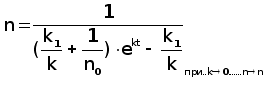
Линеаризуем нелинейное уравнение , получим
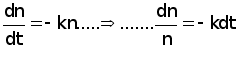
 ln
n = - kt + c Ю
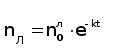
Построим график для этих условий
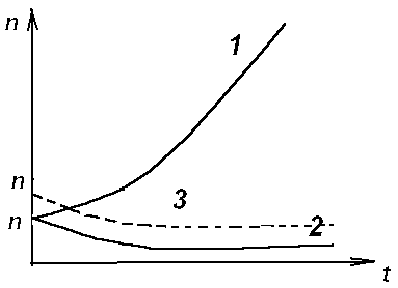
Рис. 3.3 К самоорганизации в одномодовом лазере :
кривая 1 : k < 0 , режим лазерной генерации
кривая 2 : k = 0 , точка бифуркации , порог
кривая 3 : k > 0 , режим лампы.
При k = 0 уравнение (3.8) примет вид

решая его , получим
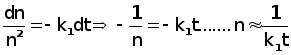
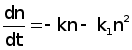 (3.8)
При условии
 ; n(t) = const , функция
(3.8) приближается
к стационарному
состоянию , не
зависимо от
начального
значения n0
, но в
зависимости
от знаков k
и k1
(смотри
рисунок 3.3).
Таким образом , функция (3.8) принимает стационарное решение
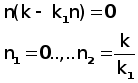
3.3. ДИНАМИКА ПОПУЛЯЦИИ .
О распространении и численности видов была собрана обширная информация . Макроскопической характеристикой , описывающей популяцию , может быть число особей в популяции . Это число играет роль параметра порядка . Если различные виды поддерживаются общим пищевым ресурсом , то начинается межвидовая борьба , и тогда применим принцип Дарвина : выживает наиболее приспособленный вид . ( Нельзя не отметить сильнейшую аналогию , существующую между конкуренцией лазерных мод и межвидовой борьбой ). Если имеются однотипные пищевые ресурсы , то становится возможным сосуществование видов . Численность видов может быть подвержена временным колебаниям.
ОДИН ВИД.
Рассмотрим сначала одну популяцию с числом особей в ней n . При наличии пищевых ресурсов А особи размножаются со скоростью :
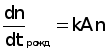
и гибнут со скоростью :
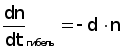
Здесь k и d - некоторые коэффициенты рождаемости и смертности , в общем случае зависящее от параметров внешней среды обитания . Если бы количество пищи было неограниченно , то эволюционное уравнение выглядело бы так :
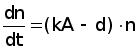
Введем обозначение a = kA - d
Оно было бы линейным и описывало бы неограниченный экспериментальный рост (при kA > d), либо экспериментальную гибель (при kA < d) популяции.
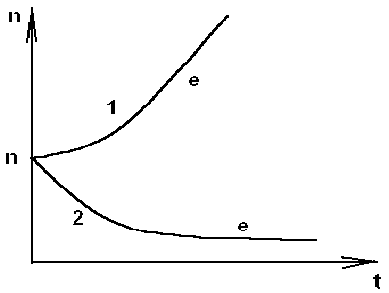
Рис. 3.4 Кривая 1: Экспоненциальный рост ; a>0 , kA>d
Кривая 2: Экспоненциальная гибель ; a>0 , kA>d.
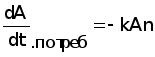
Вместе с тем в общем случае возможно восстановление пищевых ресурсов со скоростью :
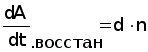
Здесь , конечно , рассмотрен придельный случай сохранения полного количества органического вещества
A + n = N = const ,
N - способность среды обитания поддерживать популяцию.
Тогда с учетом A = N - n получится следующее уравнение эволюции популяции одного вида (логистическое уравнение Ферхюльста ) :
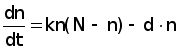 (3.17)
Решим уравнение (3.17) аналитически , перепишем его следующим образом
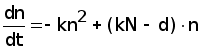 , обозначим
kN
- d = k1
Получим :
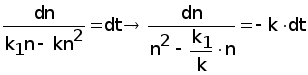
Воспользуемся
табличным
интегралом
,
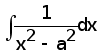 ,полученное
уравнение
примет вид :
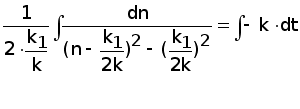
решим это уравнение , преобразуя
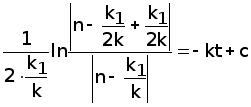
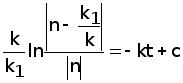
сократим полученное выражение на k , и перенесем переменную k1 в правую часть , получим
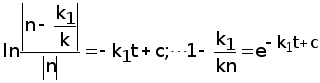
отсюда n(t)
®
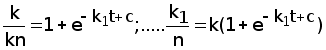
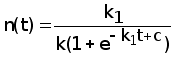
Начальные условия :
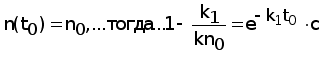
откуда
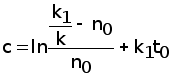
Подставляя с в решение , получим уравнение в следующем виде
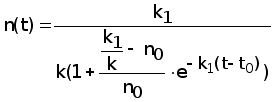
ранее мы
обозначали
, что
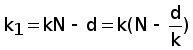 , подставляем
и преобразуем
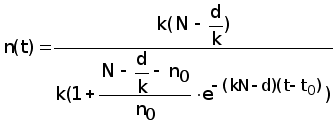
сократим на k - коэффициент рождаемости , окончательно получим решение уравнения (3.17)
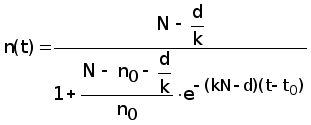
Итак , получено аналитическое решение логистического уравнения - это решение указывает на то , что рост популяции останавливается на некотором конечном стационарном уровне:

то есть параметр n1 указывает высоту плато насыщения , к которому стремится n(t) с течением времени .
Параметр
n0
указывает
начальное
значение численности
одного вида
популяции :
n0
= n(t0)
. Действительно
,
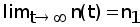 ,то есть n1
- предельная
численность
вида в данной
среде обитания
. Иначе говоря
, параметр n1
характеризует
емкость среды
по отношению
к данной популяции
. И наконец ,
параметр (kN
- d)
задает
крутизну начального
роста .
Отметим , что при малой исходной численности n0 (начальное число особи) начальный рост популяций будет почти экспоненциальным
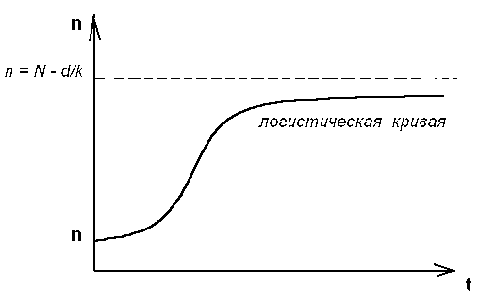
Рис. 3.5. Логистическая кривая.
(эволюция популяции одного вида)
Решение уравнения (3.17) можно представить с помощью логистической кривой (рис. 3.5) . Эволюция полностью детерминирована . Популяция перестает расти , когда ресурс среды оказывается исчерпанным .
Самоорганизация - при ограниченном пищевом ресурсе. Система самоорганизованна и взрывоподобный рост популяции (рис. 3.4 Кривая 1) сменяется кривой с насыщением .
Подчеркнем , что при описании данной биологической системы используют понятийный и физико-математический аппарат из нелинейной неравновесной термодинамики.
Может случится , однако, что всегда за событиями , не управляемыми в рамках модели , в той же среде появится , первоначально в малых количествах , новые виды (характеризуемые другими экологическими параметрами k,N и d) . В связи с такой экологической флуктуацией возникает вопрос о структурной устойчивости : новые виды могут либо исчезнуть , либо вытеснить первоначальных обитателей . Пользуясь линейным анализом устойчивости , не трудно показать , что новые виды вытесняют старые только в том случае , если
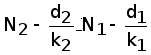
Последовательность , в которой виды заполняют экологическую нишу , представлена на рисунке 3.6.
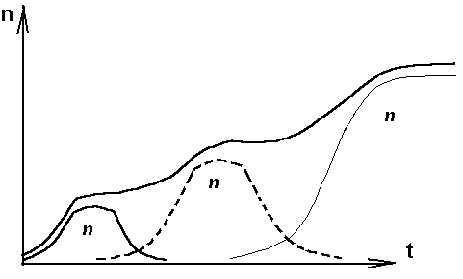
Рис. 3.6. Последовательное заполнение экологической
ниши различными видами .
Эта модель позволяет придать точным количественный смысл утверждению о том , что «выживает наиболее приспособленный» , в рамках задачи о заполнении заданной экологической ниши .
- СИСТЕМА «ЖЕРТВА - ХИЩНИК».
Рассмотрим систему, состоящую из двух видов - это «жертва» и «хищник» (например , зайцы и лисицы) , то эволюция системы и ее самоорганизация выглядят иначе , чем в предыдущем случае.
Пусть в биологической системе имеются две популяции - «жертв» - кролики (К) , и «хищников» - лисиц (Л), численностью К и Л .
Проведем теперь рассуждение , которое позволит нам объяснить существование диссипативных структур .
Кролики (К) поедают траву (Т) . Предположим , что запас травы постоянен и неисчерпаем . Тогда , одновременное наличие травы и кроликов способствуют неограниченному росту кроличьей популяции . Этот процесс можно символически изобразить так :
Кролики + Трава ® Больше кроликов
К + Т ® 2К
Тот факт , что в стране кроликов всегда имеется в достатке травы , вполне аналогичен непрерывному подводу тепловой энергии в задаче с ячейками Бенара . Вскоре процесс , в целом , будет выглядеть как диссипативный (во многом аналогично процессу Бенара ).
Реакция « Кролики - Трава » происходит спонтанно в направлении увеличения популяции кроликов, что является прямым следствием второго начала термодинамики .
Но вот в нашу картину , где мирно резвятся кролики , прокрались хищные лисицы (Л), для которых кролики являются добычей . Подобно тому , как по мере поедания травы кроликов становится больше , за счет поедания кроликов возрастает число лисиц :
Лисицы + Кролики ® Больше лисиц
Л + К ® 2Л
В свою очередь лисицы , как и кролики являются жертвами - на этот раз человека , точнее говоря происходит процесс
Лисицы ® Меха
Конечный продукт - Меха , не играет непосредственной роли в дальнейшем ходе процесса . Этот конечный продукт можно , однако , рассматривать как носитель энергии, выводимой из системы , к которой она была в начале подведена (например, в виде травы ).
Таким образом , в экологической системе также существует поток энергии - аналогично тому , как это имеет место в химической пробирке или биологической клетке .
Совершенно ясно , что в действительности происходят периодические колебания численности популяции кроликов и лисиц , причем за нарастании численности кроликов следует нарастание численности лисиц , которые сменяются уменьшением численности кроликов , сопровождающимся столь же резким снижением численности лисиц , затем повышенным подъемом численности кроликов и так далее (рис. 3.7).
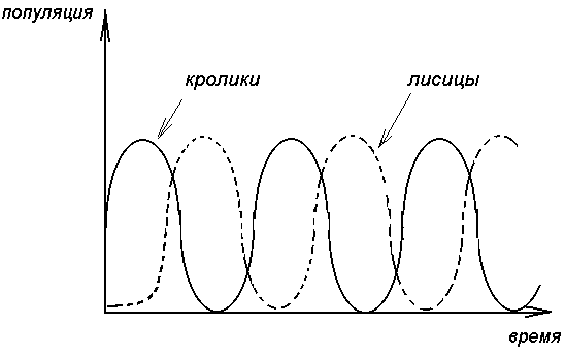
Рис. 3.7. Изменение численности популяций кроликов и лисиц
со временем. Наличие периодичности означает
возникновение экологической структуры.
С течением времени численность обеих популяций меняется в соответствии с последовательным прохождением точек графика . Через некоторое время (конкретное значение зависит от быстроты поедания лисицами кроликов , а так же от скорости размножения обоих видов) весь цикл начинается вновь.
Поведение популяций при различных степенях плодовитости , а так же различных способностях избегать истребления можно изучить количественно с помощью программы : ПОПУЛЯЦИЯ (в приложении).
Эта программа реализует решение уравнений для диссипативной структуры «кролики - лисицы». Результат решения изображается графически . Решается система дифференциальных уравнений
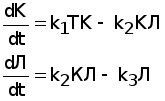
Здесь буквы К, Л, Т - означают соответственно количество кроликов , лисиц , травы ; коэффициенты k1, k2, k3 - обозначают соответственно скорость рождения кроликов , скорость поедания кроликов лисицами и скорость гибели лисиц.
В программе понадобится уточнить значение отношений (примерно равное 1), постоянное количество травы (так жепринимаемое обычно равным 1), начальные значения популяции кроликов и лисиц (обычно 0,4), продолжительность цикла (типичное значение 700) и шаг по оси времени (обычно равный 1).
Программа популяции - это график. Он показывает поведение популяций при различных степенях плодовитости , а так же различных способностях избегать истребление.
Совершенно ясно , что в действительности происходят периодические колебания численности популяции кроликов и лисиц , причем за нарастании численности кроликов следует нарастание численности лисиц , которые сменяются уменьшением численности кроликов , сопровождающимся столь же резким снижением численности лисиц , затем повышенным подъемом численности кроликов и так далее, то есть видно , что система самоорганизуется.
Программа прилагается.
ЗАКЛЮЧЕНИЕ.
Мы видели , что необратимость времени тесно связана с неустойчивостями в открытых системах . И.Р. Пригожин определяет два времени . Одно - динамическое , позволяющее задать описание движения точки в классической механике или изменение волновой функции в квантовой механике . Другое время - новое внутренние время , которое существует только для неустойчивых динамических систем . Оно характеризует состояние системы , связанное с энтропией .
Процессы биологического или общественного развития не имеют конечного состояния . Эти процессы неограниченны . Здесь , с одной стороны , как мы видели , нет какого-либо противоречия со вторым началом термодинамики , а с другой стороны - четко виден поступательный характер развития (прогресса) в открытой системе. Развитие связано , вообще говоря , с углублением неравновесности , а значит , в принципе с усовершенствованием структуры . Однако с усложнением структуры возрастает число и глубина неустойчивостей , вероятность бифуркации .
Успехи решения многих задач позволили выделить в них общие закономерности , ввести новые понятия и на этой основе сформулировать новую систему взглядов - синергетику . Она изучает вопросы самоорганизации и поэтому должна давать картину развития и принципы самоорганизации сложных систем , чтобы применять их в управлении . Эта задача имеет огромное значение , и , по нашему мнению , успехи в ее исследовании будут означать продвижение в решении глобальных задач : проблемы управляемого термоядерного синтеза , экологических проблем , задач управления и других .
Мы понимаем , что все приведенные в работе примеры относятся к модельным задачам , и многим профессионалам , работающим в соответствующих областях науки , они могут показаться слишком простыми . В одном они правы : использование идей и представлений синергетики не должно подменять глубокого анализа конкретной ситуации . Выяснить , каким может быть путь от модельных задач и общих принципов к реальной проблеме - дело специалистов. Кратко можно сказать так : если в изучаемой системе можно выделить один самый важный процесс (или небольшое их число) , то проанализировать его поможет синергетика . Она указывает направление , в котором нужно двигаться . И , по-видимому , это уже много.
Исследование большинства реальных нелинейных задач было невозможно без вычислительного эксперимента , без построения приближенных и качественных моделей изучаемых процессов (синергетика играет важную роль в их создании). Оба подхода дополняют друг друга . Эффективность применения одного зачастую определяется успешным использованием другого . Поэтому будущее синергетики тесно связано с развитием и широким использованием вычислительного эксперимента .
Изученные в последние годы простейшие нелинейные среды обладают сложными и интересными свойствами . Структуры в таких средах могут развиваться независимо и быть локализованы, могут размножаться и взаимодействовать . Эти модели могут оказаться полезными при изучении широкого круга явлений .
Известно , что имеется некоторая разобщенность естественно научной и гуманитарной культур . Сближение , а в дальнейшем , возможно , гармоническое взаимообогащение этих культур может быть осуществлено на фундаменте нового диалога с природой на языке термодинамики открытых систем и синергетики .
ЛИТЕРАТУРА :
Базаров И.П. Термодинамика. - М.: Высшая школа, 1991 г.
Гленсдорф П. , Пригожин И. Термодинамическая теория структуры , устойчивости и флуктуаций. - М.: Мир, 1973 г.
Карери Д. Порядок и беспорядок в структуре материи. - М.: Мир, 1995 г.
Курдюшов С.П. , Малинецкий Г.Г. Синергетика - теория самоорганизации. Идеи , методы перспективы. - М.: Знание, 1983 г.
Николис Г. , Пригожин И. Самоорганизация в неравновесных системах. - М.: Мир, 1979 г.
Николис Г. , Пригожин И. Познание сложного. - М.: Мир, 1990 г.
Перовский И.Г. Лекции по теории дифференциальных уравнений. - М.: МГУ, 1980 г.
Попов Д.Е. Междисциплинарные связи и синергетика. - КГПУ, 1996 г.
Пригожин И. Введение в термодинамику необратимых процессов. - М.: Иностранная литература , 1960 г.
Пригожин И. От существующего к возникающему. - М.: Наука, 1985 г.
Синергетика , сборник статей. - М.: Мир, 1984 г.
Хакен Г. Синергетика . - М.: Мир , 1980 г.
Хакен Г. Синергетика . Иерархия неустойчивостей в самоорганизующихся системах и устройствах . - М.: Мир , 1985 г.
Шелепин Л.А. В дали от равновесия. - М.: Знание, 1987 г.
Эйген М. , Шустер П. Гиперцикл . Принципы самоорганизации макромолекул . - М.: Мир , 1982 г.
Эткинс П. Порядок и беспорядок в природе. - М.: Мир , 1987 г