Витамины В12 и В15
Устойчивость
В литературе накопилось много данных об устойчивости витамина B12 к действию как реактивов, так и лекарственных препаратов; многие из этих данных можно теперь истолковать, исходя из строения и реактивности различных частей молекулы витамина. Кристаллический цианкобаламин в твердом состоянии устойчив даже при действии температуры 100° в течение нескольких часов. По Березовскому, при нагревании кристаллического цианкобаламина при 100° происходит медленное разложение. В водных растворах он наиболее устойчив при рН от 4 до 6 (по Березовскому до 7); в этих пределах рН растворы можно стерилизовать автоклавированием при 120° с потерей лишь нескольких процентов активности. При pH 9 происходит быстрое разложение (примерно 90% в сутки).
Аквокобаламин менее устойчив, особенно в щелочном растворе, но оба вещества инактивируются примерно на 90% в течение 1 часа при 100° при рН 8. Нагревание в сильно щелочном растворе использовали для количественного разрушения витамина B12 с целью контроля при некоторых методах микробиологического определения активности. Однако в неочищенных препаратах некоторые восстанавливающие вещества могут оказывать защитное действие. Нейтральные или слегка кислые растворы витамина B12 при комнатной температуре в темноте сохраняются годами, только в очень сильно разведенных растворах идет медленный гидролиз с образованием небольших количеств фактора В. В сильно кислых и, особенно в щелочных растворах при комнатной температуре происходит медленный гидролиз до карбоновых кислот. На свету цианид медленно отщепляется и образуется оксикобаламин, но при выдерживании раствора в темноте происходит обратный процесс. Длительное воздействие солнечного света ведет к необратимому разрушению. Характер действия восстановителей не всегда можно предсказать с уверенностью. Утверждают, что тиоловые соединения в низких концентрациях защищают витамин от разрушения, и их даже используют иногда с этой целью при микробиологических определениях, однако в больших количествах они сами могут вызвать разрушение витамина. Сульфит также рекомендовали применять для защиты Кобаламинов, особенно оксикобаламина. Аскорбиновая кислота действует не так, как другие, восстановители. Она довольно быстро разрушает витамин B12b, но почти не действует на витамин B12. Данное наблюдение использовали при анализе смесей этих двух веществ, но такой метод пригоден лишь для сравнительно чистых растворов. В печеночных экстрактах содержится защитный фактор, которым оказалось железо; другие металлы, например медь, катализируют реакцию. В сухих лекарственных препаратах витамин B12 устойчив при растирании в порошок с хлористым натрием или с маннитом. Растворы можно стабилизировать фенолом, подвергнутым двойной перегонке, хотя примеси, содержащиеся иногда в феноле, могут вызывать разрушение витамина. Совместное присутствие тиамина (витамина B1) и никотинамида (или никотиновой кислоты) ведет к медленному разрушению витамина B12 в растворе. Железо защищает витамин В12 от взаимодействия с никотиновой кислотой.
Механизм действия
Недостаток в пище витамина B12 приводит к макроцитарной мегалобластической анемии. Нарушается работа нервной системы, наблюдается резкое снижение кислотности желудочного сока. Впрочем, авитаминоз В12 может развиться даже при полноценном питании, т. к. для процесса всасывания витамина в тонкой кишке обязательно наличие в желудочном соке особого белка – гастромукопротеина (фактор Касла). В полном соответствии с буквальным переводом своего латинского названия, этот белок выделяется стенками желудка, теми же клетками, которые выделяют кислоту. Фактор Касла специфически связывает витамин В12. Точная роль этого фактора не выяснена. Полагают, что в составе комплекса с гастромукопротеином витамин всасывается в тонком кишечнике и поступает в кровь портальной системы в комплексе с транскобаламинами I и II, при этом фактор Касла гидролизуется.
Когда биохимики привыкли к мысли, что витамин В12 не просто специфический антипернициозный фактор, а один из витаминов группы В, они стали предполагать, что он подобно другим водорастворимым витаминам окажется кофактором по крайней мере в одной ферментной системе. Но вопреки ожиданию функции, приписываемые витамину B12 различными исследователями, оказались столь многочисленными и разнообразными, что трудно было представить себе, как все они могли быть связаны с такой ролью кофактора. Поэтому стали искать его основную функцию. Например, казалось вероятным, что он каким-то образом ответствен за поддержание сульфгидрильных соединений в восстановленном реактивном состоянии; он мог бы, скажем, "активировать" различные SH-ферменты, препятствуя их окислению в неактивные S-S-формы. Или если он связан с синтезом белка, он был бы необходим для синтеза белковой части (апофермента) ряда ферментов.
Позднейшие исследования, особенно с применением изотопов, поставили под сомнение некоторые из приписываемых витамину В12 функций и выдвинули на первый план другие. Однако ряд новейших результатов еще не подтвержден.
Отношение к сульфгидрильным ферментам
Влияние концентрата витамина B12 на восстановление некоторых S-S-соединений в SH-форму изучал в o1950 г. Дубнов на ферментных системах in vitro. Он высказал предположение, что восстановлением гомоцистина в гомоцистеин, легко присоединяющий метильную группу, можно, было бы объяснить действие витамина B12 на синтез метионина. Поддержание глутатиона в восстановленномм состоянии могло бы играть роль в активации SH-ферментов. Эти гипотезы были подкреплены последующими наблюдениями. При рецидивах пернициозной анемии, а также у крыс, получающих рацион с недостатком витамина В12 концентрация сульфгидрильных соединений (главным образ6м глутатиона) в крови ниже нормальной, и в обоих случаях она поднимается до нормы или после введения витамина. Быстрота этой реакции позволяет думать, что это непосредственный результат действия витамина. Однако Жаффе вовсе не обнаружил подобного действия у мышей.
Согласно Лингу и Чоу и другим авторам, при авитаминозе В12 нарушено использование углеводов. Это могло бы быть связано с низкой концентрацией глутатиона двояким образом. Сульфгидрильные группы некоторых гликолитических ферментов могли бы окисляться до неактивной S-S-формы: в частности, глутатион является простетической группой одного ключевого фермента – глицеральдегид-3-фосфатдегидрогеназы. Позднее Дубнов подверг дальнейшей проверке свою гипотезу реактивации SH-ферментов, использовав покоящиеся клетки мутанта Е. coli, нуждающегося в витамине B12. Он нашел, что активность ряда таких ферментов вначале была так же высока, как и в клетках "дикого" штамма, но снижалась по мере старения культур и могла быть вновь повышена добавлением витамина B12 или глутатиона, причем гораздо эффективнее было добавление их обоих.
Обмен жиров и каротина
Благотворное действие витамина В12 на обмен жиров у животных аналогичным образом приписывали поддержанию кофермента А в активном восстановленном состоянии. У крысят, получающих рацион с недостатком витамина B12, организм не способен синтезировать жиры, а у взрослых крыс нарушается использование жиров пищи так что животные становятся тучными в результате избыточного накопления жира. Полагают, что этот эффект лишь частично объясняется, действием витамина B12 на синтез метионина, в результате которого, в свою очередь, увеличивается количество липотропных веществ – холина и бетаина. Установлено, что витамин B12 повышает всасывание каротина или превращение его в витамин А у крыс (на что указывает повышенное накопление последнего в печени); хотя и не влияет на накопление готового витамина А. Механизм этого действия еще неясен.
Участие витамина B12 в биохимических
восстановительных процессах
Утверждали, что витамин В12 помимо действия на сульфгидрильные соединения поддерживает в восстановленном состоянии другие важные вещества. Так, Уилл и сотр. установили, что в плазме больных пернициозной анемией содержание аскорбиновой кислоты понижено; кроме того, при инъекции таким больным аскорбиновой кислоты она быстро окисляется в дегидроаскорбиновую. После лечения витамином B12 эти явления исчезают, а инъекции аскорбиновой кислоты ведут к повышению ее концентрации в плазме. Чоу и сотр. нашли, что в печени крыс с недостаточностью витамина В12 общее содержание дифосфопиридиннуклеотида повышено, но количество его восстановленной формы (ДПН-Н) понижено. Ненормально высокое отношение ДПН/ДПН-Н снижалось вдвое после введения витамина B12.
Было высказано предположение, что витамин B12 способен играть роль восстановителя, когда его трехвалентный кобальт восстановлен до двухвалентного состояния. Однако нужны сильные восстановители, чтобы вызвать эту реакцию, которая в присутствии атмосферного кислорода идет в обратном направлении. Предположение о том, что соединение с белком могло бы сдвинуть окислительно-восстановительный потенциал в область физиологических величин, не вполне убедительно, так как способность связывать белок после восстановления, возможно, утрачивается.
Биосинтез метионина и серина
Метилкобаламин участвует в реакциях синтеза метионина в качестве кофактора. Заключительным этапом синтеза метионина у бактерий, грибов, высших растений и животных состоит в переносе метильной группы от СН3-ТГФК к сульфгидрильной группе гомоцистеина.
Существует
два типа ферментов,
осуществляющих
синтез метионина
– первый, независимый
от кобаламинов,
может использовать
в качестве
донора метильной
группы только
триглутаматную
форму СН3-ТГФК.
Второй тип
ферментов,
зависимый от
кобаламиновых
кофакторов,
может использовать
как моно-, так
и триглутаматную
форму СН3-ТГФК.
Для активации
ферментов
второго типа,
кроме того,
требуется
S-аденозилметионин
(S-AdoMet).
Последний
необходим для
первоначального
метилирования
кобаламина.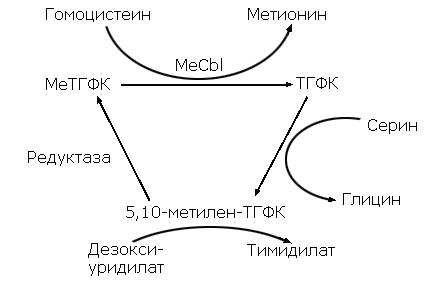
Схема 1. Биосинтез метионина.
Мутант Е. coli, используемый для определения витамина В12, способен так же хорошо расти и при добавлении к минимальной питательной среде метионина, только для оптимального роста требуется примерно в 10000 раз больше метионина, чем витамина. Очевидный вывод, что в клетках этого организма витамин действует как катализатор синтеза метионина, был подтвержден экспериментально. Однако для любого другого микроорганизма, нуждающегося в витамине B12, этот витамин не может быть заменен метионином, так что он, очевидно, осуществляет у этих организмов какую-то дополнительную функцию.
|
Скармливаемый предшественник |
Радиоактивность метильного углерода метионина, μ с/г-атом |
Повышение биосинтеза метионина, % |
|
|
В присутствии вит. В12 |
В отсутствие вит. В12 |
||
|
При неограниченном потреблении пищи |
|||
|
α-14С-Глицин (2%) β-14С-Серин (0,7%) 14С-Формиат натрия (0,1%) |
156 81,5 33,8 |
95,5 47,4 20,0 |
63 72 69 |
|
При ограниченном потреблении пищи |
|||
| 14С-Формиат натрия (0,1%) | 32,0 |
28,6 |
12 |
Таблица 1. Влияние витамина В12 на биосинтез метионина.
Р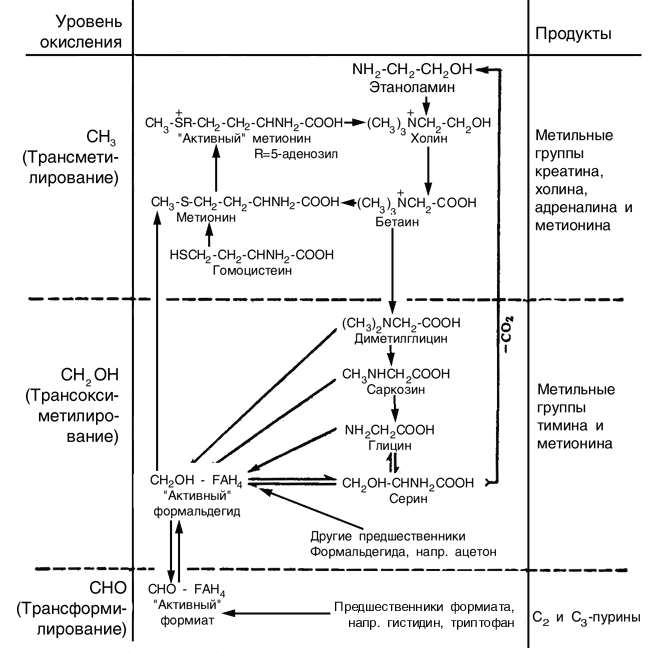
Схема 2. Этапы переноса радикала с одним углеродным атомом.
анние эксперименты с изучением роста цыплят и крыс также показали, что витамин B12 снижает потребность в метионине, особенно при введении гомоцистеина. Сначала это было истолковано как действие витамина на трансметилирование, т. е. на передачу лабильной метильной группы от холина или бетаина к гомоцистеину с образованием метионина. Точно так же витамин B12 может, по крайней мере частично, заменять холин для цыплят, крыс и поросят-сосунков. Ряд исследований (некоторые из них с использованием 14С) показал, что витамин B12 не оказывает никакого влияния на трансметилирование, но участвует в прямом синтезе лабильной метильной группы из более окисленных предшественников – таких, как формиат, α-углерод глицина или β-углерод серина. Трудности истолкования результатов, получаемых на интактных животных, хорошо иллюстрирует таблица 1.П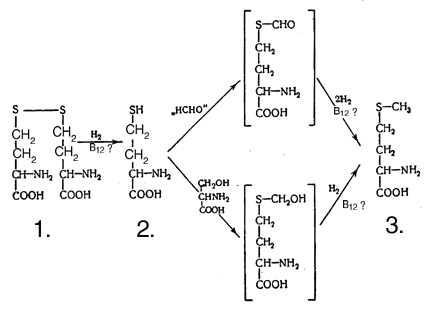 ри
авитаминозе
В12 сильно
ухудшается
аппетит и наблюдаемые
результаты
часто могут
быть обусловлены
просто пониженным
потреблением
пищи по сравнению
с контрольными
животными. Эту
неясность можно
устранить,
ограничив
потребление
пищи контрольными
животными до
уровня, х
Схема 3. Этапы превращения гомоцистина в метионин.
1 – Гомоцистин; 2 – Гомоцистеин; 3 - Метионин
арактерного для авитаминозных животных (метод "парного кормления"). Подтверждение данных для поросят и цыплят в опытах с 14С-формиатом и 14С-серином получили Джонсон и сотр. Однако при использовании меченого формальдегида результат оказался неожиданным: интенсивность включения метки в метильные группы метионина и холина у цыплят с недостаточностью витамина B12 оказалась значительно повышенной. Есть основательные данные в пользу того, что новообразованные метильные группы появляются в метионине, но потом в результате трансметилирования они могут оказаться в холине или креатине. Эти выводы никто не оспаривал, но некоторые исследования позволяли предположить, что, кроме того, при недостаточности витамина B12 у крыс активность трансметилазы в печени понижена.Значение витамина B12 в переносе групп с одним атомом углерода почти неразделимо переплетается с функциями фолиевой кислоты (точнее, производных тетрагидрофолевой кислоты). Эти процессы переноса, которые могут происходить на трех различных уровнях окисления, схематически представлены на схеме 2, показаны также связанные с ними реакции окисления и восстановления. Некоторые из этих процессов переноса происходят в несколько этапов (не показанных на схеме 2) это, безусловно, относится к превращению гомоцистина в метионин, и почти нет сомнений, что для реакции в целом необходимы оба витамина. Возможная последовательность этапов показана на схеме 3.
Как уже говорилось, витамину B12 приписывали участие в восстановлении гомоцистина до гомоцистеина – акцептора метильной группы. Однако последующие опыты с мечеными аминокислотами показали, что витамин, возможно, не нужен для этого восстановления. Какое-то производное фолиевой кислоты, несомненно, участвует в самом переносе радикала с одним углеродным атомом. Тогда единственная функция, остающаяся для витамина B12, состоит в восстановлении этой группы в метильную группу метионина – если только витамин не действует лишь косвенным образом, способствуя, например, синтезу ферментов. Во всяком случае, синтез метионина не может быть единственной биохимической функцией витамина В12 у высших животных, так они гибнут от его недостаточности даже при большом количестве метионина и холина в пище.
Сопоставление данных, приводимых в пользу и против участия витамина B12 во взаимопревращениях глицина и серина, приводило скорее к выводу об отсутствии влияния витамина, но работа Вора и сотр. вскрыла новую сторону проблемы. Эти авторы не обнаружили снижения общего синтеза серина из α-14С-гли-цина в срезах печени индейки, но наблюдали значительное уменьшение включения 14С в положении 3. Они объясняют это тем, что витамин B12 действует на этапе отщепления от глицина радикала с одним углеродным атомом, перенос которого осуществляет тетрагидрофолевая кислота. Если это подтвердится, то, по-видимому, такой же механизм мог бы действовать в синтезе метильной группы метионина de novo.
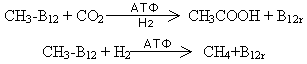
Также по механизму трансметилирования у некоторых бактерий происходит синтез уксусной кислоты и метана:
Синтез нуклеиновых кислот
С самого начала работ в данной области считали почти несомненным, что витамин B12 стимулирует синтез дезоксирибонуклеиновой и, вероятно, рибонуклеиновой кислот. Молочнокислые бактерии, используемые для определения витамина B12, почти так же хорошо растут при замене его большими количествами тимидина или других дезоксирибонуклеозидов; проще всего это можно объяснить тем, что витамин B12 участвует в каком-то этапе синтеза ДНК. Выяснилось, что действие витамина связано с синтезом дезоксирибозного компонента ДНК. Некоторые ученые полагают, что у некоторых бактерий витамин B12 стимулирует синтез не только ДНК, но и РНК.
Однако другие микроорганизмы, нуждающиеся в витамине B12, не способны расти на дезоксирибозидах, и нет данных о том, что у этих видов витамин контролирует синтез ДНК. У мутанта Е. coli равномерно меченный уридин превращался в тимин не только в присутствии витамина B12, но и в присутствии метионина; кроме того, у него не наблюдалось превращения меченой рибозы в дезоксирибозид. Тем не менее была тенденция переносить выводы из опытов с молочнокислыми бактериями также и на высших животных, включая человека. Этому способствовал факт энергичной регенерации эритроцитов и роста эпителия языка после лечения рецидивов пернициозной анемии цианкобаламином. Здесь действительно должен происходить быстрый синтез нуклеиновых кислот, но возможно, что этот процесс подавляется при недостаточности витамина, так как для пролиферации клеток необходимы и другие компоненты. Кроме того, активность костного мозга при пернициозной анемии отнюдь не подавлена; в самом деле, кругооборот компонентов гема примерно втрое превышает нормальный уровень, но большая часть этой активности бесполезна для образования новых эритроцитов. Ряд исследователей отмечает пониженное содержание ДНК, РНК или обеих нуклеиновых кислот в организме животных при авитаминозе В12; истолкование таких результатов усложняется тем, что авитаминозные животные потребляют меньше пищи. О`Делл и Бруммер использовали радиоактивный фосфат и нашли, что лишение как витамина B12, так и пищи вообще действительно оказывает сходное влияние на синтез нуклеиновых кислот. Глейзер и сотр. установили, что в мегалобластическом костном мозге человека отношение урацил/тимин и соответственно отношение РНК/ДНК значительно выше нормального. После лечения витамином B12 или фолиевой кислотой обе величины быстро уменьшались до нормы. Предложенное объяснение состояло в том, что витамин B12 катализирует синтез компонента ДНК – тимина; метилирование урацила с образованием тимина формально аналогично метилированию гомоцистеина с образованием метионина – реакции, которую, как известно, стимулирует витамин B12. Однако в этом исследовании, к сожалению, определяли относительные, а не абсолютные количества, между тем более ранняя работа Дэвидсона и указывает на возможность иного объяснения результатов. Эти авторы нашли, что в мегалобластическом костном мозге содержание ДНК и особенно РНК ненормально повышено в расчете как на 1 г, так и на 1 клетку; после лечения количество обеих кислот уменьшалось (правда, количество РНК - быстрее), что и должно было вести к изменению отношений, найденному Глейзером и его сотрудниками.
|
Введенный предшественник |
Радиоактивность выделенных нуклеиновых кислот, имп/мин/мг |
|||
|
Полноценный рацион |
Рацион, лишенный вит. В12 |
|||
| РНК | ДНК | РНК | ДНК | |
|
У свиней |
||||
|
14С-Формиат 14С-Серин 14С-Глюкоза |
360 266 255 |
316 232 260 |
318 266 230 |
356 226 235 |
|
У кур |
||||
|
14С-Формиат 14С-Формальдегид 14С-Глицин 14С-Серин 14С-Н3-Метионин |
680 590 460 308 440 |
605 482 328 325 360 |
625 470 388 330 409 |
582 505 305 330 320 |
Таблица 2. Влияние витамина В12 на синтез нуклеиновых кислот.
Позже в опытах с изотопами стали искать более прямых данных. Исследовали, например, влияние витамина B12 на включение радиоактивного фосфора в нуклеиновые кислоты. Витамин B12 стимулировал включение его во фракцию ДНК кишечника и селезенки, но не печени и в то же время не влиял на радиоактивность РНК. Джонсон и сотр. использовали еще более прямой подход к проблеме: они изучали включение 14С из различных предшественников (формиата, формальдегида, глицина, серина и глюкозы) в нуклеиновые кислоты печени свиней, кур и крыс; у крыс они определяли также превращение некоторых из этих предшественников в аллантоин. Ни в одном случае нельзя было обнаружить сколько-нибудь значительного влияния витамина B12 на радиоактивность ДНК, РНК или аллантоина. Если эти данные будут подтверждены, то трудно будет признавать связь между витамином В12 и синтезом нуклеиновых кислот у высших животных. Мистри и Джонсон в опытах на курах действительно установили, что витамин B12 повышает синтез мочевой кислоты из формиата, метильной группы метионина или β-углеродного атома серина, но не из формальдегида или глицина; однако они трактуют это не как результат прямого действия на биосинтез пуринов, а как возможное влияние на какую-то окислительную реакцию в обмене соединений с одним углеродным атомом.
Белковый обмен
Очевидно, что благодаря своему влиянию на синтез метионина витамин B12 оказывает какое-то действие на белковый обмен. Например, можно ожидать, что цианкобаламин будет улучшать использование белка из рационов, в которых этой аминокислоты недостаточно. Таким образом объясняли некоторые из отмеченных выше благотворных эффектов витамина. Значительную прибавку в весе тела, даже если она связана с увеличением количества не только жира (как часто бывает), но и белка, обычно можно объяснить просто повышенным потреблением пищи животными, получающими витамин B12. Не было обнаружено никакого влияния витамина B12 на баланс азота и эффективность использования белков у крыс. Различные исследования, однако, указывали на более прямую роль этого витамина в синтезе белка. Так, было установлено, что у крыс с гипертиреозом (гиперфункцией щитовидной железы) витамин B12 способствует удержанию азота. У кур при недостаточности витамина B12 концентрация аминокислот в крови повышена, а белков в плазме – понижена; у человека также показано обратное отношение между концентрациями аминокислот и витамина B12 в крови, что объясняется стимулирующим действием витамина на синтез белков. Сообщается об избыточном выведении с мочой аминокислот, особенно лизина (но также и таурина) при обострении пернициозной анемии и дегенерации спинного мозга. Нарушение нормального обмена тирозина и триптофана могло бы вести к избыточному выделению фенольных веществ, тоже отмеченному при пернициозной анемии, и, возможно, к образованию токсичных веществ, вызывающих гемолиз, которым иногда сопровождается это заболевание; все эти обменные нарушения быстро исчезают после введения витамина B12. Было отмечено, что при дегенерации спинного мозга, часто сопровождающей пернициозную анемию, поражаются некоторые крупные аксоны, нормальное состояние которых поддерживается быстрым обновлением белка. Поэтому исследователи предположили, что витамин B12, специфически излечивающий это состояние, косвенным образом контролирует синтез белка; полагая, что прямое действие витамина направлено на синтез нуклеиновых кислот, они связали свое предположение с гипотезой о том, что РНК служит "шаблоном" для синтеза белка; их данные было бы логичнее истолковать в пользу прямого действия витамина B12 на синтез белков.
Изучалось влияние витамина B12 на включение меченого серина или меченой глюкозы в белки печени и в некоторые отдельные аминокислоты у свиней и крыс. Во всех опытах полученные величины были заметно ниже у животных с авитаминозом. Исследователи приводят соображения в пользу того, что это не было следствием одного лишь пониженного потребления пищи. Данные наблюдения были дополнены исследованиями, проведенными in vitro на препаратах микросом из печени и селезенки нормальных крыс и крыс с авитаминозом. Как показано, между этими группами животных обнаружились большие различия во включении меченых аминокислот; кроме того, при добавлении витамина B12 к препаратам микросом, полученных от животных с авитаминозом, включение аминокислот заметно возрастало.
Ученые пошли дальше и показали, что в надосадочной жидкости после центрифугирования микросом печени находится содержащий витамин B12 «рН5-фермент», катализирующий включение меченых аминокислот в белок. Интересно было бы выяснить, не обладает ли ферментативной активностью комплекс витамина B12 с пептидом, выделенный ранее из печени. Позднее было показано, что «рН5-фермент» содержит большую часть витамина В12, первоначально находившегося в микросомах печени. Этот фермент подвергли дальнейшему фракционированию; он, по-видимому, катализировал как активацию аминокислот аденозинтрифосфатом, так и их последующее включение в белковую фракцию микросом. Кроме того, оба процесса подавлялись антагонистами витамина В12 содержащими остаток анилида вместо одной из амидных групп. Исследователи высказали гипотезу, что витамин В12-фермент действует как активатор-переносчик: он переносит аминокислоты (после активации их карбоксильных групп аденозинтрифосфатом) на "шаблон", возможно, путем транспептидирования, в котором участвуют 6 карбоксамидных групп молекулы витамина. Некоторые ученые приводят соображения, позволяющие предполагать, что некоторые из карбоксамидных групп являются биохимически активными частями молекулы. Другим исследователям пока не удалось подтвердить эти данные; они указывают также, что включение аминокислот в белок микросом не обязательно представляет собой нормальный синтез белка. Таким образом, эти результаты нельзя считать окончательным доказательством прямого действия цианкобаламина на белковый синтез. Однако это привлекательная гипотеза; контролем синтеза апоферментов можно было бы объяснить влияние витамина В12 на ряд, казалось бы, не связанных между собой ферментных систем. В пользу этого можно привести и другие данные; различные исследователи утверждали, что недостаточность витамина B12 у крыс ведет к уменьшению содержания в их печени некоторых ферментов, а именно трансметилазы, рибонуклеазы, цитохромоксидазы и различных дегидрогеназ. Другие авторы установили, что при отсутствии витамина B12 не происходит регенерации ткани печени после частичной гепатэктомии. Все эти данные говорят в пользу прямого или косвенного влияния витамина на синтез белка.
Другие возможные функции
Недостаток цианкобаламина в пище ведет к повышенному выделению тиоцианата; в связи с чем была выдвинута гипотеза, основанная на предполагаемой лабильности групп цианида и конкуренции за цианид между оксикобаламином и ферментом роданезой.
Тесная взаимосвязь между функциями фолиевой кислоты и цианкобаламина привела к предположению о том, что последний катализирует превращение фолиевой кислоты в "цитроворум-фактор" или какую-то другую активную форму; убедительных экспериментальных данных в пользу этого, по-видимому, нет.
Интересные взаимоотношения, видимо, существуют также между витамином B12 и пантотеновой кислотой. Некоторые исследователи утверждали, что в опытах с кормлением кур каждый из этих факторов снижал потребность в другом. Эванс и сотр. обнаружили уменьшение содержания пантотеновой кислоты в печени после введения витамина В12 курам с авитаминозом и предположили, что витамин мобилизует печеночные резервы пантотеновой кислоты. Другие исследователи подтвердили эту взаимосвязь и отметили повышенное содержание витамина B12 в организме крыс с недостаточностью пантотеновой кислоты. Гершоф и сотр. доказали наличие взаимосвязи между тироксином, магнием и витамином B12. Как магний, так и витамин B12 частично снимают ряд эффектов введения тироксина, потерю витамина B12 тканями, подавление роста, разобщение окисления и фосфорилирования, изменение белковых фракций сыворотки. Эти результаты еще ждут своего объяснения.
«Конца пути еще не видно, но есть основания надеяться, что скоро мы будем знать о механизме действия витамина B12 больше, чем мы знаем о действии некоторых других витаминов, открытых гораздо раньше»
Некоторые В12-зависимые ферменты
В12-коферменты многочисленны и различны. Они отличаются тем, что содержат два типа лигандов: метильную группу и 5`-дезоксиаденозин.
Превращение свободного витамина В12 в кофермент происходит в присутствии специфических ферментов и при участии в качестве кофакторов ФАД, восстановленного НАД, АТФ и глутатиона.
При образовании 5-дезоксикобаламинового кофермента АТФ подвергается необычному распаду с отщеплением трифосфатного остатка по аналогии с реакцией синтеза 5-аденозилметионина из метионина и АТФ.
Впервые В12-коферменты были выделены Г. Баркером с сотрудниками в 1958 г. из микробов.
Химические реакции с участием В12-коферментов подразделяют на две группы: реакции трансметилирования и изомеризации. В реакциях первой группы коферменты играют роль промежуточных переносчиков метильной группы. К таким реакциям относятся, например, синтезы метионина и ацетата. Гомоцистеин под воздействием метилкобаламина и тетрагидроилглутаматметилтрансферазы в присутствии восстановленного ФАД и N5-СН3-ТГФК *превращается в метионин. Метильная группа N5-СН3-ТГФК переносится вначале на активный центр фермента, затем на гомоцистеин. Ко второй группе реакций относится изомеризация L-метилмалонил-КоА в сукцинил-КоА.
Диолдегидратаза
Приведем вначале важнейшие данные, полученные за последние годы при исследовании диолдегидратазы, т. е. фермента, катализирующего превращение этандиола-1,2, и пропандиола-1,2, соответственно, в ацетальдегид и пропионовый альдегиды. Оказалось, что один и тот же фермент способен катализировать превращение и этандиола-1,2 и пропандиола-1,2 в соответствующие альдегиды. Примечательной особенностью этого фермента, как и всех остальных аденозилкобаламин-зависимых ферментов, явилось то, что окончание реакции сопровождается деструкцией и высвобождением кофермента из фермент-коферментного комплекса.
Диолдегидратаза представляет собой белок с мол. массой 250000 с единственным активным центром содержащим аденозилкобаламин. Хроматография позволяет разделить фермент на две субъединицы с разными молекулярными массами. Каждая из субъединиц неактивна, рекомбинация их приводит к восстановлению активности. Весьма важным и, по-видимому, общим свойством всех аденозилкобаламин-ферментов, является чувствительность диолдегидратазы к сульфгидрильным ингибиторам. Образование тройного ферментного комплекса (апофермент-АденозилКобаламин-пропандиол-1,2) полностью защищает фермент от действия ртутьсодержащих ингибиторов. Это позволяет утверждать, что HS-группа (или группы) фермента может иметь большое значение для проявления биокаталитической активности. Важно подчеркнуть, что защищающим действием, помимо аденозилкобаламина, обладают и другие Кобаламины (CN-Кобаламин, метилкобаламин), введение которых в ферментный комплекс вместо кофермента приводит к его инактивации. Тем не менее расщепление такого комплекса после обработки SH-соединением и последующая реконструкция с аденозилкобаламином вновь восстанавливает активность. Изучение химической модификации этого фермента выявило большое значение различных аминокислотных остатков в активном центре фермента. Так оказалось, что один остаток аргинина на моль фермента является необходимым для проявления каталитической активности диолдегидратазы. Наконец, недавно было продемонстрировано значение другой основной аминокислоты – лизина для проявления ферментативной активности. Остаток лизина, важный для обеспечения активной олигомерной структуры фермента и связывания аденозилкобаламина, локализован в низкомолекулярной субъединице. Остатки основных аминокислот обеспечивают ионное взаимодействие между субъединицами.
Глицеролдегидратаза
Другой фермент, катализирующий превращения вицинальных гликолей в альдегиды – глицеролдегидратаза или глицеролгидролиаза ответственен за изомеризацию глицерина в β-оксипропионовый альдегид и продуцируется как некоторыми штаммами Klebsiella р., так и Propionibactereciae. Кофакторами, необходимыми для проявления активности глицеролдегидратазы, являются аденозилкобаламин и К+. Очистка фермента из Кl. р. привела к выделению ферментного комплекса с мол. массой 188000, содержащего две субъединицы разного размера и 1 моль аденозилкобаламина на 1 моль фермента. Меньшая субъединица с мол. массой 22 000 в свою очередь распадается на два белка с мол. массой около 12 000. Самосборка субъединиц в ферментном комплексе промотируется субстратом – глицерином, аденозилкобаламином и ионом К+. Интересно, что ион Na+ ингибирует активность фермента и ни одна из субъединиц по отдельности не способна связывать аденозилкобаламин.
Аналогично диолдегидратазе, глицеролдегидратаза ингибируется сульфгидрильными ингибиторами, причем в опытах с обработкой субъединиц и последующей сборкой было показано, что меньшая субъединица после обработки еще сохраняет 25%