Витамины В12 и В15
Этаноламин-аммиак-лиаза
Фермент, осуществляющий превращение этаноламина в ацетальдегид и аммиак – этаноламин-аммиак-лиаза – был описан в 1965 г., очищен и выделен в гомогенном состоянии в 1968 г.
Этот аденозилкобаламин-фермент интенсивно исследовался в работах Бэбиора и Ейбилиса. Итоги изучения фермента можно суммировать следующим образом: оказалось, что, в отличие от диолдегидратазы, единственным субстратом этаноламин-аммиак-лиазы является этаноламин. Позднее было выяснено, что L-2-аминопропанол также может превращаться в пропионовый альдегид и аммиак. Однако это превращение сопровождается необратимым расщеплением кофермента. При реакции NH2-гpyппa всегда перемещается от С2 к С1 (т. е. к атому, с которым связана ОН-группа). В опытах с меченым 18О Н2О было показано, что гидроксил при С1 всегда остается в продукте. Тем самым был исключен механизм образования ацетальдегида через промежуточный имин, гидролиз которого обязательно привел бы к включению метки в продукт. Наблюдаемый во всех аденозилкобаламин-зависимых реакциях перенос водорода С1→С2 был обнаружен и в этой реакции. Опыты с энантиомерами многократно меченого субстрата - 2-амино-[22H, 23Н]-этанола свидетельствовали о рацемизации продукта (ацетальдегида). Несмотря на то, что прямых доказательств перемещения NH2-группы от С2 к С1 не было получено, процесс превращения этаноламина в ацетальдегид и аммиак описывается по аналогии с другими реакциями.
Фермент представляет собой довольно большой белок с мол. массой 520000. В пятимолярном растворе гуанидин-НСl он диссоциирует – на субъединицы с мол. массой 50000. Показано, что фермент содержит два независимых активных центра. Подобно диолдегидратазе фермент активируется одновалентными катионами К+ и NH4+ и ингибируется сульфгидрильными ингибиторами.
Аденозилкобаламин-зависимые мутазы
Следующую группу Аденозилкобаламин-ферментов, составляют мутазы, катализирующие перегруппировки углеродного скелета и приводящие к обратимым превращениям субстратов с разветвленной цепью в соединения с прямой цепью. Среди этих ферментов хорошо изучены два – глутаматмутаза и метилмалонил-СоА-мутаза.
Глутаматмутаза
Фермент, катализирующий превращение L-глутамата в L-трео-β-метиласпартат, был выделен, из Clostridium tetanomorphum. Показано, что многочисленные фотосинтезирующие микроорганизмы также содержат глутаматмутазу. Фермент, кроме аденозилкобаламина, нуждается в SH-соединении, однако, в отличие от диолдегидратаз и других аналогичных ферментов, для проявления каталитической активности не требуются одновалентные катионы. Фермент высокоспецифичен в отношении структуры субстратов. Ни аналоги глутаминовой кислоты, ни аналоги β-метиласпарагиновой кислоты (как, например, β-этиласпартат) не являются субстратами мутазы.
О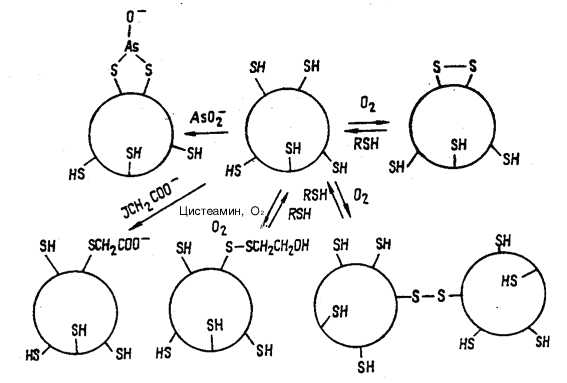
Схема 4. Схема доказательства наличия и роли SH-групп S-компонента глутаматмутазы.
пыты по очистке фермента позволили установить субъединичную структуру и этого аденозилкобаламин-зависимого фермента. Были получены в гомогенном состоянии две субъединицы, которые были названы S- и Е-белками. Каждый из белков не обладал порознь активностью. Рекомбинация их и взаимодействие с коферментом приводили к восстановлению активности. Первым был очищен Е-белок. Определение молекулярного веса показало, что это довольно большой белок с мол. массой около 128 000. В отличие от ферментов, рассмотренных выше, добавление Кобаламина не защищало Е-компонент глутаматмутазы от инактивации в растворе. Е-компонент связывал 1 моль аденозилкобаламина, а в присутствии семикратного избытка S-компонента дополнительно связывал еще один моль кофермента.
Компонент S после очистки, как оказалось, обладал намного меньшей мол. массой 17000 и, по-видимому, содержал важные для проявления ферментативной активности SH- группы. Титрование S-белка сульфгидрильными реагентами показало, что на 1 моль белка приходится пять SH-групп. Примечательной особенностью компонента была его способность к димеризации в присутствии О2. Расщепление димера осуществлялось обработкой последнего каким-либо RSH-соединением. Это свидетельствовало об образовании межмолекулярного дисульфидного мостика. Инактивация S-белка с помощью AsO2- доказывала наличие в активном центре по крайней мере одной из двух вицинальных тиольных групп. Превращение SH-групп S-белка представлены на схеме 3.
Метилмалонил-СоА-мутаза
Другой аденозилкобаламин-зависимый фермент, осуществляющий перегруппировку углеродного скелета метилмалонил-СоА в сукцинил-СоА был также сначала выделен из микроорганизмов, а затем из тканей млекопитающих. Оказалось, что этот кобаламин-зависимый фермент выполняет метаболически важную роль на пути превращения пропионил-СоА в сукцинил-СоА. Схема этого участка метаболизма включает 3 фермента: биотин-зависимую карбоксилазу, рацемазу, превращающую D-метилмалонил-СоА в L-изомер и рассматриваемую кобаламин-мутазу. После очистки метилмалонил-СоА-мутазы оказалось, что это субъединичный фермент с мол. массой 124000, расщепляющийся на два компонента с мол. массой 61 000 и 63000. Выделенная из печени овцы метилмалонил-СоА-мутаза представляет собой окрашеный в оранжевый цвет белок с мол. массой 165000. Фермент связывал 1 моль аденозилкобаламин на 75000.
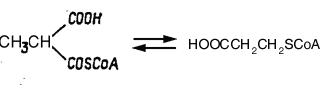
Рисунок 8. Превращение
метилмалонил-СоА в сукцинил-СоА.
2-метиленглутаратмутаза
С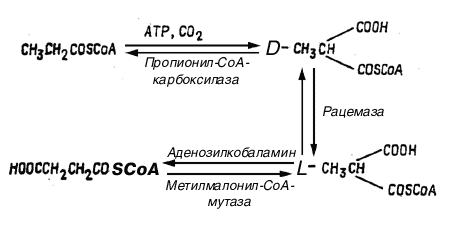
Схема 5. Схема превращения пропионил-СоА в сукцинил-СоА
ледующий сходный по действию Аденозилкобаламин-зависимый фермент-это 2-метиленглутаратмутаза, катализирующая обратимое превращение между 2-метиленглутаратом и 2-метилен-З-метилсукцинатом. Фермент был выделен из микробиологических источников при выращивании Clostridium на средах, содержащих никотиновую кислоту. Определение молекулярной массы частично очищенного препарата дало величину 170000. Обработка йодацетатом приводит к потере активности, что, очевидно, свидетельствует о наличии важных для катализа SH-групп. Действие AsО2-, однако, не выявило присутствия вицинальных дитиольных групп.Ферменты, трансформирующие α, ω-диаминокислоты
Еще одна группа аденозилкобаламин-зависимых ферментов была выявлена при исследовании микроорганизмов, растущих на L-лизине. Эти ферменты катализировали перенос NH2-гpyппы от концевого углеродного атома в диаминокислотах к соседнему атому углерода. Недавно описан аденозилкобаламин-зависимый фермент, который осуществляет перенос NH2-группы из α- в β-положение аминокислоты лейцина.
Рассмотрим более подробно аденозилкобаламин-зависимые ферменты, трансформирующие α, ω-диаминокислоты. Эти ферменты выделены из различных штаммов Clostridium.
Важно, что все три фермента в высшей степени специфичны для каждого из субстратов. Замена субстрата для данного фермента на субстраты других аминомутаз не позволяет осуществлять перенос аминогруппы.
D-α-Лизинмутаза выделена из С. sticklandi, мол. масса 250000. В процессе очистки фермента не происходило отщепления аденозилкобаламина, что свидетельствует о большой прочности связи комплекса апофермент-кофермент. Аналогично от L-β-лизинмутазы в процессе очистки аденозилкобаламин также не отделялся. Это тетрамерный фермент с мол. массой 160000; его субъединичная структура была подтверждена после того, как удалось выделить компоненты с мол. массой 32000 и 52000. Оказалось, что для обеспечения нормальной каталитической активности обеих мутаз необходим белок с мол. массой 60000. Как видно, аминомутазы сохраняют способность защищать в полностью реконструированном виде важные для биокатализа SH-группы. Это свойство характерно для большинства Аденозилкобаламин-ферментов.
Орнитинмутаза также представляет собой фермент с прочно связанным аденозилкобаламином, который не отщепляется при очистке. Очищенный фермент имел мол. массу 170 000 и диссоциировал на две субъединицы с мол. массой 90000. Этот фермент не требовал для своей активации какого-либо SH-белка, однако сам содержал важные для биокатализа SH-группы, вследствие чего ингибировался под действием тиоловых ингибиторов.
Заслуживает особого внимания прочность, с которой связан аденозилкобаламин во всех трех ферментах. При обработке их внутренним фактором ферменты инактивировались. Сравнительное исследование трех аминомутаз показало, что в дополнение к аденозилкобаламину для проявления их активности требуются: для D-α- и L-β-мутаз ионы Mg2+ и одновалентные катионы, причем для D-α-лизинмутазы-это К+, Rb+ и NH4+ (фермент ингибируется при добавлении Na+ и Li+). L-β-лизин-мутаза в разной степени активна в присутствии Li+, Na+, К+, Rb+, Cs+ и. NH4+. Для проявления активности орнитинмутазы добавления ионов металлов вообще не требуется.
Поразительное отличие аминомутаз от всех остальных кобаламин-зависимых ферментов состоит в том, что вторым обязательным коферментом для них является пиридоксальфосфат, который обеспечивает перенос ω-NH4-гpyппы в форме пиридоксамина или пиридоксальдимина. Очищенная орнитинмутаза неактивна до тех пор, пока к реакционной смеси не будет добавлен пиридоксальфосфат (PLP). Очевидно, что PLP входит в активный центр фермента и, по-видимому, связан в виде основания. Шиффа с ε-NН4-группой остатка лизина белка.
Рибонуклеотидредуктаза
Рибонуклеотидредуктаза - фермент, катализирующий конверсию рибонуклеотидов в 2`-дeзoкcиpибoнyклeoтиды. Этот фермент, имеющий ключевое значение для биосинтеза ДНК у большинства живых организмов, представляет собой железо-протеиновый комплекс, не зависящий от корриноидов. Однако ряд микроорганизмов и различные Euglenophyt содержат рибонуклеотидредуктазу, коферментом которой является аденозилкобаламин. Оказалось, что фермент состоит из одной полипептидной цепи с мол. массой 76000. Субстратом для рибонуклеотидредуктазы являются рибонуклеозидтрифосфаты. Для очищенной рибонуклеотидредуктазы необходимыми кофакторами, кроме аденозилкобаламина, являются тиолы.
Витамин В15
Получение и аналоги витамина В15
Впервые, как уже было упомянуто во введении, витамин В15 был обнаружен в экстракте печени быка.
Пангамовая кислота представляет собой эфир D-глюконовой кислоты и диметилглицина с молекулярной массой 281.
(СH3)2NCH2COOCH2(HCOH)4COOH
П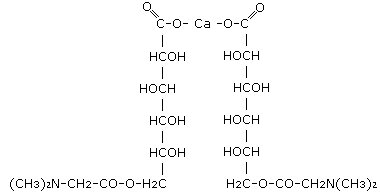
Рисунок 9. Пангамат кальция.
олучают пангамовую кислоту следующими двумя способами:Взаимодействием D-глюконолактона с монохлоруксусной кислотой и последующей обработкой продуктов реакции диметиламином.
Этерификацией глюконовой кислоты с диметилглицином. (выход около 25%)
Пространственное строение молекулы витамина В15 изображено на рис. 9 (Приведено строение пангамата кальция, соли, применяющейся в терапевтических целях)
Аналогами витамина В15 можно считать ряд соединений, представленных на рис. 10, так как во всех этих соединениях метильная группа лабильна, что и обуславливает биохимические свойства витамина В15.
Механизм действия
Потребность в витамине В15 (по Кребсу, данные от 1951 г.) составляет менее двух мг. в сутки. Однако принадлежность пангамовой кислоты к витаминам не доказана, в частности не существует достоверных сведений об авитаминозах или гипервитаминозах, связанных с этим соединением. Предпринимались попытки определить токсичность пангамовой кислоты в связи с ее широким применением в терапии. Выяснилось, что токсическая доза для витамина В15 приблизительно в 100000 раз превышает терапевтическую, т. е. вещество, фактически, безвредно.
Если кобаламиновые ферменты являлись в реакциях трансметилирования переносчиками метильной группы, то пангамовая кислота, судя по всему, выступает в этих реакциях в качестве донора одноуглеродного рацикала.
Лишь немногие вещества способны передавать СН3-группу другим молекулам. Среди них метионин, холин, бетаин и некоторые незаменимые аминокислоты.
В целом кажущаяся универсальность биологического действия витамина В15 (см. раздел «Клиника») обусловлена метилирующей способностью пангамовой кислоты и ее активностью в окислительных процессах.
К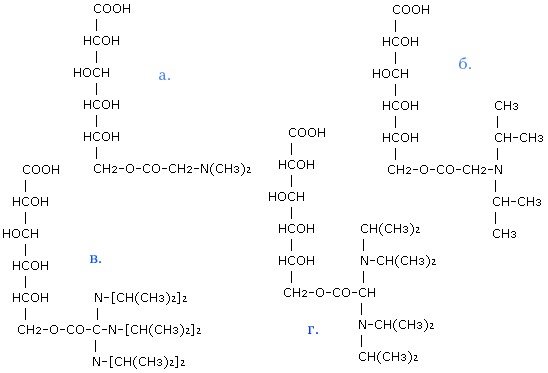
Рисунок 10. Гомологи пангамовой кислоты.
а) Глюконодиметиламиноацетат б) Глюконодиизопропиламиноацетат в) D-глюконотри-(N-диизопропиламино)-ацетат г) Глюконо-бис- (диизопропиламино)-ацетат
ак и витамин В12, пангамовая кислота принимает участие в реакциях синтеза метионина, холина, креатина, адреналина, стеринов и стероидных гормонов.
П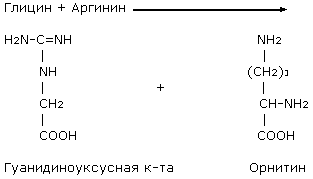
о
теории Борсука
и Дубнова синтез
креатина проходит
в две стадии.
На первой стадии,
которая проходит
в почках, из
аргинина и
глицина образуется
гуанидиноуксусная
кислота, затем
в печени гуанидиноуксусная
кислота подвергается
метилированию
(вторая стадия).
Последовательность
синтеза креатина
была подтверждена
опытами с изотопами
в работах Блоха
и Шенгеймера
(Bloch, Shoengheimer,
1941) и ряда других
исследователей.
Б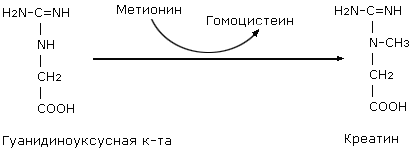
орсук
и Дубнов в опытах
in vitro
установили
высокую специфичность
креатинсинтезирующей
системы к метильному
донору (из 30
испытанных
аминов в реакцию
вступили лишь
метионин и
холин).
Способность пангамовой кислоты заменять в реакциях трансметилирования такой классический донор метильной группы, как метионин, вызывает у исследователей большой интерес.
Предположительно
характерными
для пангамовой
кислоты являются
реакции окислительного
деметилирования,
протекающие
аналогично
подобной реакции
саркозина.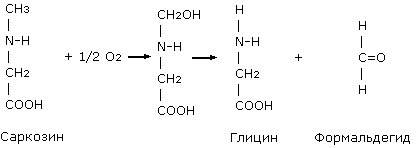
Образующийся
формальдегид
используется
затем в реакции
синтеза серина
или конденсируется
– в зависимости
от условий
ферментативного
процесса.
Описанный процесс начинается переносом атома водорода с саркозина (или диметилглицина) на саркозиндегидрогеназу (соотв., диметилглициндегидрогеназу), затем атом водорода передается флавопротеину, через него ферментам дыхательной цепи (цитохромы b, c, a, a3) и, наконец, кислороду. Стимуляция витамином В15 тканевого дыхания обусловлена, по всей видимости, именно этим процессом.
Клиника
Витамин В12
В качестве иллюстрации широты клинического применения витамина В12 можно привести выдержку из «Инструкции по применению витамина В12», утвержденной фармакологическим комитетом Ученого совета Минздрава СССР 29 июня 1955 года:
«Витамин В12 представляет собой кристаллическое вещество красного цвета, обладающее выраженным кроветворным действием в ничтожно малых дозах. Применение показано при следующих заболеваниях:
Болезнь Аддисон-Бирмера, включая случаи с нарушением функций нервной системы
Спру (тропическая и нетропическая формы)
Мегалобластическая анемия у детей
Рекомендуется испытать*:
Лучевая болезнь
Гиперхромная макроцитарная анемия
Анемии канкрозные
Анемии после резекции желудка
Анемии различного происхождения в предоперационном периоде.
Анемии макроцитарные гастроэнтерогенные
Острые хронические гепатиты и циррозы печени
Токсические анемии»
Вопрос о том, действует ли витамин В12 непосредственно на костный мозг, или его роль состоит лишь в активации фолиевой кислоты путем перевода ее в фолиновую.
В опытах Астальди, Вальдини и Фругони (1948), Томпсона (1952), Нивега (1953) с культурами тканей показали, что печеночные экстракты, также как и фолевая кислота в чистом виде, будучи добавлены к культуре костного мозга больных пернициозной анемией в стадии обострения способствуют ускорению вызревания мегалобластов и появлению нормобластов, в то время как кристаллический витамин В12 оказался неэффективен.
Витамин В15
Пангамовая кислота выпускается отечественными фармацевтическими предприятиями в виде кальциевой соли (пангамат кальция). Она активирует кислородный обмен, применяется при острых отравлениях алкоголем и другими наркотиками, при применении препаратов барбитуровой кислоты, салицилата натрия, ацетилхолина, кортизона, при отравлениях хлорсодержащими органическими соединениями и антибиотиками тетрациклинового ряда. Проявляет липотропный* эффект.
Липотропное действие проявилось при лечении гепатита и цирроза печени (алкогольного, сифилитического и иного происхождения). Этот эффект выражается в снижении содержания альбуминов и повышении до нормы содержания γ-глобулинов, усилении диуреза, увеличении содержания креатина в крови и моче, улучшении общего состояния: появлении бодрости, аппетита, нормализации сна, смягчении локальных симптомов. Применение пангамовой кислоты также стабилизирует деятельность системы гипофиз-надпочечники и центральной нервной.
Активирует кислородный обмен, участвует в окислительных процессах. Улучшает трофику сердечной мышцы в результате стимуляции биосинтеза креатина и креатинфосфата и активации ферментов дыхательной цепи. Оказывает положительное влияние при кислородном голодании токсической природы. Существенно повышает активность дегидразы при некотором снижении активности цитохромоксидазы (вышеупомянутый цитохром а3). Снижение активности цитохромоксидазы связывают со снижением напряженности переноса кислорода через систему цитохром-цитохромоксидаза. (Функция последней сводится к катализу реакции между кислородом и восстановленной формой последнего цитохрома). А. В. Докукин, З. С. Константинова, Ю. С. Чечулин и Ю. В. Букин обнаружили отчетливо выраженное защитное действие при локальной гипоксии сердца: кошкам перевязывали левую коронарную артерию. У тех из них, которым давали заблаговременно витамин В15 аритмия и фибрилляция возникали в среднем через 10,6 минуты, в то время как у контрольных животных уже через 3,8 минуты.
Противотоксическое действие пангамовой кислоты объясняется ее вероятным участием в биосинтезе холина, который связывает и выводит токсические вещества и/или стимуляцией окисления токсических субстратов. Были получены положительные результаты при лечении больных с хроническим алкоголизмом (по мнению Н. К. Гудковой и З. Л. Синкевич, применение витамина В15 способно заменить традиционный курс лечения), различными наркоманиями (кодеиномания, морфинизм, гашишизм и др.). Отмечается исчезновение влечения к наркотику и регресс соматических изменений (цирроза, сердечно-сосудистых заболеваний, гепатита).
Существует опыт применения пангамовой кислоты у детей с олигофренией в стадии выраженной дебильности. Лишь в трех из 15-ти случаев не наблюдалось улучшения речи, лишь в шести – интеллектуальной деятельности, лишь в двух случаях не происходило улучшения общего психического состояния. Было отмечено выраженное стимулирующее воздействие на функциональную активность мозга, было указано на возможность применения пангамата кальция в психиатрической клинике.
Заключение
Довольно!
Чтение принесло свои плоды: в голове у меня все спуталось
окончательно и я мгновенно убедился, что не понимаю ничего…
Михаил Булгаков, «Записки юного врача»
Витамины В12 и В15 играют в организме важную роль, причем в некоторых биохимических процессах они могут принимать совместное участие (например, в реакциях трансметилирования). Хотя большая часть данного реферата посвящена витамину В12, я стремился по возможности подчеркнуть возможности совместного участия этих витаминов в биологических реакциях.
Все же главная задача, поставленная передо мной, заключалась в возможно более полном изложении химических свойств цианкобаламина и пангамовой кислоты и рассмотрении конкретных процессов, проходящих в организме с их участием.
Поэтому при подборе литературы я руководствовался стремлением сконцентрировать внимание именно на химических данных, а не на клинических исследованиях биологической активности этих веществ. В связи с этим нельзя не отметить того, что большая часть литературы, которую можно встретить в библиотечных каталогах, посвящена именно клиническим аспектам. Впрочем, клинические данные также не были обойдены вниманием при написании реферата.
Мною были использованы как источники труды, принадлежащие перу исследователей, стоявших у истоков изучения витаминов В12 и В15 (в частности Лестера Смита) или посвятивших значительную часть своей жизни вопросам, связанным с их участием в биохимических процессах (как И. Н. Гаркина). В таких работах я обнаружил не только достаточное количество научных сведений по интересующему меня вопросу, но и живой интерес авторов к обсуждаемой теме, выливающийся в увлекательный и весьма, поэтому, убедительный стиль изложения материала. Это существенно облегчило написание данного реферата.
В связи с тем, что рассматриваемые вещества имеют весьма сложную структуру, а обозначения их, видимо, еще не устоялись окончательно, возникали сложности при рассмотрении разных источников, в которых одни и те же вещества могли быть обозначены по-разному, а так как в некоторых статьях мне не удалось найти расшифровки химических сокращений, оказалось необходимо дополнительно широко использовать справочную литературу.
За время работы над рефератом я получил достаточно большой объем знаний не только о цианкобаламине и пангамовой кислоте, а это достаточно специфическая информация, но и по менее конкретным вопросам, таким как общие закономерности взаимодействия организма с биологически активными веществами, биохимические методы исследования и др. Самое большое впечатление на меня произвела колоссальная сложность человеческого организма как системы, в которой сосуществует и взаимодействует не поддающееся на первый взгляд осмыслению количество различных веществ, а также то, сколько еще загадок предстоит разрешить человечеству прежде, чем оно придет хотя бы к удовлетворительному пониманию биохимических закономерностей.
Список использованной литературы
Лестер Смит «Витамин В12», Москва, изд. Иностранной Литературы, 1962 г.
А. М. Юркевич, И. П. Рудакова «Структура, свойства и механизм действия кобаламиновых коферментов», серия «Итоги науки и техники: биоорганическая химия», т. 5, Москва, ВИНИТИ, 1985
В. М. Березовский «Химия витаминов», Москва, «Пищевая промышленность», 1973 г.
Т. Т. Березов, Б. Ф. Коровкин «Биологическая химия», Москва, «Медицина», 1992 г.
А. Л. Ленинджер «Основы биохимии», Москва, «Мир», 1985
«Витамин В12 и его клиническое применение», Москва, «Медицина», 1956 г.
Паханцева Е. С., Пчелкина В. В., Сыромятников Е. Ю. «Кобамидные ферменты и их роль в реакциях трансметилирования», журн. «Витамины», вып. 7, Киев, «Наукова думка», 1973 г.
И. Н. Гаркина «Пангамовая кислота и ее производные», Москва, Институт Биохимии имени А. Н. Баха, 1965 г.
И. Н. Гаркина «Вопросы медицинской химии», Москва, 1962 г.
Большая Советская Энциклопедия, Москва, «Советская Энциклопедия», 1962 г.
Дополнительно:
И. В. Стрельчук «О лечении хронического алкоголизма и других наркоманий витамином В15», Москва, НИИ Судебной Психиатрии им. Сербского, 1962 г.
М. Г. Блюмина, Т. К. Белякова «Опыт применения витамина В15 при олигофрении у детей дошкольного возраста», Москва, 1963 г.
* Известная качественная реакция на α-аминокислоты, дающая интенсивное фиолетовое окрашивание.
* ТГФК – тетрагидрофолевая кислота.
* Здесь список заболеваний процитирован не полностью
* Т. е. предотвращает жировую инфильтрацию печени. Инфильтрация – скопление в ткани клеточных элементов в смеси с кровью и лимфой.