Визначення статі молодняка птиці
d – горбок подібний з типом с, по винятком того, що він має плоский язикоподібний зовнішній вигляд (10–17%);
e – піднесення у вигляді горизонтального гребеня (2–10%). Варіації цього типу важко диференціюються відносно статі;
f – плоский горбок розщеплений вертикально по серединній лінії (1–8%). Цей тип горбка може бути легко переплутаний із чоловічим типом g. Однак, більш плоска поверхня піднесення (на відміну від округлої чоловічої) дозволяє класифікувати його носія – як «жіночу особину».
g – маленький гострий жіночий горбок, розташований трохи вліво від середньої лінії. При розкритті клоаки курчат горбок значно витикається й звішується долілиць, що чітко відрізняє його від чоловічого типу (2–8%);
h – горбок жіночого типу, що відрізняється від чоловічого горбка занадто малими розмірами (1–5%).
На частоту зустрічальності типів статевих горбків впливає породна приналежність курчат й ступінь тиску пальців оператора на стінки клоаки. Досвідчені визначники статі вважають, що молодняк яєчного напрямку продуктивності легше сексувати, ніж курчат м’ясних порід і кросів. Це пов’язане з тим, що останніх слабкіше виражений статевий диморфізм у будові клоаки (статевий горбок у півників має менші розміри й часто розташований глибоко в клоаці). Крім того, курчата м’ясного напрямку продуктивності більші й пухкіші, що змушує операторів поводитися з ними дуже обережно.
Особливості сексування індичат. У індичат, на відміну від курчат, зі збільшенням часу після вилуплення (у годинах) розпізнавання статі за будовою клоаки замітно полегшується. Нижче наводимо опис статевого диморфізму в будові клоаки у добових індичат, узятий нами з навчального посібника Н.П. Третьякова й Г.С. Крок [39]. Зовнішній статевий орган добового індичати самця являє собою два однакові кулясті горбка, розташовані на краю клоаки з боку живота. Кулясті статеві горбки самця пружні, блискучі й у більшості особин червоного кольору.
У самочок зовнішні статеві органи виражені двома шкірними складками, з’єднаними між собою у вентральній частині клоаки. Форма складок трохи варіює. У більшості самок з нижньої сторони клоаки вони стовщені й витягнуті. Зустрічаються особини, у яких стовщенні складки більш округлі, що часто є причиною помилкової діагностики статі (самок приймають за самців). На відміну від статевих горбків самця, шкірні складки самки мають блідо-рожевий колір. При легкому масажуванні вони не блищать і стають плоскими, що також допомагає відрізнити самок від самців.
Техніка вентсексингу у добових індичат майже така ж, як у курчат. Відмінними рисами є те, що немає необхідності звільняти кишечник індичати від посліду, а також сильно розкривати у нього клоаку. Часто буває досить злегка відтягнути пальцями правої руки хвостик пташеняти до спини, щоб виявити горбки або складки, що диференціюють стать. Якщо ж статеві горбки у самців і шкірні складки у самок розташовані на 2–3 мм глибше краю клоаки, то тоді їх варто розкрити сильніше. Для цього великий і вказівний пальці правої руки розміщають праворуч і ліворуч від клоаки й, злегка розтягуючи її, нахиляють хвостик індичати у бік спинки.
Визначення статі гусенят, каченят, фазанят і перепелят. У добового молодняку водоплавної птиці (гусаки, качки, лебеді) статевий диморфізм у морфології клоаки виражений більш чітко, ніж у сухопутної (кури, індички, цесарки, фазани), що, у свою чергу, забезпечує більш високу точність їх сексування японським методом. У добових гусенят і каченят статевий горбок має форму злегка загнутого буравчика, розміром 1,5 – 2,0 мм [40]. Він має серединне положення в нижній частині клоаки й, у звичайному положенні пташеняти, схований у складках слизуватої оболонки. У самочок горбок завжди відсутній, а замість нього видні дві округлі шкірні складки, що зрослись між собою.
У добових пташенят водоплавної птиці, так само як і у індичат, немає необхідності звільняти кишечник від його вмісту. У них також відсутні жорсткі вимоги до віку молодняку, у якого визначається стать. Однак гусенята й каченята молодче 8-ми годинного віку ще дуже вологі, пухкі й слабкі. І тому раннє визначення їхньої статі може викликати у такого молодняку травми клоаки й стінок жовточного міхура.
Техніка сексування добових цесарят, фазанят і перепелят така ж, як і у курчат, однак у зв’язку з дуже маленькими розмірами статевих горбків у самців застосування японського методу в цьому випадку значно спрощується при використанні операторами бінокулярної лупи або збільшувального скла зі збільшенням в 3–5 разів.
Контроль точності вентсексингу. Оперативний контроль за точністю визначення статі молодняку здійснюють за допомогою анатомічного методу. Цей метод абсолютно точний, однак досить трудомісткий і сполучений зі значними матеріальними витратами, викликаними забоєм пташенят. В основу цього методу покладені анатомічні розходження самців і самок у будові гонад (статевих залоз), локалізованих у черевній порожнині [39]. Перед визначенням статі анатомічним методом курчат необхідно приспати концентрованими парами діетилового ефіру. Із цією метою курчат розміщають у герметично закриту тару, куди також кладуть тампон, змочений ефіром. Потім кожне приспане курча беруть у ліву руку й за допомогою кривих ножиців роблять розтин черевної порожнини. Далі, кінцями ножиців або пінцетом відсувають убік жовточний міхур і печінку, які прикривають статеві залози, прикріплені до хребетного стовпа курчат в області хрестця.
Ідентифікацію статі добового молодняку анатомічним методом здійснюють шляхом огляду їх гонад (рис. 13). У добових самців всіх видів птиці в області хрестця (у глибині черевної порожнини) розташовані парні сім’яники білуватого кольору, які нагадують рисові зерна. Лівий сім’яник у деяких видів птиці трохи більше правого. Потрібно пам’ятати, що сім’яники не міцно закріплені в черевній порожнині (підвішені на коротких брижах) і при недбалому розкритті вони можуть бути відірвані. У добових півників довжина гонад приблизно однакова й становить 4,0-4,5 мм при їхній товщині близько 1,5 мм.
Яєчник самки – непарний орган. Він крупніше сім’яників, рожевого кольору, плоский, має форму трикутника з нечіткими границями. Яєчник розташований, як правило, з лівої сторони, а права його частина майже повністю скорочена.
За нашими спостереженнями [30] швидкість визначення статі молодняку при використанні анатомічного методу коливається для різних видів свійської птиці від 120 (гусенята) до 200 (курчата) голів за 1 годину.
Контроль за точністю сексування курчат японським методом проводиться звичайно в господарствах, де утримуються кури яєчного напрямку продуктивності. При визначенні точності сексування у кожного оператора беруть для розтину по 50 голів добових півників і 20 голів курочок з різних ящиків. Після ідентифікації статі у вибірці забитих курчат підраховують кількість помилок і точність сексування молодняку окремо в групі самців (50 гол.) і самок (20 гол.), а також у цілому по аналізованій групі (70 гол.). Для цього використовують наведену нижче формулу:
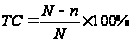 ,
де ТС – точність визначення статі японським методом; N – кількість сексованих пташенят; n – кількість помилкових визначень статі.
У племінних господарствах, що спеціалізуються на розведенні птиці м’ясного напрямку продуктивності (кури, індички, гуси, качки) контроль за точністю визначення статі добового молодняку можна проводити також ретроспективним методом. Для цього розсортованих за статтю японським методом самців і самок розміщують в окремі секції по 200–500 голів і вирощують роздільно до двомісячного віку. У цьому віці статеві ознаки у самців і самок уже помітно проявляються, що й дозволяє встановити справжню стать особин.
На відміну від інших видів свійської птиці визначити стать молодих і дорослих гусей за вторинними статевими ознаками важко, тому що за зовнішнім виглядом гуски й гусаки схожі. Тому, стать гусей у будь-якому віці визначають за наявністю в клоаці репродуктивного органа. Із цією метою кожну особину беруть за ноги й крила, перевертають її і кладуть спиною на стіл або коліна оператора так, щоб хвостова частина тулуба звисала. Зафіксувавши в такому положенні птицю, пальцями обох рук розкривають її клоаку і за наявністю або відсутністю спіралеподібного статевого органа визначають стать особини. У молодих гусаків довжина репродуктивного органа становить 4–5 мм, а у статевозрілих самців – 3–5 см. Більш докладно процедура вентсексингу молодих і дорослих гусаків описано нами в другому розділі.
За даними ряду авторів [34, 40, 41], використання японського методу дозволяє визначити стать добових курчат, цесарят і перепелят з точністю 86–99%, індичат – 90–95%, каченят і гусенят – 96–100%. Помилки у визначенні статі при використанні вентсексингу виникають за наступними причинами: велика кількість некондиційних курчат у партії, глибоке розташування в клоаці статевого горбка самця або занадто малі його розміри, перетримування курчат в інкубаторі, некваліфікована робота операторів (у т.ч. неповне розкриття клоаки пташеняти).
Продуктивність і оплата праці. Поряд з точністю сексування швидкість визначення статі молодняку й вихід кондиційних курчат, індичат, каченят і гусенят після сортування також є найважливішими показниками рівня професійної майстерності оператора. Звичайно, продуктивність праці сортувальника виміряється шляхом прямого хронометрування процесу визначення статі у 100 пташенят за допомогою секундоміра на початку й кінці роботи.
При гарній організації робочого місця досвідчений сортувальник визначає стать курчат яєчних порід зі швидкістю 700–900 голів/год, м’ясних порід – 500–600 голів/год, індичат, гусенят і каченят – до 500 голів/год. Якість сортування молодняку за статтю залежить від рівня професійної підготовки операторів, впровадження прогресивних методів організації праці, біологічної повноцінності добового молодняку й матеріальної зацікавленості сортувальників.
Відповідно до тарифікації робіт, виконуваних у тваринництві, робота оператора за визначенням статі добового молодняку сільськогосподарської птиці ставиться до шостого розряду. Норми виробітку й розцінки за 1000 розсортованих за статтю курчат, індичат, гусенят і каченят встановлюються у кожному птахівничому господарстві з урахуванням конкретних умов. Оплата праці операторів, як правило, залежить напряму від якості їхньої роботи, у першу чергу – від точності визначення статі молодняку. Наприклад, у дослідному господарстві Інституту птахівництва УААН «Борки» у 2007 році були прийняті наступні диференційовані розцінки, відносно 1000 розсортованих за статтю курчат:
– при точності 90, 0–95,0% – 40,00 грн;
– при точності 85, 0–89,9% – 35,00 грн;
– при точності 80, 0–84,9% – 25,00 грн.
При сортуванні м’ясних курчат, індичат, каченят і гусенят розцінки за 1000 голів розсортованого за статтю молодняку збільшуються на 40–50%. Крім основного заробітку, операторам виплачується щомісячна премія (до 20% від середнього заробітку) за високу точність визначення статі молодняку (96,0–100,0%).
Недоліки й слабкі сторони вентсексингу. Повноцінність добового молодняку, реалізованого на вирощування, залежить, насамперед, від генотипу й здоров’я батьків, якості інкубаційних яєць і режиму інкубації [34]. У той же час, недбале відношення до молодняку в інкубаторії може помітно погіршити його кондиційність і біологічну повноцінність. Зокрема, травми тонкої стінки жовточного міхура, виникаючі іноді в момент сексування пташенят японським методом, призводять до жовточного перитоніту й загибелі молодняку в початковий період вирощування. Наші спостереження за роботою досвідчених операторів показали, що в процесі сексування спочатку здорового молодняку відхід у вигляді слабких і калік склав у яєчних і м’ясних порід, відповідально, 0,28 і 1,57% [42].
Процедура сортування пташенят за статтю японським методом значно збільшує час між вибіркою молодняку з інкубатора й посадкою його в пташник, що додатково стресує птицю й знижує її збереженість при наступному вирощуванні на 0,4–2,0% [43, 44]. У деяких випадках (слабкий молодняк, некваліфіковані оператори) застосування вентсексингу збільшує відхід курчат у процесі вирощування на 8–15% [45]. Крім того, цей метод може сприяти горизонтальному перезараженню птиці збудниками кишкових інфекційних захворювань, що також збільшує смертність молодняку в перші тижні життя.
Таким чином, японський метод, незважаючи на широке застосування у світовому птахівництві, має ряд істотних недоліків. Вентсексинг трудомісткий і складний у використанні для сортувальників; не завжди забезпечує високу точність і швидкість сексування молодняку; вимагає тривалого періоду навчання операторів і спеціально обладнаних робочих місць. Цей метод також стресує добовий молодняк, нерідко травмує й перезаражає його збудниками інфекційних захворювань. Все це призводить до вповільнення темпу росту й підвищенню падежу птиці в період вирощування.
Відзначені недоліки японського методу сексування молодняку викликали необхідність розробки більше прогресивних способів діагностики статі добових пташенят – федер- і колорсексингу.
3. Визначення статі курчат за швидкістю росту оперення (федерсексинг)
Історія федерсексингу. Про наявність у генотипі ряду порід курей зчепленого зі статтю домінантного гена, що одержав спочатку назву «азіатського гальма» оперення, уперше повідомив А.С. Серебровський [46] у 1922 році. Цей ген викликає затримку у розвитку оперення пташенят таким чином, що у 10-денних курчат ще не відзначається розвиток хвостового оперення, а махові пір’я у них сильно вкорочені. Пташенята, які рано оперюються того ж віку вже мають хвостові пір’я, а махові у них досягають основи хвоста.
В 1930 р. Д. Уоррен [47] показав, що вже в добовому віці існують чіткі фенотипові розходження між курчатами, які рано і пізно оперюються й запропонував використовувати зчеплене зі статтю успадкування цієї ознаки для сексування добового молодняку.
Пізніше П. Хертвігг і Т.Ріттерсхауз [48] запропонували позначити домінантний фактор, що сповільнює опереність молодняку, символом K («коротке крило»), а його рецесивний алель – k («довге крило»).
Р. Соумз у 1969 р. виявив нову мутацію в K-локусі, і назвав її надповільною опереністю й позначив символом Kn [49]. Фенотипічний ефект цього алеля виражений значно сильніше, ніж гена K.
У 1977 році Мак Гібон [50] повідомив про існування четвертого алеля Ks, і назвав контрольовану їм ознаку «повільної опереністю» і запропонував наступний порядок домінування у цьому локусі: Kn надповільна > Ks (повільна) > K (пізня) > k (рання опереність).
В. Асмундсон і К. Аббот [51] першими повідомили про зчеплений зі статтю домінантний гені пізньої опереності індичок, що за аналогією з курми можна використовувати для ідентифікації статі добових індичат. За своїм фенотипічним проявом алель K індичок нагадує алель Kn домашніх курей. І той і інший сильно сповільнюють швидкість розвитку оперення у молодняку й погіршують зовнішній вигляд дорослих особин. При цьому обоє ці алеля не використовуються як маркери статі добових індичат і курчат.
У цей час зчеплені зі статтю алелі K-k виявлені й у цесарки [177].
П. Хорн і Ф. Біскуп [52] описали зчеплений зі статтю ген пізньої опереності у домашніх голубів, що дозволяє проводити маркуючі стать схрещування, особливо кращі для м’ясних білоперих порід. На відміну від курей домінантний алель локусу K у голубів контролює швидкий темп росту ювенального оперення, а рецесивний алель – уповільнений. Схрещування самців, які рано оперюються з самками, які пізно оперюються дає типове успадкування «хрест-навхрест» і дозволяє з великою надійністю сортувати гібридних голуб’ят за статтю.
Одна з головних вимог до фенотипічних маркерів статі добового молодняку – відсутність їхнього негативного впливу на господарсько-корисні ознаки лінійної й гібридної птиці. Переважна більшість дослідників, що вивчали вплив алелей К и k на продуктивність і життєздатність курей, не виявили розходжень у швидкості росту, конверсії корму, яйценосності, масі яєць і збереженості у особин які рано та пізно оперюються [53–69]. Тому, на цей час система алелей «пізня-рання» опереність молодняку широко використовується для діагностики статі курчат у м’ясному і яєчному курівництві (кроси «Гібро», «Кобб-500», «Ломанн браун», «Бованс», «Домінант», «Заславский», «Зміна», «Родоніт», «Ломанн м’ясний», «Росс білий», «Хаббард», «Конкурент», «КК Кубань 123» і ін.).
Генетичні основи федерсексингу. В основі генетичних методів визначення статі молодняку лежать закономірності спадкування зчеплених зі статтю ознак, добре помітних у добових пташенят. У якості фенотипічних маркерів статевої приналежності особини найчастіше використовуються такі ознаки екстер’єру, як швидкість росту зародкового пір’я на крилі, забарвлення й малюнок пуху молодняку й, у меншому ступені, колір плюсни.
Для того, щоб краще зрозуміти спадкоємну природу аутосексингу взагалі й федерсексингу зокрема, розглянемо генетичні механізми зчепленого зі статтю спадкування у птиці.
Стать добового молодняку, як і інші його ознаки, спадково визначена. Хромосомна теорія спадковості показала, що провідна роль у детермінації статі й у підтримці рівного співвідношення статей при виводі молодняку належить хромосомному апарату. У цей час достовірно встановлене, що диплоїдна кількість хромосом (2n) у курки дорівнює 78, в індички – 82, у цесарки – 74, у качки й голубки – 80.
Хромосоми однієї пари, за якими особини різної статі відрізняються один від одного, носять назви статевих, а інші хромосоми, однакові в обох статях, називаються аутосомами. У гомогаметної статі дві статеві хромосоми ідентичні, а у гетерогаметної – ні.
У птиці чоловіча стать гомогаметна (AA+ZZ), а жіноча – гетерогаметний (AA+ZW), тому самки продукують яйцеклітини двох типів: 50% із хромосомою Z і 50% із хромосомою W. Після запліднення яйцеклітин сперміями, що несуть тільки Z-хромосоми, виникає розщеплення потомства за статтю: 50% ♂♂ (AA+ZZ) і 50% ♀♀ (AA+ZW). У всіх синів одна Z-хромосома батьківська, інша – материнська. Дочки Z-хромосому одержують тільки від батька, а W-хромосому – тільки від матері. На відміну від Z-хромосоми, W-хромосома значно менше за розмірами й не містить більшості структурних генів, які локалізовані в чоловічій хромосомі. У зв’язку із цим, характер спадкування зчеплених зі статтю генів (ознак) відрізняється від менделівського спадкування аутосомних генів і обумовлений поводженням статевих хромосом у мейозі, а також у процесі запліднення.
Відповідно до теорії успадкування ознак, зчеплених зі статтю, для одержання аутосексних (мічених за статтю) курчат домінантний алель завжди повинен привноситися в схрещування гемізиготними самками, а рецесивний – гомозиготними самцями [16,17,70]. При такому напрямку схрещування буде спостерігатися успадкування ознак за типом «хрест-навхрест», тобто, домінантну ознаку матері завжди успадкують тільки сини, а рецесивну ознака батька – тільки дочки.
Оскільки алельні гени К и k локалізовані в Z-хромосомі й контролюють різну швидкість росту махового пір’я у добових курчат, то існує пряма залежність між статтю гібридного курчати й типом опереності його крила.
Механізм перехресного успадкування зчеплених зі статтю ознак молодняку птиці послужив відправною крапкою для розробки федерсексингу – безпомилкового методу визначення статі добових курчат.
Для одержання мічених за статтю курчат, яких можна сексувати за типами опереності крила, необхідно схрещувати гомозиготних півнів, які рано оперюються (k+/k+) батьківської лінії з гемізиготними самками, які пізно оперюються (К/–) материнського лінії. У добовому віці всі гібридні півники успадкують фенотип матері й будуть з пізнім типом опереності крила (К/k+). Навпроти, усі курочки будуть характеризуватися ранньої опереністю (k+/–) (фенотип батька).
Фенотипові розходження між одноденними самцями й самками чітко виражені, що дозволяє сексувати курчат з точністю до 100%.
Племінна робота з федерсексним кросом. Для забезпечення високої точності аутосексування курчат в процесі багаторічної експлуатації федерсексного кросу необхідно постійно підтримувати абсолютну гомозиготність батьківських і материнських ліній за генами ранньої і пізньої опереності молодняку (k і К, відповідно). Із цією метою при відтворенні чистих ліній треба фенотипувати весь добовий молодняк з наступним бракуванням нетипових для кожної конкретної лінії особин. Всі передані на вирощування півники й курочки батьківських ліній повинні бути тільки з раннім типом опереності (k/k, k/–), а материнських – тільки з пізнім.
«Забруднення» вихідних ліній федерсексного кросу невластивими їм маркерними генами відбувається найчастіше в племінний сезон при виконанні наступних технологічних операцій:
– формування батьківського стада (використання півнів і курей без обліку їхнього походження у зв’язку із втратою індивідуальної криломітки);
– штучне запліднення птиці (переплутана сперма півнів-плідників);
– маркування племінних яєць (помилки в зазначеної лінійної приналежності);
– вивід молодняку (змішування курчат батьківських і материнських ліній у вивідних шафах інкубатора).
Оскільки закони генетики виконуються з неухильною точністю тільки при бездоганному дотриманні всіх правил і технологічних норм племінної роботи, то необхідно виключити всілякі помилки, що порушують чистоту схрещування, і, як наслідок цього, знижують точність федерсексування добових гібридних курчат.
Організація робочого місця. Сортування федерсексних курчат за статтю можна починати відразу ж після їхньої виїмки з інкубатора, але не пізніше, ніж через 18 годин після виводу. Більш пізнє визначення статі курчат цим методом небажано, оскільки структура оперення крила починає змінюватися й фенотипові розходження півників і курочок стають менш чіткими.
Перед початком роботи оператор повинен витратити кілька хвилин на психофізіологічну адаптацію, що містить у собі наступні моменти: а) підготовку робочого місця; б) визначення категорійності й віку (у годинах) курчат; в) регулювання освітленості робочого поля; г) перегляд схеми типів опереності й оперативне відновлення в пам’яті образу опереності крил у курочок і півників; д) попередній вибір серед курчат сортувального еталона курочки й півника. Всі ці завдання взаємопов’язані між собою і їх потрібно вирішувати в комплексі й паралельно. Головна мета підготовчого періоду – оператор якнайкраще повинен підготуватися до ефективного багатогодинного сексування добового молодняку.
При федерсексингу вимоги до робочого місця оператора менш жорсткі, чим при вентсексингу. Сортувальник може працювати як у положенні стоячи, так і у положенні сидячи за спеціальним столом. Головна умова ефективної роботи – комфортна позиція оператора й достатнє освітлення об’єкта в полі зору (не менш 500 люкс). Звичайні умови сортування дозволяють федерсексувати курчат зі швидкістю близько 1,5 тис. голів/година. Робота операторів за «каруселлю» сексування збільшує продуктивність праці до 2 тис. голів/година.
Техніка сексування курчат. При федерсексуванні курчат, на відміну від вентсексування, немає необхідності у видаленні посліду з кишечника пташеняти й повної його фіксації в руці. Для визначення типу опереності молодняку необхідно при гарному освітленні оглянути розгорнуте віялом крило обсохлого гібридного курчати. Із цією метою оператор бере курча в праву руку й тримає його ногами долілиць, а головою до себе. Крило пташеняти при цьому потрібно затиснути між великим і вказівним пальцями лівої руки. У цьому положенні на крилі курчати добре видно дві групи зародкового пір’я – першорядні махові й парні до них покрівні, а також другорядні махові й відповідні їм покрівні пір’я. Махові пір’я ростуть від нижнього краю крила, а покрівні – від верхнього. Стать федерсексних курчат визначається шляхом порівняння відносної довжини махових і покрівних пір’їн. Більш зручно це робити оглядаючи першорядні махові й покрівні, оскільки вони розташовані на кінчику крила.
Фенотипові розходження курочок і півників. У курочок, які рано оперюються сім первинних махових пір’їн мають вигляд трубочок довжиною 12–13 мм і приблизно на 1/3 довші й трохи товщі парних до них покрівних пір’їн. У півників з пізнім типом крила зачатки 7-ми первинних махових пір’їн за довжиною й товщиною однакові із покрівними або трохи коротші за них. Ступінь укорочення махових пір’їн у гібридних півників сильно варіює, що варто мати на увазі при сексуванні курчат.
Для зручності ідентифікації півників фенотип «пізня опереність» нами [40] умовно розділений на три підтипи (П1, П2, П3) залежно від відносних розмірів покрівних і махових пір’їн [71]. До підтипу П1 відносяться особини, у яких першорядні махові пір’я за довжиною рівні з покрівними. У півників підтипу П2 середня довжина покривного пір’я (8,0 мм) така ж, як і в півників підтипу П1 (7,9 мм), але першорядні махові в них коротші і їхня довжина становить від 3/4 до 1/2 довжини зачатків відповідних покрівних пір’їн (рис. 15). Добові півники підтипу П3 характеризуються сильно вкороченими маховими пір’їнами (2,5–2,7 мм) і незначно вкороченими покрівними (6,2–7,0 мм). Початки першорядних махових у них приблизно в 2,5–3,0 рази коротші, покрівних пір’їн.
Поряд із алелем пізньої опереності К, у материнських лініях федерсексних кросів з невеликою частотою (1–2%) зустрічається ген повільної опереності Кs. Експресія гена повільної опереності у добових півників полягає у повній відсутності у них першорядного махового пір’я й значному вкороченні зачатків покрівних пір’їн.
Розходження між курочками й півниками насамперед пов’язані з довжиною першорядного махового пір’я, тоді як величина покрівних пір’їн у особинах обох статей приблизно однакова (близько 8 мм). Тому, диференціальна діагностика статі добових федерсексних курчат може базуватися на двох критеріях – абсолютній і відносній довжині першорядного махового пір’я. Абсолютна довжина першорядного махового пір’я у добових курочок з однієї партії варіює, зазвичай, від 11 до 13 мм, тоді як у півників – від 0 до 8 мм. Якщо прийняти за стандарт статі особини абсолютну довжину махового пір’я, то виникає необхідність у вимірі середнього махового пера за допомогою мірної лінійки, що гальмує процес сексування молодняку й значно знижує продуктивність праці оператора. Тому, більш надійною і простою є друга ознака статі курчат – відносна довжина махових пір’їн у порівнянні зі спареними з ними покрівними.
Проведений нами [30] міжвидовий аналіз типів опереності добових індичат, перепеляти й фазанят різних порід показав, що всім їм характерний винятково ранній тип опереності добового молодняку.
Ця обставина виключає можливість одержання у цих видів федерсексного гібридного потомства. Незважаючи на генетичну однотипність у швидкості опереності пташенят із сімейства фазанових, федерсексинг для них у майбутньому принципово можливий, і, насамперед, за рахунок переносу алеля пізньої опереності К від курей за допомогою генно-інженерних маніпуляцій або ж завдяки виявленню в популяціях цих видів спонтанних мутантів з пізнім типом опереності, на базі яких і будуть створені материнські лінії федерсексних кросів м’ясних видів птиці.
Причини помилок при використанні федерсексингу. Якщо батьківська й материнська лінії федерсексного кросу курей повністю консолідовані (гомозиготні) за альтернативними алелями, відповідно, ранньої й пізньої опереності курчат, то «генетичних» помилок у визначенні статі гібридного молодняку в принципі не повинно бути. У всіх федерсексних курчат буде спостерігатися чіткий зв’язок між їхньою статтю й фенотипом крила.
Однак, одиничні помилки все-таки можуть виникати через неуважність оператора. У зв’язку з тим, що у деяких півників з пізнім типом опереності (підтип П2) першорядні махові пір’я на 1/3 коротше покрівних, то при швидкому огляді їхніх крил пізній тип опереності добових самців іноді може бути помилково прийнятий за ранній тип опереності у самок. Таке не розпізнавання образа самця або самки за типом опереності призводить до помилок у визначенні статі федерсексного молодняку – частина півників буде помилково віднесена до групи курочок.
Автоматичний федерсексинг курчат. Щоб уникнути суб’єктивних помилок при фенотипуванні федерсексного молодняку, а також інтенсифікувати процес сортування курчат за статтю, американськими вченими університету штату Арканзас була нещодавно здійснена успішна спроба перекласти процедуру розпізнавання образа крила самців і самок на «плечі» електронного робота [72]. Оптична система автоматичної установки значної збільшує зображення пір’я крила добового курчати, показуючи приховані в первинному пусі ясні для подальшої ідентифікації образи типів опереності добових курчат. Установка містить у собі транспортер для почергової подачі курчат до об’єктива цифрової відеокамери, джерело ультрафіолетового освітлення, комп’ютер для аналізу отриманого зображення й механічний пристрій-сексатор.
Цифрова відеокамера сприймає ясне зображення крила зафіксованого на мить курчати. При цьому використовується ультрафіолетове освітлення з довжиною хвилі від 250 до 450 нм. Спеціальна світлова архітектура пристрою забезпечує витяг характерних рис і особливостей типів опереності крила курчат. Комп’ютерна система аналізує отримане зображення, розпізнає стать курчат й пускає в хід виконавчий пристрій-сексатор.
Про швидкість і точність сортування курчат за статтю за допомогою цього пристрою в описі патенту ніяких даних не наводиться.
Визначення статі курчат в 10-денному віці. Гібридний молодняк федерсексних кросів можна розділити за статтю й в 10-денному віці [71]. У цей період у курочок з